生物学中的社会性与行为

生物学的世界中,动物展现出丰富而多样的社会行为。例如,亚洲象会组成由雌性主导的多代群体,共同抚育幼象并协作防御外敌。黑猩猩在群体内部建立复杂的社交网络,彼此间会通过梳理毛发、联盟合作来提升地位或解决冲突。同时,非洲狮群则通过严密的分工与协调进行合围狩猎,提高集体捕食成功率。许多鸟类,如灰雁,会通过鸣叫和飞行队形保持迁徙过程中的队伍凝聚力,这些合作行为直接提升了群体生存概率。
这些行为由感知、学习、生理状态和遗传差异共同形成,并在特定生态条件下影响存活与繁殖。用成本、收益和可检验机制描述行为,比把它归为动物的“努力”或自然的“智慧”更准确。动物个体的觅食决策、筑巢策略,以及在群体中的合作、沟通和竞争,都有其独特的演化意义。每一种社会行为的背后,都反映着生态环境、遗传因素和行为策略三者之间深刻而动态的相互作用,这些原理对于理解动物世界乃至人类社会都具有重要的启示意义。
空间的利用
动物如何选择栖息地
动物所处位置会影响食物、捕食风险、微气候和接触配偶的机会,因此栖息地选择常与适合度相关。个体能够选择的范围又受扩散能力、竞争、学习和历史分布限制,观察到它生活在某处并不表示那里一定是最佳环境。
大熊猫通常独居,并通过气味标记传递个体身份、性别和繁殖状态等信息。不同个体的家域可以重叠,标记并不等同于宣告一块绝对排他的“私有领地”。这种行为并不是偶然的,而是经过长期进化形成的生存策略。
动物的空间利用模式直接影响着它们获取食物、躲避捕食者和寻找配偶的成功率。
家域与领域的区别
在动物行为学中,我们区分两个重要概念:
-
动物的“家域”(Home Range)指的是一个个体在日常活动中所覆盖的空间区域,包括觅食、水源和活动路径等。家域具有非排他性,不同个体的家域常常会重叠,动物通常不会主动驱赶同类。
-
“领域”(Territory)则是动物积极防卫、不允许他者进入的核心区域,通常和繁殖、觅食、巢穴等重要资源有关。领域具有强烈排他性,只有主人及其家族成员可以进入,侵入者会遭到驱逐或攻击。
例如,鸟类通常只保卫巢穴周围的小区域(领域),而其整个活动范围(家域)可以宽广得多,且与其他个体部分重叠。在长白山地区,东北虎的家域可能覆盖数百平方公里,但它们会特别保护核心区域,比如有幼崽的巢穴周围。
领域性的功能和类型
动物建立领域主要有三种目的:
- 繁殖领域:专门用于求偶和繁殖的区域。例如,雉鸡在春季繁殖期间,雄鸡会占据特定的求偶场地,通过鸣叫和展示羽毛来吸引雌鸡。
- 觅食领域:保护食物资源的区域。散养的土鸡会在院子里建立小小的觅食等级制度,强势的鸡只能优先获得好的觅食地点。
- 巢穴领域:仅保护繁殖巢穴及其周围区域。许多鸟类就是这样,它们可能在觅食时聚集成群,但在巢穴附近绝不容忍其他鸟类靠近。
领域大小的经济学原理
维持领域是需要“成本”的,就像维护房产需要时间和精力一样。动物必须花费时间巡视边界、驱逐入侵者、留下气味标记等。
图示表达的是领域收益随面积增加而趋缓、防卫成本持续上升的模型。两条曲线交会附近可得到模型中的净收益峰值,但真实家域还受性别、季节、资源分布和邻体影响。没有与参数相匹配的追踪数据,不能声称某个面积恰好是大熊猫的“最优解”。
性别与繁殖策略

为什么需要两种性别?
在生物学领域,有一个经典问题常常引发讨论:为什么有性繁殖在许多真核生物谱系中长期存在?按理说,无性繁殖效率更高,一个雌性就能不断“复制”自己,无需寻找配偶也没有“基因混杂”的风险。事实上,无性繁殖就像用复印机批量抄写配方,有性繁殖则好比把两个不同厨师的拿手菜谱融合创新,尽管过程繁琐,却带来了巨大的多样性。
减数分裂和重组可以产生新的等位基因组合,并可能加快有利变异组合或清除有害变异;寻找配偶、只由部分个体产仔等又会带来成本。这些收益依赖环境、遗传系统和生活史,不能把有性繁殖写成所有复杂生命的统一最优方案。
中国动物中的繁殖策略实例
中国不同动物在繁殖和性别策略上各显本领:
- 金丝猴的家庭群体
在神农架的金丝猴群体里,通常由一只体魄最健壮的雄猴领导多个雌猴,形成“一夫多妻”的家庭结构。这种体系会造成雄性繁殖成功差异,但“体魄最强”不等于拥有各方面更优的基因,群体结构也会随年龄、亲缘和环境变化。 - 中华鲟的长寿繁衍
珍稀鱼类中华鲟的生命周期非常特别:需要10-15年才能达到性成熟。较晚成熟降低了种群从损失中恢复的速度,也使个体在首次繁殖前长期暴露于捕捞、航运和栖息地变化等风险;它不能保证后代基因“经过筛选”。近年来,随着保护力度增强,中华鲟人工繁殖技术也逐步成熟。 - 黑颈鹤的“一夫一妻”制
黑颈鹤实行终身配对,一对夫妻共同抚育后代,携手协作提高幼鸟的存活率。 - 蜜蜂性别的天生巧妙
蜜蜂家族拥有奇特的性别决定方式:雄蜂是单倍体,只有一套染色体,雌蜂(工蜂和蜂王)是双倍体,有两套染色体。在单次交配、同父同母的理想条件下,膜翅目全姐妹的关系系数可达0.75;蜂王多次交配时,许多工蜂是同母异父姐妹,平均亲缘度会降低。工蜂繁殖分工还受生态收益、蜂王和幼虫信号、工蜂监督等机制影响,部分工蜂在特定条件下能够产未受精卵。
雌雄配子的“分工协作”
在演化长河中,性别最大的分工体现在配子(生殖细胞)上:
- 雌性配子(卵子):较大且富含营养物质,为受精卵和后续胚胎发育储备能量。有点像新生命降临前的“超级营养包”。
- 雄性配子(精子):细小而高度运动化,首要任务就是遗传信息转送和快速“到达目的地”,类似于“专递员”。
下方体现了雌雄配子的区别:
正因这套“配子分工协作”机制,动物在繁殖策略上表现出鲜明的两性分化,例如,雄性往往更注重与竞争、展示和传播基因,而雌性更多关注对后代的保护和选择。这个基础为后续讨论的性选择理论和“择偶策略”埋下了伏笔。
性别比例的奥秘
费希尔原理
设想一个动物种群,如果雄性个体数量很少,那么每只雄性的“价值”就会迅速提升,因为它们可以争取到更多的交配机会,每只雄性的后代数量也随之增加。此时,父母若偏向生育雄性,能带来更高的遗传回报。
反过来,如果雄性很多而雌性稀少,大量雄性无法成功繁殖,每只雄性的平均后代数降低,而雌性的“价值”变得更高。在这种情况下,偏向产雌性的个体后代更有优势。这样的平衡推动性别比例逐步回归1:1。
费希尔原理说明,在父母对两性的平均投入相当且群体随机交配等条件下,稀少性别获得频率依赖优势,选择可推动亲代总投入趋近相等。若两性养育成本不同,数量比例未必是1∶1。
中国动物的性别比例调节
藏羚羊的监测问题:若监测发现成年性别比例变化,首先要区分出生比例、两性死亡率、迁徙和观察偏差。仅凭种群密度相关性,不能认定亲代主动调节了后代性别。
家猪的人工繁育:普通人工授精本身不改变精子携带X或Y染色体的比例。某些性别控制技术需要精子分选等专门步骤;营养与后代性别的关联容易受样本量和管理条件影响,不能当作稳定的调控方法。
1981年在陕西洋县发现7只野生朱鹮后,就地保护、人工繁育、野化放飞和栖息地管理共同推动种群恢复到数千只。具体数量会随年份、调查范围及野生与圈养统计口径变化;评估恢复质量还要看性别与年龄结构、遗传多样性和不同种群能否持续繁殖。
影响性别比例的因素
在实际情况中,有几个因素会影响最优性别比例:
- 抚养成本差异:如果雄性幼体需要更多营养和照顾,父母可能会调整生育策略
- 生存率差异:如果某一性别的死亡率较高,出生时的性别比例会相应调整
- 繁殖竞争强度:在雄性竞争激烈的物种中,可能产生更多雌性
性选择与交配系统

性选择的两种形式
性选择是进化论中最富戏剧性的部分。它解释了为什么孔雀会有如此华丽的尾羽,为什么雄鹿会长出沉重的角,以及为什么许多雄性动物会进行激烈的战斗。
同性内选择:同性个体之间的竞争。就像雉鸡雄性之间的打斗,胜者获得更多交配机会。
异性间选择:一个性别对另一性别的选择偏好。例如,雌孔雀更喜欢尾羽华丽的雄孔雀。
中国鸟类的求偶展示
在中国的森林和草原中,我们可以观察到许多精彩的求偶行为:
比如,丹顶鹤会在春季进行优雅的“双人舞”,通过鸣叫和同步起舞吸引伴侣;而孔雀则展开绚丽的尾屏,用颜色和震动来吸引雌性注意。这些独特的行为不仅是繁殖策略的一部分,也展现了生物多样性和适应性。
交配系统的类型
社会单配制:朱鹮等许多鸟类在繁殖季形成配对并共同育幼,但配偶关系和遗传亲子关系仍需分别研究。大熊猫主要独居,雌性独自育幼,不属于雌雄共同抚育的一夫一妻体系。
一夫多妻制:金丝猴采用这种系统。一只强壮的雄猴可以保护和交配多只雌猴,但也要承担更大的保护责任。
一妻多夫制:在某些鸟类中很少见,通常出现在雄性承担更多育幼责任的情况下。
性选择的成本与收益
性选择虽然能提高繁殖成功率,但也带来了成本:
- 能量成本:维持华丽的装饰需要大量营养
- 生存风险:过于显眼可能增加被捕食的风险
- 时间成本:求偶行为占用了觅食和其他活动的时间
因此,尾羽过长的雄鸟虽然更受雌鸟欢迎,但飞行能力会下降,更容易被天敌捕获。这就是进化中的权衡。
适应性与种群地位

个体适应性的概念
在生物学中,适应性并不简单等于动物的强壮或智力高低,而更侧重于其将自身基因成功传递给下一代的能力。一个个体适应性强,意味着它能够在复杂多变的环境中生存、繁殖,并有效地保证后代的存活和繁衍。
譬如,一只在繁殖季占据优质领地的雄性鸟类,虽然在体型或斗争中未必最出众,但因其凭借领地优势获得了更多交配机会和资源供给后代,这种个体就表现出较高的适应性。进化生物学进一步强调,适应性还包括对新环境的应变能力、对于天敌和疾病的抵抗、以及与同伴之间的社会互动能力等多个维度。
中国濒危动物的恢复案例
朱鹮的恢复:1981年在陕西洋县发现7只野生朱鹮后,保护工作逐步结合巢区看护、栖息地管理、人工繁育和野化放飞,种群数量与分布范围随之扩大。公开数字会随统计年份以及是否合并野生、放归和圈养个体而变化,因此更适合表述为“已恢复到数千只”。判断保护是否长期成功,还要持续监测繁殖率、存活率、遗传多样性和栖息地连通性。
扬子鳄的保护繁育:扬子鳄曾因湿地丧失、破碎化和人为干扰在野外大幅减少。保护工作结合人工繁育、适宜栖息地恢复、放归和野外监测,使人工种群扩大,也建立了部分放归种群。评价恢复不能只累计繁育或放归数量,还要确认放归个体能否存活、繁殖并形成可持续种群,同时监测遗传多样性和栖息地承载能力。
种群中的等级制度
在许多群居动物中,种群内部都存在明确且复杂的社会等级结构,这种等级有助于维持社会秩序、减少竞争冲突,并提升整体生存效率。
说明
- “阿尔法狼”说法主要来自早期圈养陌生个体研究。野外狼群通常是亲本及不同年龄后代组成的家庭,支配关系不宜描述成固定阶层制度。
- 家鸡群体中可形成相对稳定的啄食顺序,但关系会随群体组成、资源分布和个体状态改变。等级影响接近食物和栖位的机会,不等于上位个体能够控制下位个体的全部行为。
社会地位可能与激素、行为、免疫和基因表达差异相关,但方向取决于物种和社会结构。在有些群体中,高位个体竞争和守位的成本很高;在另一些群体中,低位个体更难获得资源。研究者需要区分地位造成的影响与年龄、体况或性格先导致地位差异的可能。
社会地位与生理和行为差异常会同时出现,但关联大小和方向因物种、性别、季节与群体结构而异。只有结合长期追踪或实验处理,才能判断地位变化是否造成健康与繁殖结果的变化。
社会行为与亲缘选择

汉密尔顿法则
在自然界中,我们常常观察到一些看起来“无私”的行为:如工蜂为保护蜂巢而牺牲自己,乌鸦发出警报声提醒同伴有危险。这些行为是如何在进化过程中被保留下来的呢?如果利他行为导致行为者的存活概率降低,为什么自然选择还会保留这种现象?
英国生物学家威廉·汉密尔顿提出了著名的汉密尔顿法则:
其中:
- r = 行为者与受益对象之间的亲缘关系系数(血缘关系越近,r越大)
- b = 受益个体因该行为获得的适应度收益
- c = 行为者因此行为所付出的适应度代价
简而言之,只要利他者为亲属提供足够的好处,足以弥补自身损失,从遗传角度看这种行为就能被保留。例如工蜂牺牲自己,能够显著提高与自己血缘关系极高的同伴(如蜂王或姐妹)的生存及繁殖成功率,从而间接传播自己的基因。
汉密尔顿法则不仅能解释昆虫社会,也能解释鸟类、哺乳动物中的“亲缘利他”现象。例如,黑猩猩在遇到危险时,首先向亲属发出警报;野生田鼠会优先照顾血缘更近的同伴。中国北方的田鼠和家燕也表现出类似的亲缘偏好。
社会性昆虫的分工
中华蜜蜂的社会结构:中华蜜蜂是中国重要的传粉昆虫,它们的群体生活堪称大自然中的“超级有机体”。在膜翅目单倍体—二倍体遗传下,同父同母全姐妹的关系系数理论上可达0.75;蜂王多次交配会产生同母异父工蜂,因此群体平均值并不固定为0.75。这源于蜜蜂特殊的单倍体-二倍体遗传机制(即雄蜂只有一套染色体,雌蜂有两套),因此姐妹间的亲缘更近。
这也就解释了为什么工蜂愿意放弃自身的繁殖机会,全力支持蜂王的繁殖。蜜蜂社会还具有极其精细的分工系统:蜂后负责产卵和调控群体信息素,工蜂则根据年龄和分工,轮流负责巢内清洁、哺育幼虫、修建蜂巢、采集食物、守卫蜂巢等任务。
有意思的是,工蜂的行为往往会随年龄逐步转变,这叫做“年龄多态行为”,最大程度提升了群体整体的生存效率。亲缘关系为间接适合度提供条件,群体效率、巢穴防御、食物储存和亲本单配历史等生态因素也参与社会性演化。亲缘度高并不足以单独解释工蜂分工。
蚂蚁的等级分工:中国拥有丰富的蚂蚁种类,其中编织蚁就是一种典型的社会性昆虫。编织蚁通过吐丝连接树叶,建造大型树巢,蚁群内部等级分明,合作无间。群体内的成员分为不同的等级,各自承担独特的职责:

- 蚁后体型最大,负责产卵,是群体的“生命源泉”。
- 工蚁数量最多,承担觅食、育幼、修巢等任务。
- 兵蚁体型健壮,主要负责保护巢穴安全,抵御天敌和入侵者。
- 雄蚁只在繁殖季节出现,完成交配后就会死亡。
蚂蚁群体的高效分工和协作,使其能够在生态系统中占据重要地位,形成规模庞大的社会体系。近年来,科学家通过基因追踪等方法进一步证实,高亲缘关系对于维系蚂蚁社会的稳定和分工至关重要。
此外,不同蚂蚁物种还会出现“寄生蚁”“奴役制”等更复杂的社会结构,展示了社会性行为在进化中的多样性。
互惠利他主义
除了基于血缘关系的利他行为,动物还会进行“互惠利他”行为。这种行为并不依赖于血缘关系,而是通过个体间的长期互助形成利益交换网络,是社会动物合作的重要基础之一。
警戒与互惠要怎样区分:群居鸟类的警戒叫声可能让同伴受益,但行为者也可能通过更早发现危险而直接受益,或主要帮助近亲。因此,仅观察到轮流警戒还不能证明“以后会得到回报”。检验互惠需要识别个体、记录多次相遇,并比较曾经帮助与未帮助个体后来得到回报的概率。
清洁鱼与客户鱼:在珊瑚礁清洁站,清洁鱼获得食物,客户鱼可能减少部分体表寄生生物。重复访问、伙伴选择和离开清洁站等行为,为研究合作怎样维持提供了可测量指标。不过,双方当场获益的互利关系不等同于延迟回报的互惠利他。牛背鹭更多是捕食牛羊行走时惊起的昆虫,牲畜是否受益并不确定,也不宜写成清除体表寄生虫的同类案例。
互惠是否提高存活和繁殖,要比较具体物种、行为和环境,并排除群居本身的影响;不存在适用于所有动物群体的统一提高比例。另外,互惠利他不仅存在于鸟类和鱼类,许多哺乳动物(如豺、猕猴、长臂猿)也展现出互帮互助、共享食物、轮流守望等多样化的互惠行为。
动物世界的欺骗与伪装
在激烈的生存竞争中,有些动物发展出了令人惊叹的欺骗和伪装策略。这些行为乍看之下似乎“不诚实”,但却是自然选择下的高效生存手段。欺骗可以让弱小的动物规避天敌、成功觅食或提高繁殖成功率,是进化过程中丰富多样的适应策略之一。
动物的伪装与欺骗大师
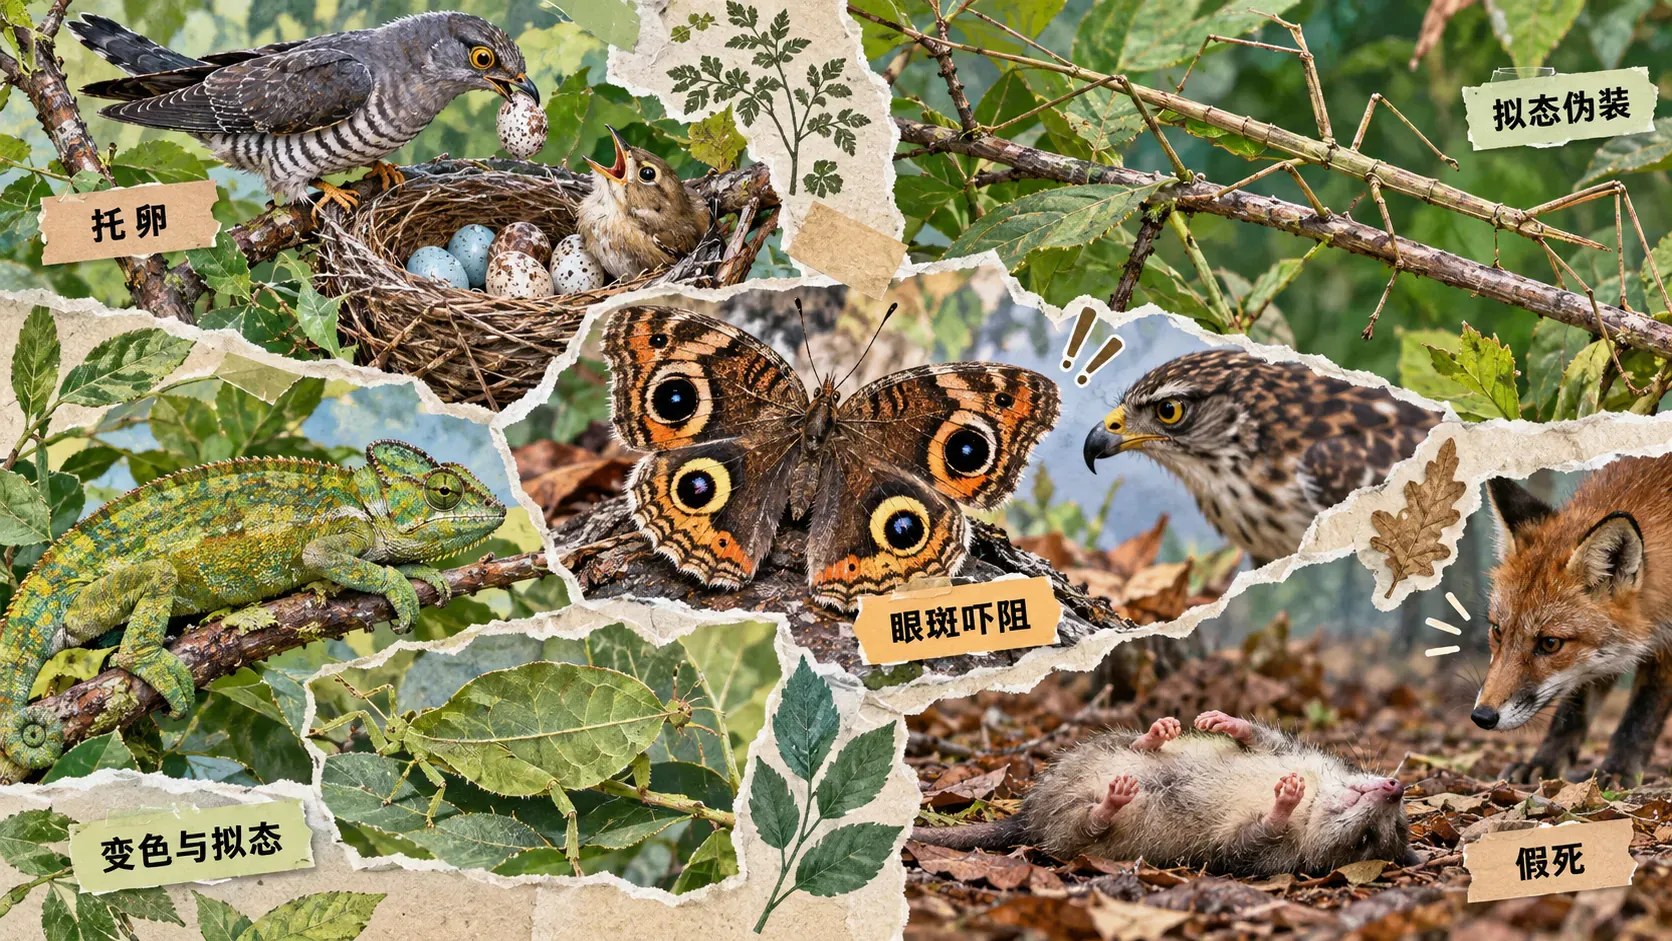
-
杜鹃鸟的托卵:大杜鹃会把自己的蛋偷偷产在画眉等鸟类的巢中,利用“养父母”帮忙孵化和养育下一代。孵化后的小杜鹃会将寄主幼鸟推出巢外,独占资源,这种行为迫使寄主逐渐学会分辨异类鸟蛋。
-
竹节虫的拟态伪装:生活在南方森林的竹节虫外形酷似枯枝,能随着风轻微摆动,把自己伪装成树枝,很难被天敌如鸟类发现,极大提升了生存几率。
-
蝴蝶的眼斑吓阻:孔雀蝶、猫头鹰蝶等蝴蝶翅膀上有显眼的“大眼斑”,当遭遇威胁时突然展开翅膀,吓退捕食者,让对方误以为遇到了更强大的天敌。
-
变色与拟态:头足类能迅速改变颜色、明暗和皮肤纹理,用于隐蔽、交流或威慑;拟态章鱼还能拟态成某些有防御能力的海洋动物。变色龙的颜色变化也参与体温调节和个体间信号交流,并不只是为了融入背景。
-
假死与误导敌人:田鼠、刺猬等小动物会用“装死”降低被捕风险,而一些鸟类在有幼鸟时,会假装翅膀受伤,把掠食者引到远离巢穴的地方,保护后代安全,这类自我牺牲的欺骗大幅提升了生存和繁殖概率。
欺骗行为的进化逻辑
这些看似“狡猾”的行为,其实都可以用进化生物学的理论来解释:
- 成本效益分析:如果某种欺骗行为(如伪装、模仿、假死)带来的生存或繁殖收益大于它的代价与风险,那么拥有这种能力的个体在种群中更有机会留下后代,导致这种行为日益普遍。
- 军备竞赛:天敌或受害一方并不会“坐以待毙”,随着欺骗手段进化,识别或防御手段也会共同进化。例如,寄主鸟类会进化出识别杜鹃蛋的方法,竹节虫的天敌也在不断提升“分辨力”;于是,种群间不断上演“你追我赶”的军备竞赛。
- 动态平衡状态:最终,欺骗行为与识别/对抗行为往往会在生态系统中达到某种平衡。如果欺骗行为过于泛滥,会导致整体信任体系的崩溃,也可能受害方形成强烈抵制,让欺骗行为自我受限,这就是“进化稳定策略”理论的重要内涵。
欺骗策略的频率常受识别能力、相遇重复性和收益代价制约。对许多动物而言,用信号可靠性和频率依赖选择描述这种过程,比套用人类社会中的“信任瓦解”更容易检验。因此,自然界中的欺骗往往受到环境、群体结构等多方面因素的约束,具有一定限度和动态平衡。
总结
这些案例展示了行为怎样由感知、学习、生理状态和遗传差异共同产生,并在具体环境中改变存活与繁殖结果。领域行为、社会分工、托卵和伪装对应不同的成本、收益与机制;把它们放在同一套可检验的问题中比较,比赋予自然以目的或智慧更有助于理解行为演化。
这些行为的研究,有助于我们更全面地认识动物世界,同时也为人类社会的组织、合作甚至伦理观念提供了镜鉴。动物群体中的利他、互惠、分工乃至欺骗,往往也在人类社会现象中有所映射。观察和分析动物行为,能够帮助我们更加清醒地审视人类与自然的关系,激发尊重与包容。
理解生物学不仅带来知识与好奇心的满足,更重要的是唤起我们保护自然的责任感。洞悉动物行为背后的规律,让我们能够以科学和理性的方式参与生态保护与治理,珍惜生命多样性,共建可持续的生态家园。
借助科学与技术的进步,我们有机会不断探索生命奥秘。无论是演化研究还是生态保护,都需要我们持续关注和理解动物行为。让我们共同努力,在人与自然和谐发展的道路上,书写更多生命共荣的美好篇章。