从大脑到肌肉的精密协调
小林第一次练毛笔字时,明明知道要写一条平稳的横线,笔尖却总会抖;下楼踩到台阶边缘时,他又几乎不用思考就能把身体扶正。两件事看起来相反:前者需要练习才会更准,后者快到来不及“下决定”。其实它们都在说明同一件事——动作不是大脑发出一条命令、肌肉机械执行的直线过程,而是一套不断预测、接收反馈、修正误差的闭环。
本章沿着小林的一个周末展开:写字、在不平路面行走、端一杯水、在人群中决定先做什么。你会看到同一身体如何在不同速度和层级上完成协调,也能区分哪些现象可用于自我练习,哪些需要交给专业医疗团队判断。
动作是一条持续校正的闭环
当小林伸手拿杯子时,前额叶会结合目标和情境作出选择;运动相关皮层准备动作方案;脊髓与脑干把下行信号送到运动神经元;肌肉才产生收缩。但指令一离开大脑,视觉、皮肤感觉、前庭信息以及来自肌肉和肌腱的本体感觉,就已经在回传“手到哪里了、力量够不够、身体有没有偏”。小脑和脊髓回路据此让下一瞬间的输出更合适。
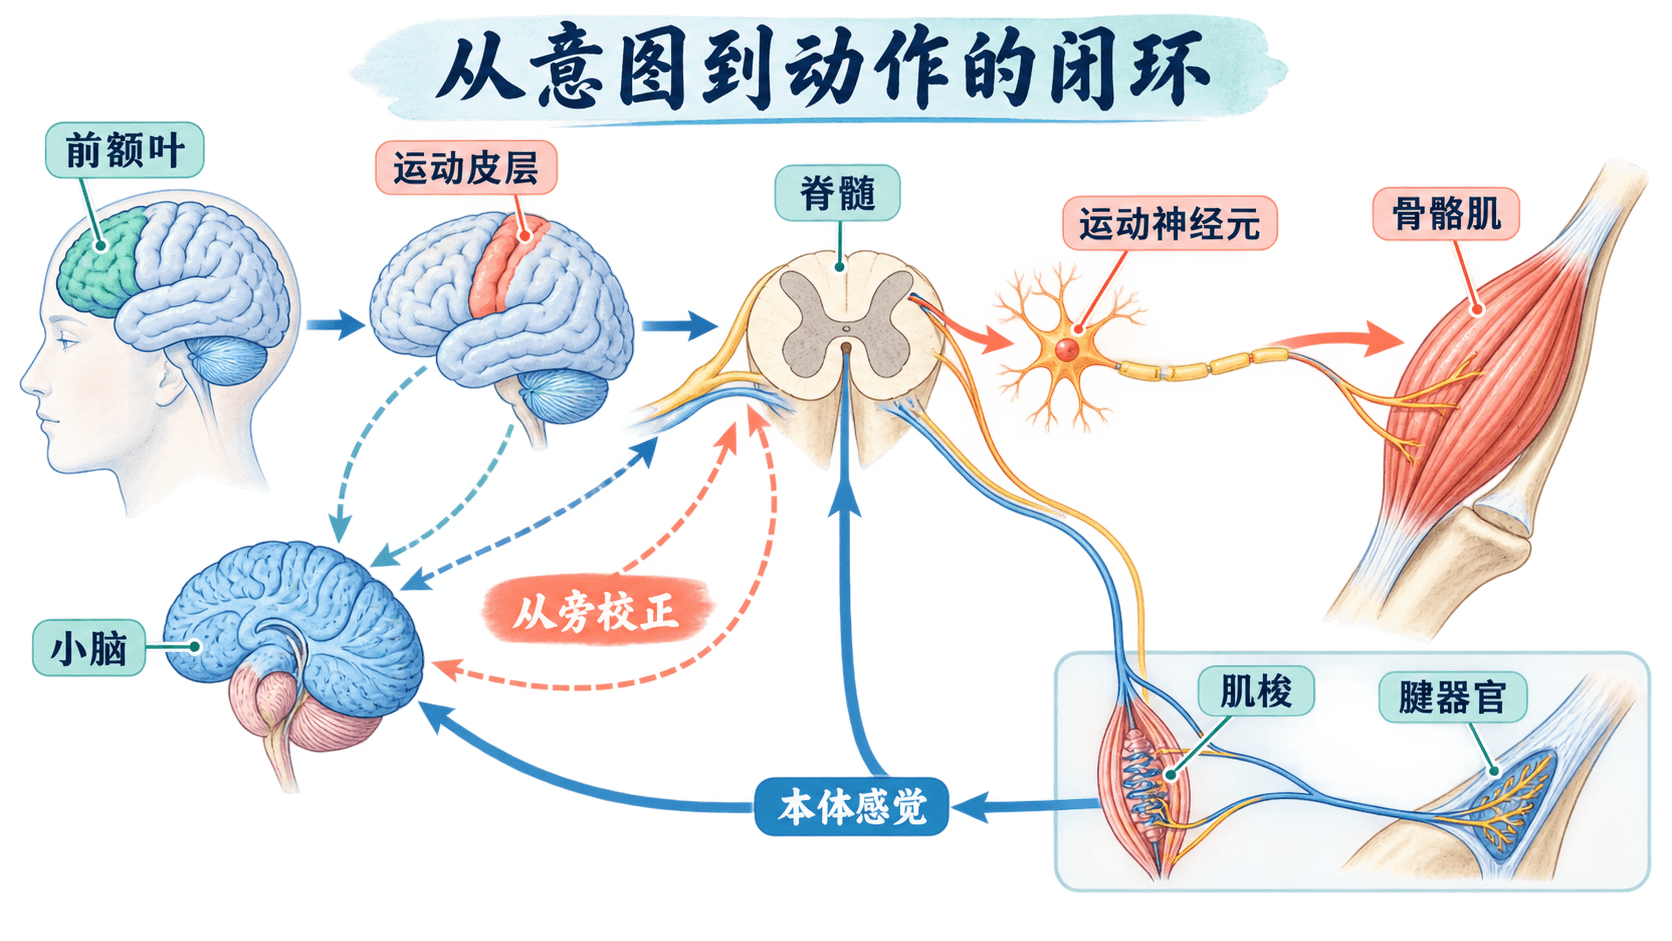
把它想成骑车而不是发快递:骑手并非只在起点给出一次方向,而是连续感受车把、地面和重心,再微调力量。运动控制也一样。某些修正可以在脊髓完成,速度快、范围窄;另一些需要皮层、小脑和基底神经节参与,能处理目标、时机和学习。它们不是彼此替代,而是分担不同时间尺度上的任务。
“动作由大脑控制”是方便入门的说法,但不等于每次肌肉收缩都由意识逐条下令。一次顺畅动作通常同时包含意图、预先计划、局部反射、感觉反馈和误差校正;意识尤其适合设定目标、切换策略与复盘结果。
对练习而言,这个框架给出一个实用问题:不要只问“我有没有更用力”,还要问“我获得的反馈够不够清楚”。写字时放慢第一笔并观察笔尖轨迹,端水时关注手腕是否过紧,都是在给校正回路提供更可辨认的误差。
肌肉把指令变成可调的力
骨骼肌纤维的主动动作只有收缩;关节能屈能伸,靠的是方向相反的拮抗肌群轮流出力。例如肱二头肌增力时肘更容易屈曲,肱三头肌增力时肘更容易伸展。真正流畅的动作不是一边永远“开”、另一边永远“关”,而是神经系统随任务调节两侧的时机和共同收缩程度:拧紧瓶盖可以更稳定,写小字则需要更精细地放松多余张力。
运动神经元及其支配的全部肌纤维合称一个运动单位。一个运动神经元发放信号时,它所连接的肌纤维会共同参与;神经系统再通过招募更多运动单位、改变放电频率来调节力量。需要极细控制的肌肉通常具有较小的运动单位,需要大力输出的肌肉则可由较大的单位承担。
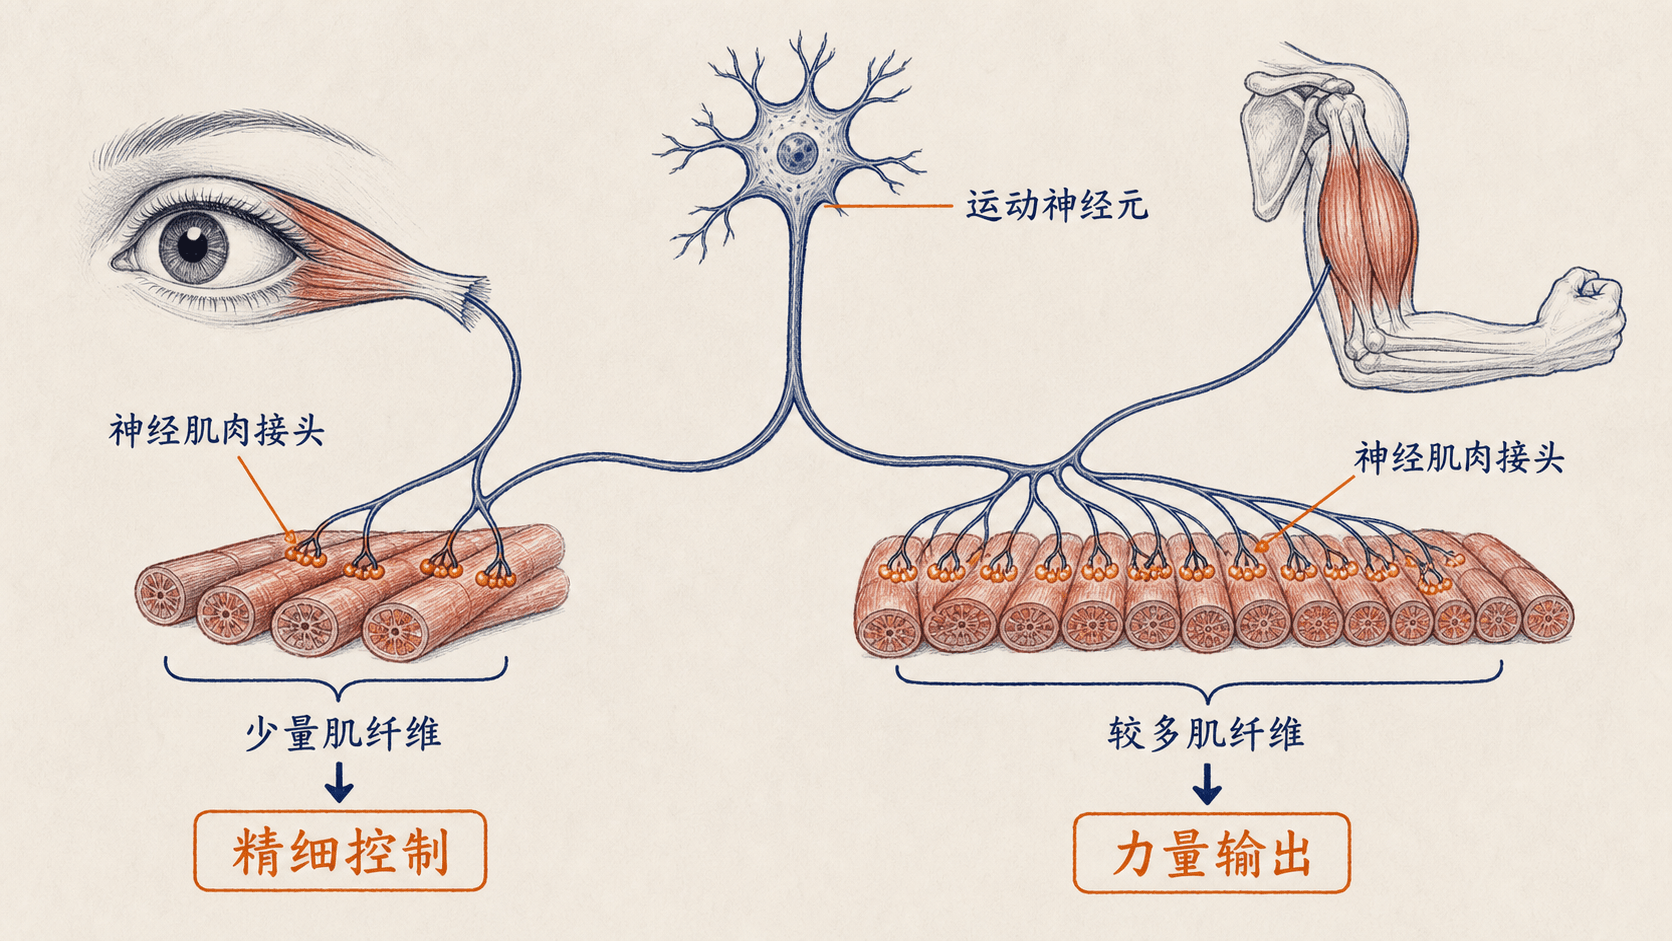
在神经肌肉接头处,运动神经末梢释放乙酰胆碱,肌纤维膜上的受体被激活后产生电活动,继而引发收缩。这里的传递若受疾病或药物影响,可能表现为异常疲劳或无力;这不是靠“咬牙练过去”就能判断的情况。持续、波动或进行性加重的肌无力,应由医生评估。
肌纤维也并非只有“耐力型”和“爆发型”两种开关。不同纤维在收缩速度、代谢特征和抗疲劳能力上存在连续差异,同一块肌肉常混有多种纤维。慢而耐久的任务与快速大力的任务,确实会偏向不同招募策略;但训练效果还受技术、供能、休息和总负荷共同影响,不能仅凭某一次酸痛给自己贴标签。
练动作时,先追求稳定轨迹和适当力量,再增加速度或次数。若一开始就把力量推到极限,反馈会被紧张和疲劳淹没,反而不利于学会精细协调。
身体会报告长度、张力和位置
小林下楼时踩到凸起,膝关节角度瞬间变化。肌肉里的肌梭对肌肉长度及其变化速度敏感;肌腱中的高尔基腱器官则主要报告张力。它们与关节等组织提供的信号,是本体感觉的重要来源,让大脑即使闭上眼也能大致知道四肢位置。皮肤感觉、视觉和前庭觉属于不同通道,却会与本体感觉一起帮助姿势与身体定向。
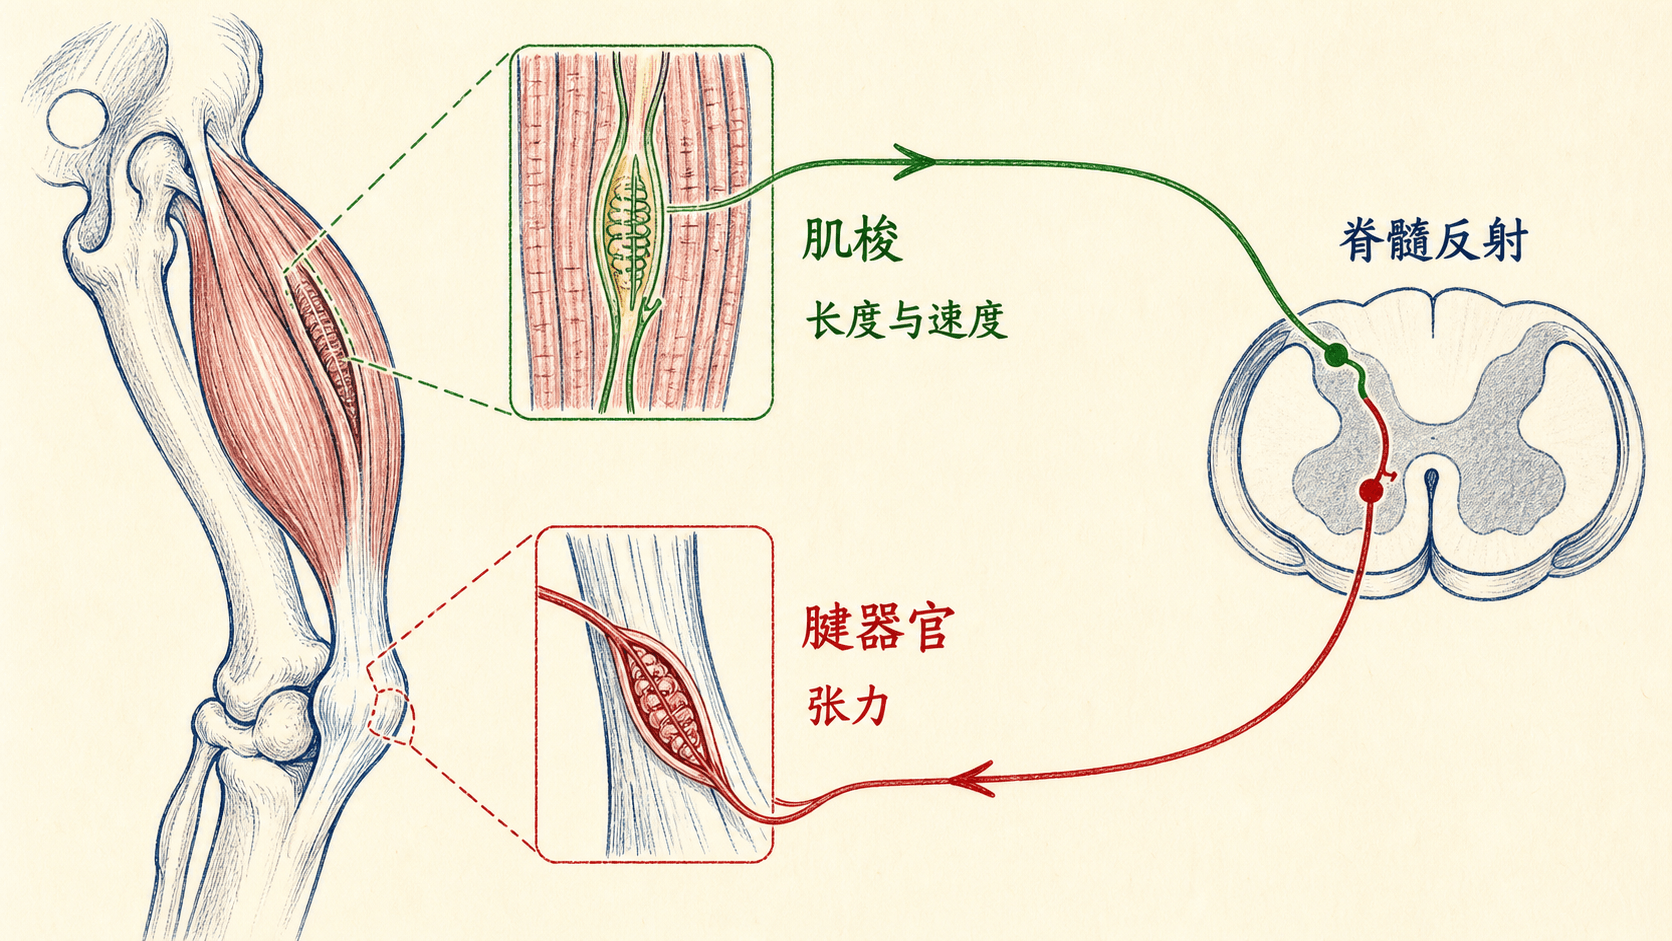
肌梭参与的拉伸反射可以用膝跳反射理解:肌肉突然被拉长,感觉传入脊髓;脊髓使同一肌肉的运动神经元更易兴奋,并通过中间神经元调节拮抗肌,从而帮助姿势保持。它很快,却不是不可改变的“铁律”——大脑、脑干状态和任务目标都能调节反射增益。高尔基腱器官也不是一个一超阈值就让肌肉彻底断电的保险丝,它提供的张力信息会被脊髓和更高层级综合使用。
如果想把踩凸起的一瞬间拆开,可以按下面的顺序追踪:
落脚使相关肌肉的长度和关节角度突然变化;肌梭的感觉信号首先标记这次变化。
信号进入脊髓后,与局部中间神经元和下行控制共同决定应当增强哪一组肌肉、减弱哪一组拮抗肌。
收缩改变了关节位置,新的视觉与本体感觉再回到系统;若仍有偏差,小脑和皮层参与更慢、更精细的后续调整。
下面的实验把“石块高度”和“反应阈值”变成可调参数。它不模拟真实人体的全部生理细节,而是帮助你辨认:补偿太小会晃,补偿过强也会让动作变僵。
回到小林的写字练习:他把纸固定好、降低书写速度,并在每一横结束时停半秒查看落点。这些做法没有改变肌梭的基本功能,却让视觉和本体反馈更容易被比较。练习中的“慢”不是退步,而是为校正留下可见的窗口。
大脑让动作选对并做准
运动皮层、前运动区和辅助运动区会参与把目标转换为动作方案。它们对精细手指、口唇等控制很重要,但皮层的“身体地图”不是一张固定不变、每块肌肉一格的地图:相邻区域的表征可以重叠,并会随任务与经验改变。更可靠的理解是,皮层参与组织有目标的动作,脊髓和脑干再把它落实为适合当下身体状态的肌群协作。
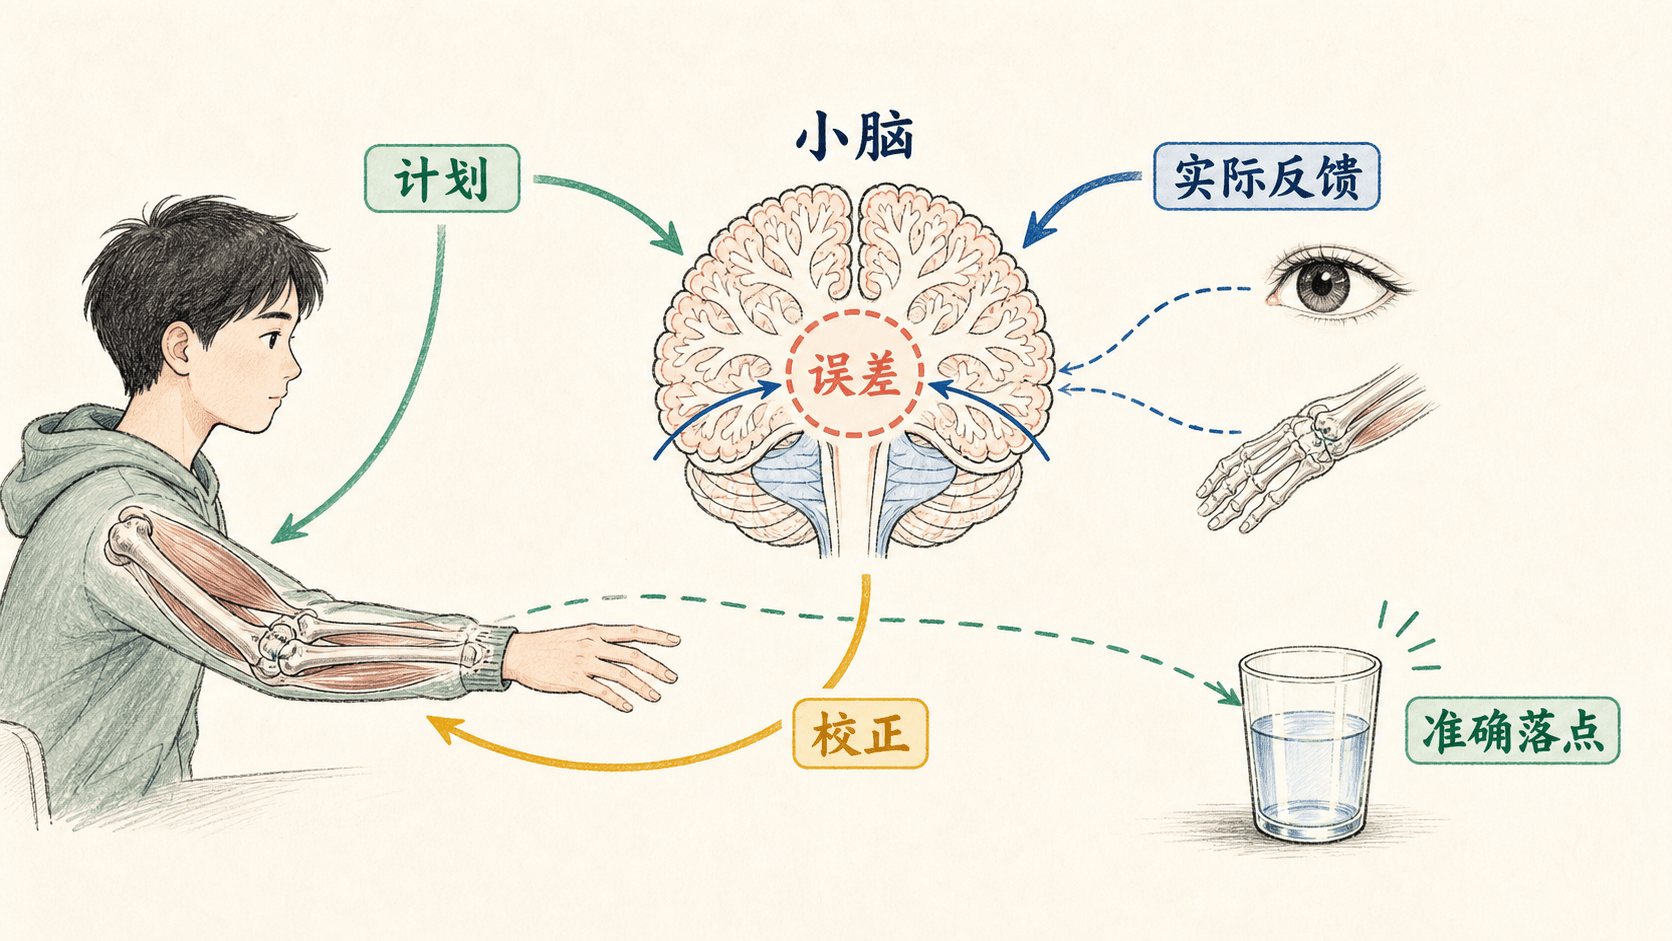
小脑特别擅长处理“想要的”和“实际发生的”之间的偏差。它能获得运动命令的副本,也接收视觉、本体感觉等反馈;当小林的手从杯把上方偏过去,小脑相关回路帮助调整后续输出,使落点、力度与时序逐渐贴近目标。小脑受损时,动作往往不够平滑、落点不准,或难以在合适时刻启动和停止;这不等于小脑只管平衡。
在下一次端杯前,先预测杯子的重量;真正抬起时,再根据手臂的加速度与视觉落点更新力量,这正是误差驱动学习的日常版本。每次结果不必完美,但要能区分“用力预估错了”“反馈来得太晚”还是“修正过头了”。
基底神经节则更像在候选动作之间参与选择与启动:端杯、挥手、继续停住可能同时有一定准备度,但通常只有一个应在当下被放行。把它画成“闸门”很有用,不过要记住这只是比喻——真实机制是一组与皮层、丘脑、脑干互相连接的回路,不是一扇孤立的门。它既有助于启动合适动作,也有助于压低竞争动作,并参与习惯和技能的学习。
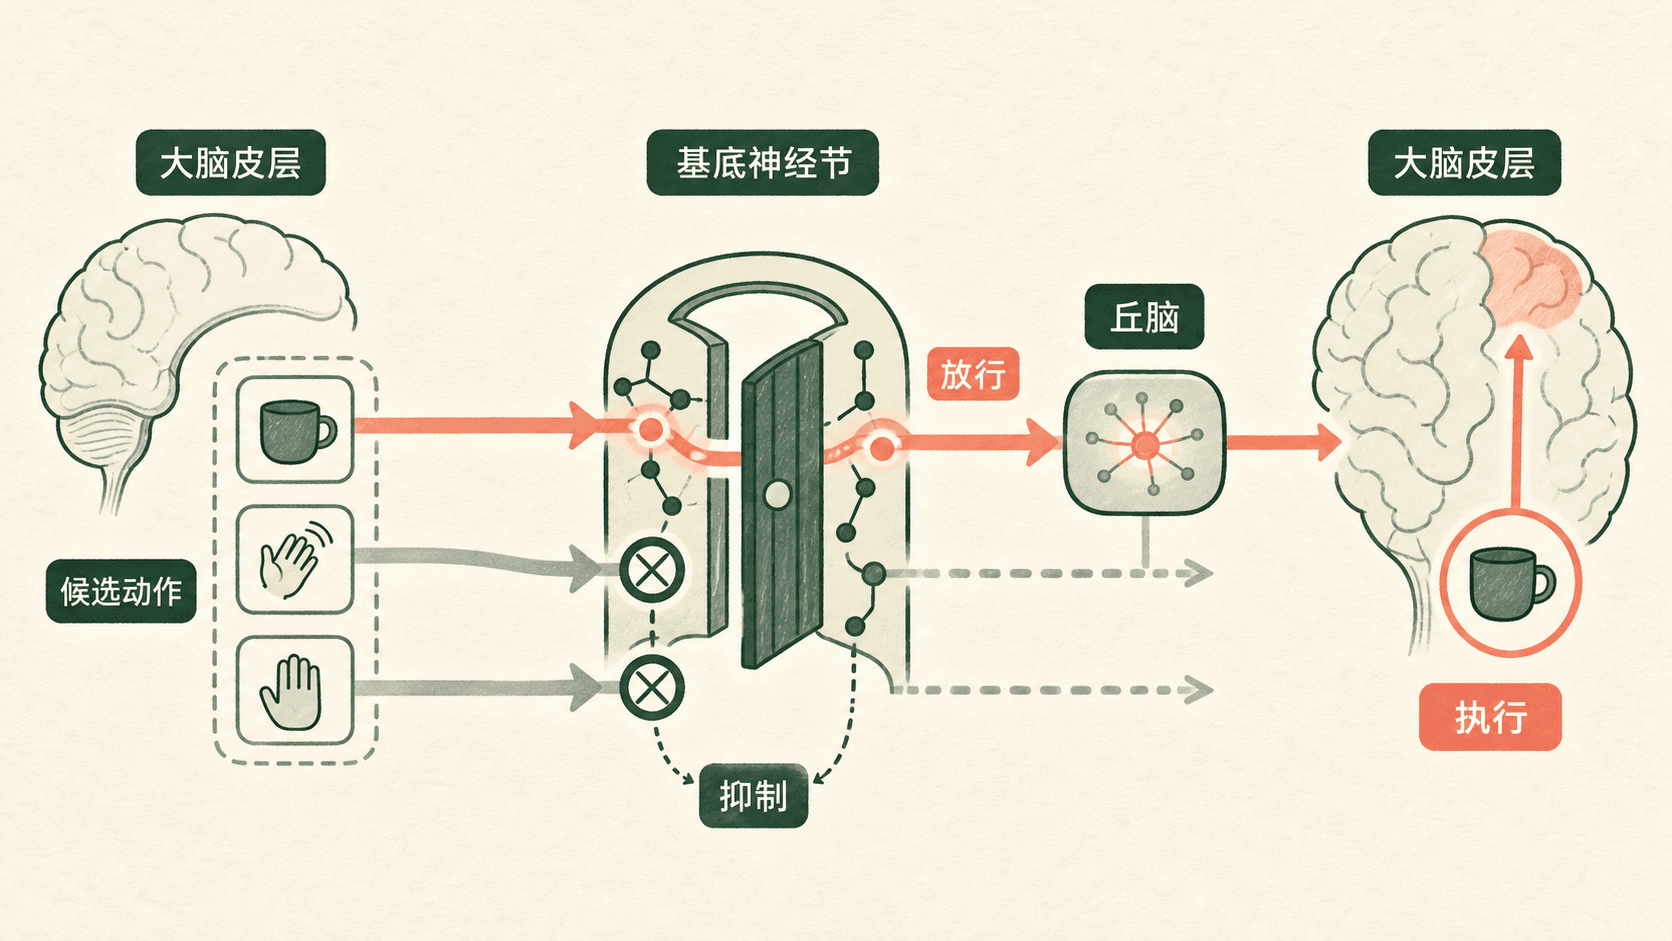
当小林学会骑车后,不必逐条提醒自己“踩、扶、看”,部分动作序列会更自动化;但自动化不等于不再需要反馈。遇到湿滑路面、新车型或疲劳时,系统仍要重新提高监测和校正的比重。把熟练理解为“能在变化中保持可调整”,比理解为“完全不用想”更准确。
下面的挑战用“内部启动难度”和“外部节拍”把选择时机显性化。节拍只是教学中的时间线索,不是医疗测试,也不能用来评价任何人的运动健康。
把科学用在练习与就医
这套闭环也解释了为什么有些练习安排更有效。小林若想把毛笔横线写稳,可以把一次练习拆成小回合:先用慢速建立轨迹,再只改变一个变量,例如握笔力量或落笔位置;每回合立即对照结果,最后才提高速度。这样做的重点不是制造“肌肉记忆”这个模糊标签,而是让神经系统在清晰、可重复的误差里更新动作方案。
临床案例能帮助我们理解回路,但不能替代诊断。帕金森病是进行性神经系统疾病,可出现动作缓慢、僵硬、震颤、步态和平衡问题,也可能伴有睡眠、情绪或认知改变。黑质多巴胺神经元的丢失会改变基底神经节相关回路;左旋多巴等药物、康复训练以及部分患者适用的脑深部刺激可改善症状和功能,但治疗需要个体化评估。视觉线条或节律线索对部分人行走有帮助,不应被当成自行治疗的替代品。
亨廷顿病则与 HTT 基因中的 CAG 重复扩增有关,常呈常染色体显性遗传。CAG 重复数在 36–39 次时属于外显率降低区间,并非每位携带者都会在一生中出现表现;达到 40 次及以上时,风险更为确定。预测性基因检测会牵涉情绪、家庭关系和生育决策,应在神经专科与遗传咨询支持下慎重进行,而不是把网络信息当作个人结论。
新出现或加重的单侧无力、言语含糊、突发步态不稳、面口歪斜等,可能提示急性神经系统问题,应立即寻求急救帮助。持续震颤、动作变慢、反复跌倒、进行性无力或有明确家族遗传风险时,也应尽早到正规医疗机构的神经内科或遗传咨询门诊评估。
延伸阅读
以下资源均为具体页面,适合继续了解运动功能、脑卒中康复与跌倒预防。