视觉信息处理与认知机制
傍晚骑车离开校园时,小林先从远处灯光中辨出同学,再在路口看清共享单车的位置,随后避开突然横穿的行人。这个看似连贯的动作,并不是眼睛拍下一张“照片”交给大脑,而是光线、视网膜、丘脑和皮层不断编码、筛选、预测并校正的结果。本章就沿着这一次骑行,拆开“看见”背后的几个关键机制。
从光到神经信号
视觉的原料是进入眼睛的光,而不是眼睛向外发出的“视线”。物体发出或反射的光依次穿过角膜、瞳孔和晶状体,在视网膜上形成倒立的光学像。光学像并不会直接成为知觉;它必须被感光细胞转成神经活动,才会进入后续的视觉系统。
小林刚从明亮教学楼骑到较暗的林荫道时,最先改变的不是“看东西的意愿”,而是进入眼睛的光量和视网膜细胞的工作状态。感光细胞吸收光后改变膜电位,再经双极细胞、无长突细胞和神经节细胞等局部回路加工;神经节细胞的轴突汇成视神经。视网膜因此不是被动胶片,而是一块在眼内先行做计算的神经组织。
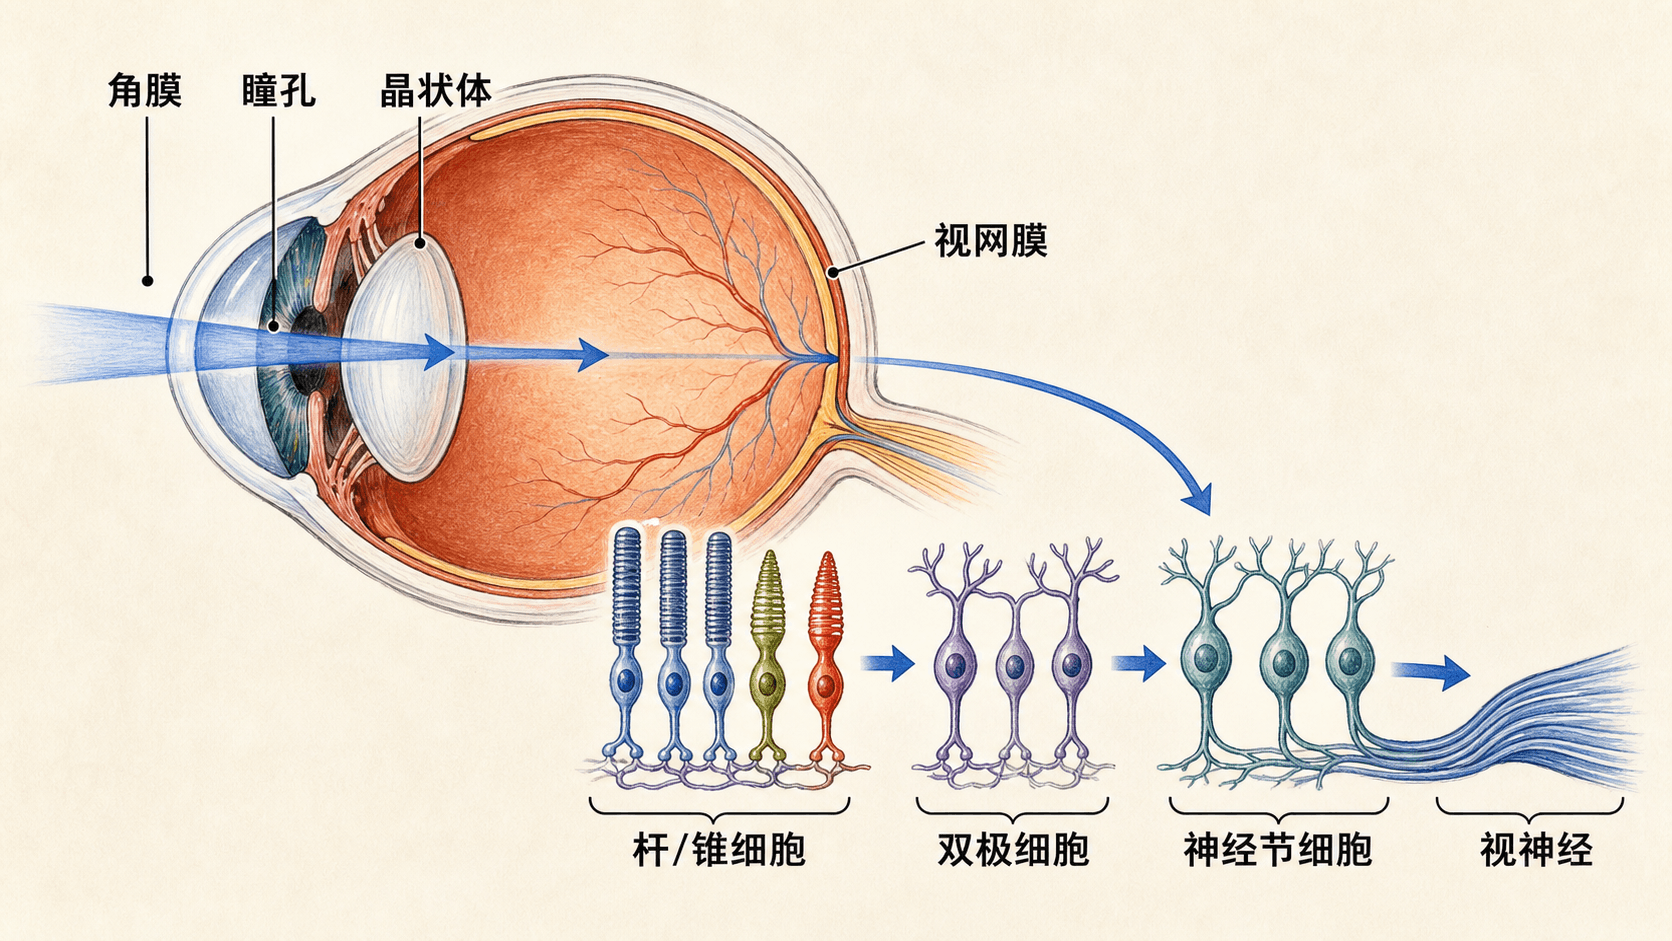
神经编码至少要同时看三个问题:哪些细胞参与、它们的群体活动有多强,以及活动随时间怎样变化。把“亮”简单理解为某一个细胞放电更快并不完整;在不同光照条件下,许多细胞会共同改变反应,时间模式与相邻细胞的对比也会提供信息。大脑读到的从来不是一份世界的原样副本,而是被神经回路压缩和重组过的信号。
按压闭着的眼睛可能看到闪光,是机械刺激激活了视觉系统而不是产生了真实光。它提醒我们:感觉体验取决于活动发生在哪条神经通路及其活动模式,不能只从外界刺激的物理类别推断。
中央凹、周边与盲点
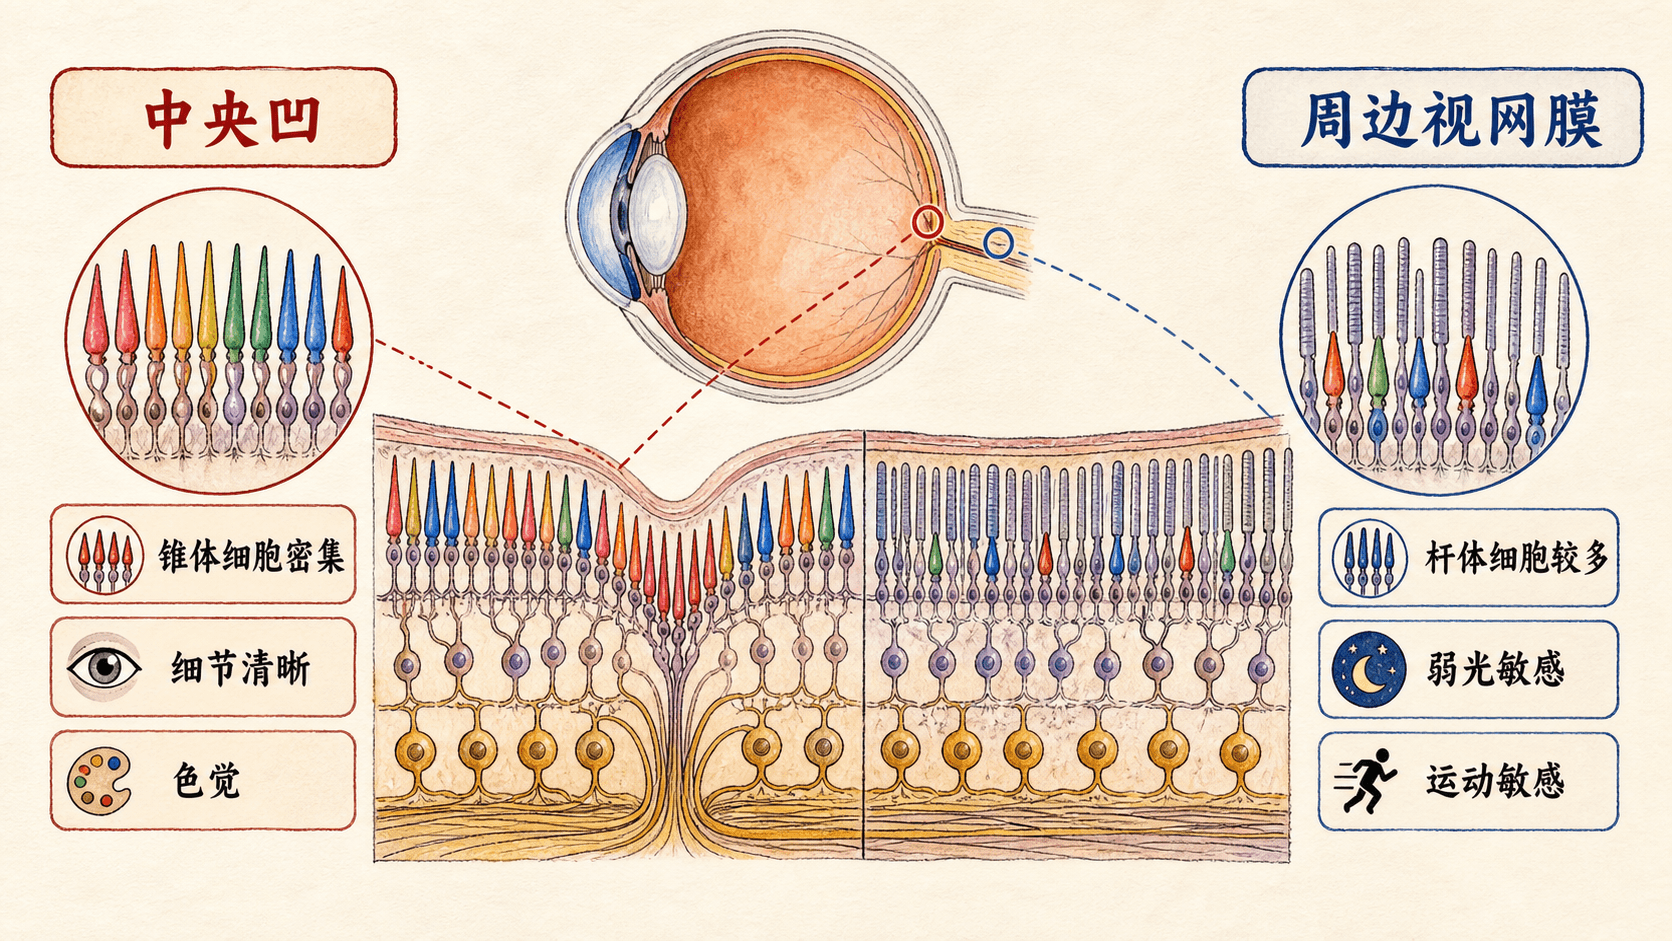
小林读路牌时会把眼睛对准字,而不是用余光“硬看”。这是因为中央凹附近以锥体细胞和较少的汇聚连接为主,适合获得精细空间细节;周边视网膜的杆体细胞更多、汇聚通常更明显,牺牲了细节,却更有利于在弱光中发现变化。两种能力互补,不存在“中央凹总是更好”的单一答案。
视神经离开眼球处没有感光细胞,因而每只眼睛都有生理性盲点。日常生活中我们通常察觉不到它:双眼视野彼此补充,且大脑会根据周围纹理推断缺失处可能的内容。这里的“补全”是有用推断,不是眼睛真的收到了该位置的信息。
下面的实验把这个平常被忽略的盲点变成可观察的现象。请遵循页面中的单眼注视提示;这只是感知演示,不用于判断视力或眼部健康。
如果出现持续遮挡、视物变形、闪光感或视野缺损,不要用盲点实验解释或自行处理,应尽快接受正规眼科评估。生理盲点稳定而日常无感,突发或进行性的视觉变化不是同一件事。
色彩是比较出来的
骑到便利店门口,小林仍能把红色反光牌看成红色,尽管橱窗灯与路灯的光谱并不相同。色彩并非物体附带的一张固定标签,而是视觉系统对光谱、周围环境与既有适应状态综合计算的结果。
人类通常有三类锥体细胞,它们的敏感范围相互重叠,可概括为短波、中波和长波更敏感的类型。它们并非各自只报告一种“纯蓝、纯绿或纯红”,大脑更关心三类响应之间的相对关系。进入后续回路后,部分信号还以明暗、红—绿、蓝—黄等对立维度组织。三色编码与对立编码描述的是不同层级的处理,并不互相排斥。
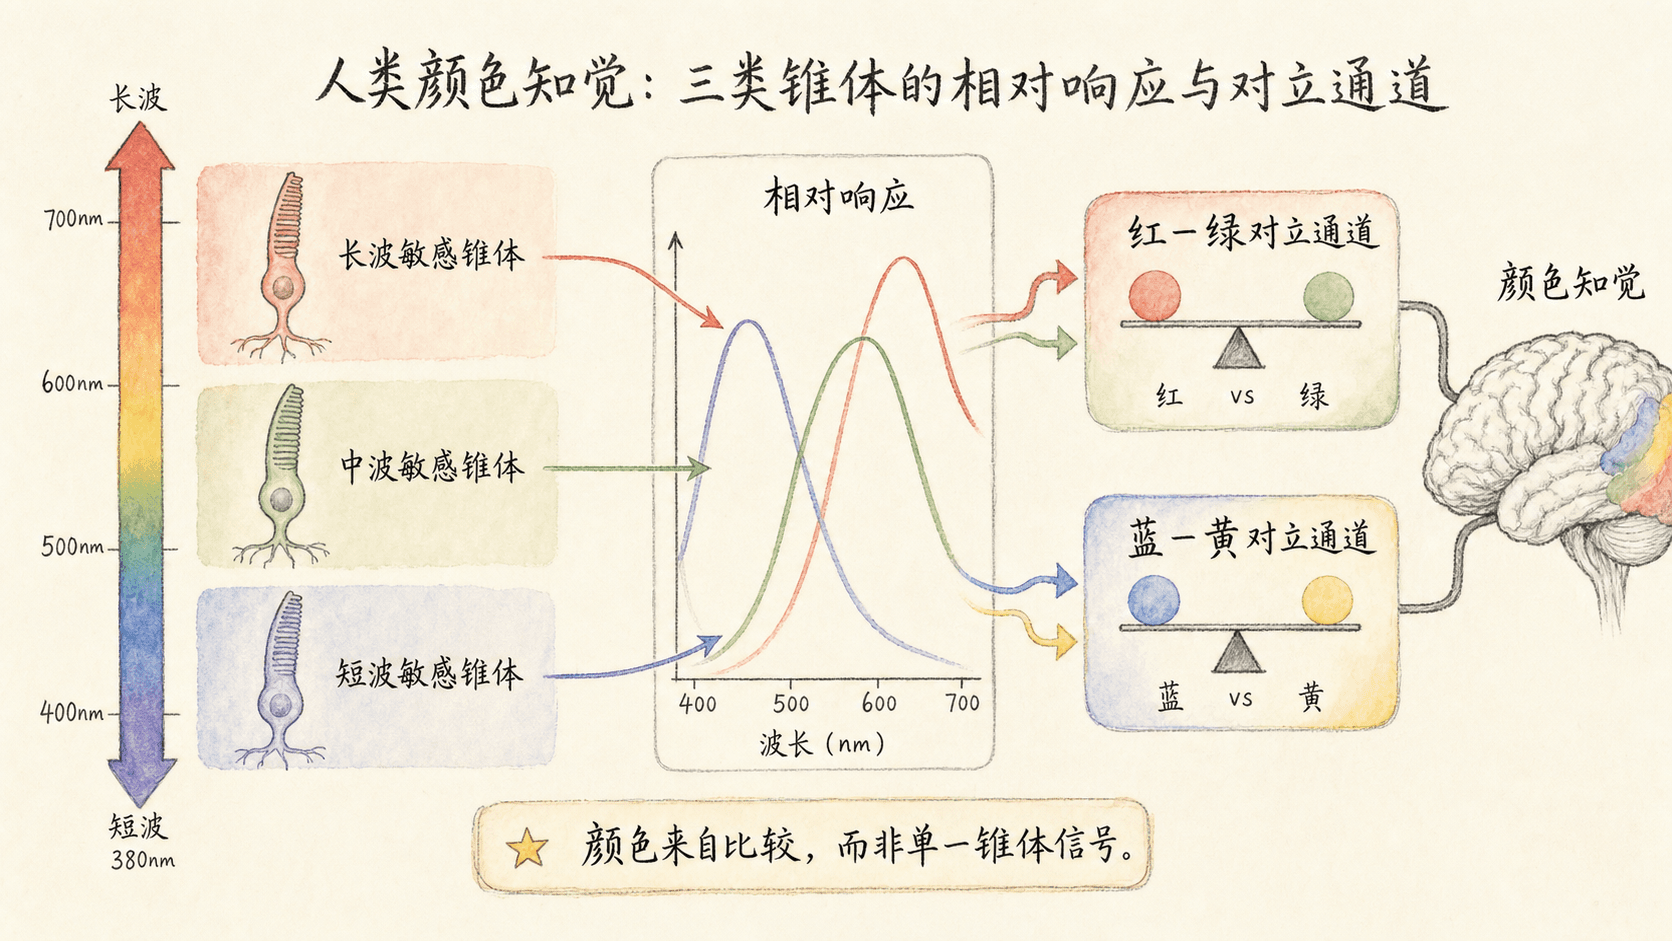
颜色恒常性来自情境比较:大脑会利用场景中许多表面的相对反射关系,估计照明变化后仍较稳定的物体属性。因此,手机滤镜、不同色温灯和邻近色块都可能让同一物体“看起来变了色”。这也解释了为什么仅凭截图的像素值并不能直接等同于人的颜色体验。
试着用三个锥体通道匹配目标色。先凭感觉调节,再观察页面对相对响应和对立维度的反馈,体会“用比例编码”与“给颜色贴标签”的差异。
边缘、方向与层级特征
夜路上最重要的往往不是整片均匀的墙面,而是台阶边缘、车轮轮廓和正在移动的人影。视网膜中的横向连接会让邻近区域相互影响:在亮暗交界处,中心—周围拮抗的回路能够突出局部对比。这种侧抑制有助于标出边界,也会在特定渐变条件下造成马赫带等知觉效果。
视神经的信息在视交叉处部分交叉,多数经丘脑的外侧膝状体到达枕叶的初级视觉皮层 V1;左右半侧视野主要投射到对侧大脑半球。这个通路保持视网膜拓扑关系,但每一站都在改变信息的表达方式。V1 中许多细胞对特定方向、位置或空间频率的边缘更敏感,高级区域再把局部特征整合为形状、表面与场景。
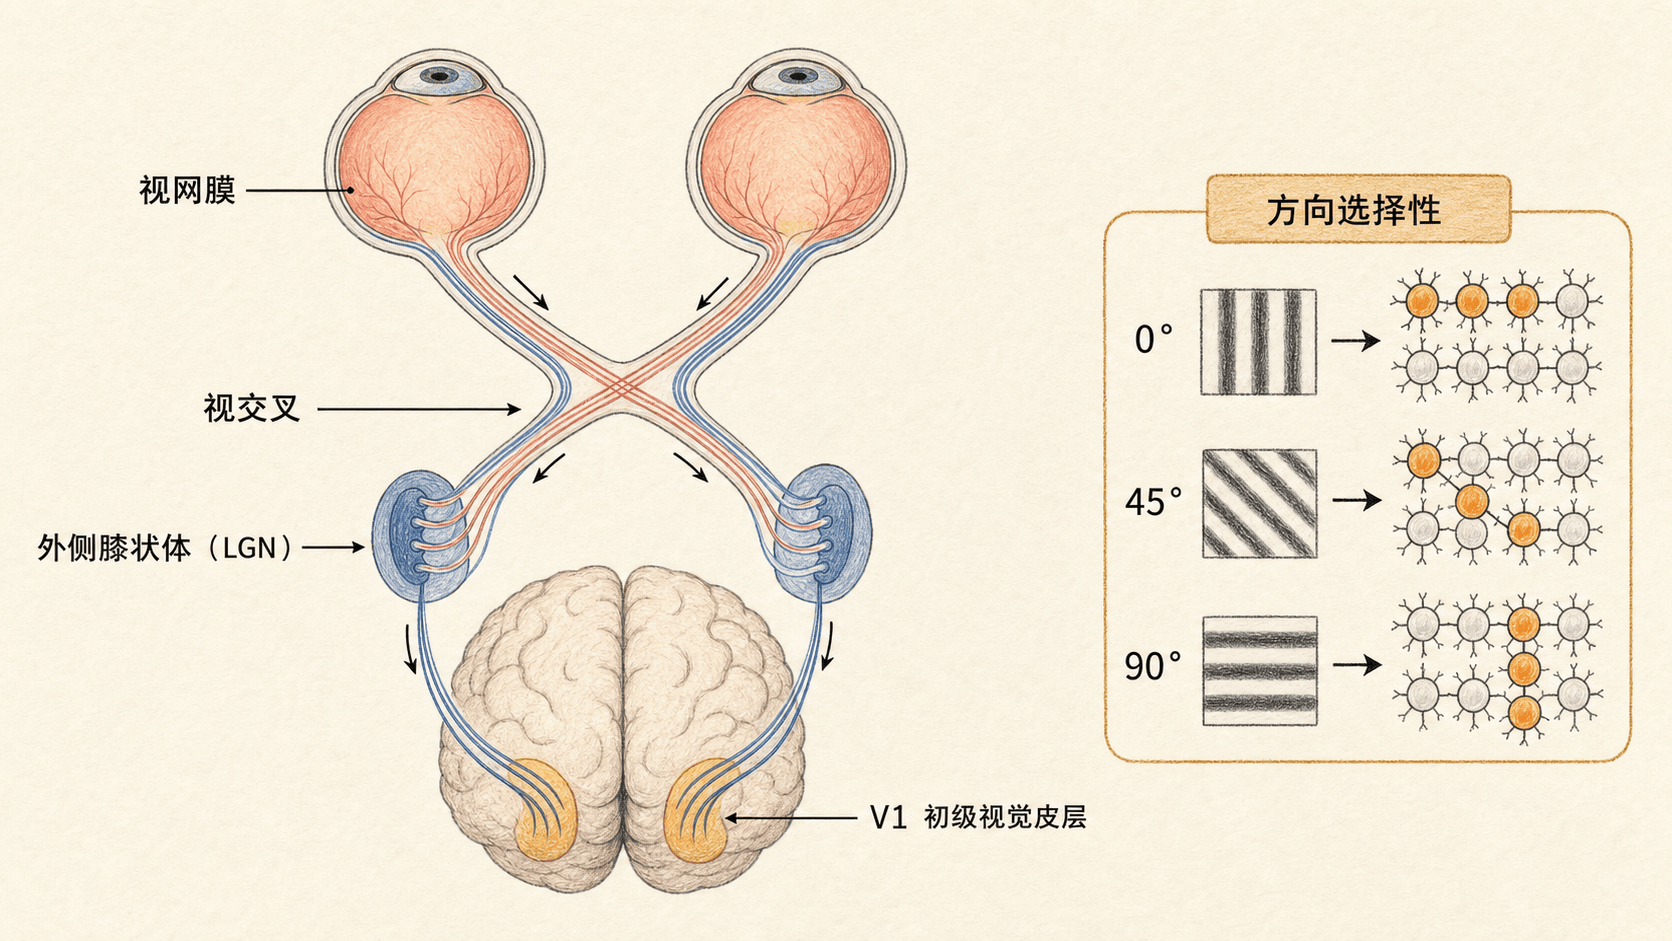
“层级处理”不是一条只许向前的传送带。高阶视觉区会反馈给较早阶段,注意、任务目标和已有经验也会改变我们更容易提取哪些信息。于是小林在寻找熟人的自行车时,可能更快注意到熟悉的车筐颜色;但这种期待也可能使人忽略不符合预期的细节。
休贝尔和维塞尔的经典研究说明,视觉皮层细胞会对边缘方向等结构化特征产生选择性反应。它支持“先提取局部特征、再逐步整合”的思路,但不意味着每个复杂物体在大脑里只由一枚专属细胞负责。
识别、定位与行动
到路口时,小林既要认出前方是朋友,亦要判断朋友相对自己的位置和运动趋势,才能放慢车速并绕开。来自早期视觉区的信息会进入多条相互连接的皮层网络。通向颞叶的腹侧网络更常参与物体、形状和面孔等身份相关处理;通向顶叶的背侧网络更常参与空间关系、运动以及视觉引导动作。更准确的说法不是“是什么”与“在哪里”两条绝对独立的线,而是两组偏重不同任务、持续交换信息的网络。
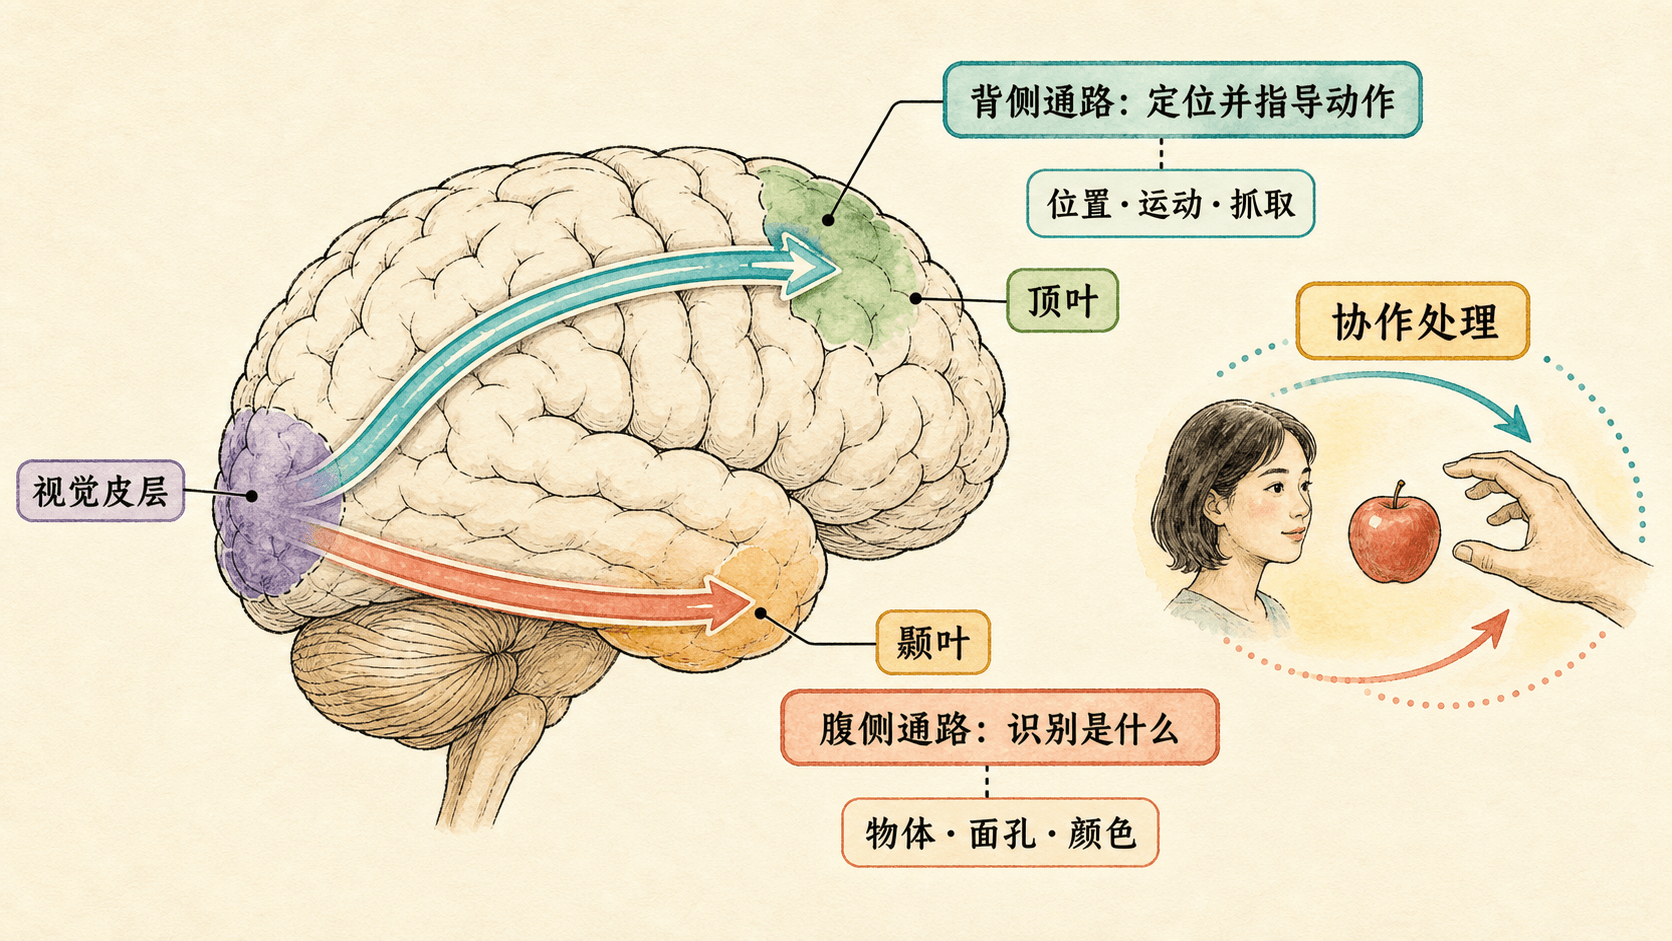
临床上的分离性缺陷为这种功能偏重提供了线索:有些脑损伤患者能描述物体特征却难以依据视觉准确抓取,另一些患者则能在动作中避开物体,却难以命名或识别它们。真实脑损伤通常范围并不整齐,症状会受病灶、任务和个体差异影响,不能把它当成两条通路的简单“开关实验”。
在下面的任务中,同一场景会切换为身份辨认、空间定位和抓取引导。比较自己在不同任务里优先使用的信息,而不是把每次正确回答都归给单一脑区。
经验塑造与早期保护
视觉回路带着遗传提供的基本结构出生,但在发育早期仍需要合适的输入来细化。双眼对同一目标的协调输入尤其重要;若一只眼长期因屈光参差、斜视、先天性介质混浊等原因提供较差图像,大脑可能逐渐更依赖另一只眼,弱眼的视觉发展会受影响。弱视是眼与脑协同发育的问题,不是孩子“不努力看”。
从动物研究得出的敏感期规律,不能机械地换算成人类某个精确年龄或某个固定训练方案;但临床原则很明确:儿童视觉异常越早被发现和规范干预,改善机会通常越好。家长可留意持续眯眼、明显斜视、遮一只眼时强烈抗拒、近距离凑得很近等信号,并按专业建议完成筛查与复查。
先记录情境而非急着贴标签:是远看、近看、弱光、疲劳后,还是单眼遮挡时更明显?这些信息能帮助专业人员追问。
再安排规范视力与屈光等检查,区分屈光问题、眼位问题和其他眼病;家庭自测或网络图片不能替代诊断。
若已接受矫正或遮盖等方案,应按医嘱执行并复查,因为治疗目标是让双眼在发育中获得更平衡、可用的输入。
把一次看见拆开
回到小林的骑行:视网膜把光变成并非冗余的神经代码;中央凹读细节、周边视野报警变化;对比回路突出边缘;颜色由多种相对信号和场景共同决定;V1 等早期皮层提取结构;腹侧与背侧网络把识别、定位和动作组织为同一个及时的决策。主观体验虽然是一幅连贯画面,底层却是并行、反馈和概率性的协作。
6-1
在昏暗道路上,余光比直视更容易先发现侧方移动的物体,最恰当的解释是?
6-2
腹侧和背侧视觉网络彼此完全隔绝,因此一个视觉任务只会动用其中之一。
视觉不是摄像头式复制,而是神经系统在有限输入、当前目标与过往经验之间做出的有效建构。理解这一点,也能帮助我们更谨慎地区分“我看到了什么”与“我据此推断了什么”。