生物学思想的演进与融合
进化理论在不同地区的传播受到大学课程、语言翻译、宗教与政治环境、研究材料和学术网络的共同影响。同一国家内部也有实验遗传学、古生物学、分类学和田野博物学等不同传统,不能用固定的民族性格解释学术差异。更有学习价值的问题是:研究者接受了共同祖先、自然选择或孟德尔遗传中的哪一部分,他们依据什么证据,又在哪些问题上保留异议。
各国生物学思想的差异化接受
不同国家和地区对达尔文主义及其后续演化理论的态度,始终受到各自学术传统、宗教观念、社会文化和政治因素的深刻影响。在早期全球传播过程中,进化观念并非一帆风顺地被各地科学界接受,往往经历了激烈的争论、吸收与改造。
不同地区的理论倾向
20世纪初期,当达尔文的进化观念传播到世界各地时,不同国家表现出了截然不同的接受态度。德国学者普遍较早接受了进化的基本概念,但对自然选择理论却持谨慎甚至批判态度。德国的理论生物学家倾向于强调内在发育规律和结构制约,认为进化不仅是环境筛选的结果,更有赖于生物自身的“建成约束”。
与此同时,英国生物学界虽然接受了“由祖先演化而来”这一基本观点,但真正支持自然选择机制的研究者并不多,主要集中在像阿尔弗雷德·华莱士和约翰·巴特斯等昆虫学家。在英国,许多著名的解剖学家、形态学家更倾向于“渐变”与“多元模型”,对自然选择的效率存疑。
在中国现代生物学发展过程中,我们同样可以观察到类似的现象。20世纪初,北京大学、清华大学等高等学府引进西方生物学理论时,不同学者对于遗传机制和进化理论也存在着明显的观点分歧。在教育与思想启蒙领域,不同学派间的争论,如“孟德尔派”与“拉马克主义者”的对立,也深刻影响了中国遗传学和进化生物学的早期走向。
美国的情况更加复杂。尽管有着阿萨·格雷等知名学者的支持,进化思想在美国的传播遇到了更大阻力。19世纪末到20世纪初,美国学界仍笼罩在“特殊创造论”的影响之下,社会宗教氛围保守,导致主流职业生物学家和古生物学家人数不多,相关研究甚为稀缺。美国的进化学讨论,更多是在作家、神学家和哲学家之间展开,学术界内部的共识较弱。
新知识的传播依赖大学、学会、期刊、译著和公共讨论。法国学界长期保有拉马克主义、居维叶传统和实验生理学等多种路线,对达尔文自然选择的接受并不一致;英国、德国和其他地区内部同样存在分歧。比较传播史时,应考察具体机构、人物和文本,而不是把一个国家视为单一立场。
俄语学术界对达尔文主义的讨论包含支持、修正和批评,也随帝俄晚期与苏联时期的制度变化而改变。若要比较接受程度,需要明确时间、学科和文献样本;用单一高低排名或未经核实的人名概括一个国家,容易掩盖真实的争论。
新达尔文主义的理论建构

随着遗传学的快速发展,对传统达尔文主义的补充和修正逐步展开,新达尔文主义因此应运而生。这一流派强调自然选择与孟德尔遗传理论的结合,否定了获得性遗传可能性,将进化视为基因变异与重组、选择压力共同作用的结果。
遗传机制的新认识
19世纪80年代,奥古斯特·魏斯曼提出胚质连续性思想,区分维持个体的体细胞与连接世代的生殖系。这为解释多数获得性体细胞变化为何不直接遗传提供了框架。现代研究表明,生殖系形成方式在不同类群中并不完全相同,部分表观遗传效应也可跨代,因此应把“魏斯曼屏障”理解为重要概括而非无例外定律。
魏斯曼的主要贡献可以归纳为以下几点:
- 明确否定获得性遗传,将遗传变异的来源聚焦于内在机制;
- 强调有性生殖会重新组合亲本差异,为自然选择提供新的性状组合;
- 用理论论证和去尾实验反对“使用或损伤会直接遗传”的简单版本,但去尾实验本身不能检验所有获得性遗传主张;
- 他的胚质理论包含后来被修正的具体假设,价值主要在于把遗传连续性与体细胞变化区分开。
这些观点推动了新达尔文主义的理论建构,使遗传学与进化理论实现了深度融合。
魏斯曼重视有性生殖对遗传差异的放大作用。减数分裂中的独立分配与交换,加上受精时配子的随机结合,会形成大量基因组合;突变则能够带来新的等位基因。这些过程共同维持群体中的遗传多样性,为选择、漂变等演化机制提供作用对象。
早期的遗传学理论受到孟德尔定律的影响,将遗传视为离散单位(基因)的组合,促成了遗传多样性理论的深化。从魏斯曼到摩根学派的实验遗传学家,科学界对突变、重组与连续变异的贡献有了更细致的实验分解,也激发了对微观遗传现象(如基因突变、染色体变异)与宏观演化趋势(如新物种产生、群体适应性变迁)之间关系的深入探索。
理论发展的曲折历程
但魏斯曼的思想发展并非一帆风顺。他本人在科学探索之初,尚未完全摒弃软遗传的观点。1872年,他曾参与莫里茨·瓦格纳与达尔文关于地理隔离作用与新物种产生机制的学术争论,当时尚未表现出对分隔与变异重要性的清晰理解。1870年代后期,魏斯曼在一些讲演中仍然不同程度地表达了获得性遗传的可能性。直到1883年,他才通过一系列理论分析和动物断肢实验,明确拒绝软遗传,并在随后几年中集中研究“重组”(两性融合)的遗传效应,这在当时是非常前沿的科学观点。
魏斯曼把有性生殖、遗传差异与自然选择联系起来,为后来研究重组的演化意义提供了问题框架。不过,有性生殖为何能够长期维持,仍需结合环境变化、寄生关系、清除有害突变等多种假说来解释。
随着年龄的增长和学科前沿的发展,魏斯曼对单一自然选择理论逐渐产生疑虑。在他60岁之后,提出了新的观点,主要包括:
- 提出“胚质选择”假说,试图在个体以下层次解释遗传单位之间的差异;这一历史假说与现代基因调控理论并不等同。
- 在解释变异来源时保留过一些后来未被证据支持的设想,说明新理论的建立并非一次完成。
- 围绕遗传稳定性、变异来源与选择层次的争论,促使研究者把宽泛的进化叙述转化为可以检验的遗传学问题。
魏斯曼及其后继者的工作表明,遗传学与进化学的结合经历了持续修正。实验结果、群体观察和数学模型逐渐建立起共同语言,现代综合进化论正是在这种长期积累中形成的。
进化学者之间的分歧
学科分化带来的隔阂
19世纪后期,生物学迎来了新的繁荣,随之而来的是学科的高度专业化。例如,动物学、植物学逐步分化出胚胎学、细胞学、遗传学、行为生物学、生态学等诸多子领域。这种细致的专业分工推动了知识的深入,但也导致研究对象和理念的差异,促使实验生物学家和自然历史学派之间出现了显著的隔阂。
实验派学者通常注重实验室中的控制性研究和定量分析,强调“直接原因”(proximate causes)的解释。他们大多具备物理、化学、数学等理工背景,因此强调可重复性,以及理论假设的定量检验。例如,贝特森、德弗里斯、约翰森与摩根等正是这一派别的代表人物。
这种学科分化不仅在西方发生,在中国现代生物学的发展脉络中也非常明显。例如,中科院下属的部分研究所专注基础理论和机理探索,而农业科学院则聚焦应用技术与品种改良。二者在人才培养、评价体系、研究范式等方面存在显著差异。这既促进了分领域的专业进步,也对学科之间的交流和协作带来挑战。
相比之下,自然主义者(naturalists)延续了达尔文时代传统,他们关心“终极原因”(ultimate causes)——即生物多样性、适应性的历史来源。他们注重整体观察和长期实地调查,关注物种演化、群体适应与生态过程。古生物学家、分类学家和野外生态学家常通过化石、田野采集和系统分类等方法,揭示生物多样化的历史轨迹。他们认为实验室的简化模型难以还原大自然真实的复杂性,“走进自然”才是理解生命演化的根本路径。
此外,这一分歧还体现在学术评价体系和职称晋升等实际层面——有的体系强调可控实验与学术论文的标准化,有的则更加推崇对自然多样性的田野调查与新物种描述。这些差异在现代学术生态中持续发挥影响力。
研究层次的根本差异
双方分歧不仅限于研究手段,更源于彼此关注的自然现象层次结构不同:
-
实验遗传学家:早期主要在个体、杂交家系和染色体层面研究离散性状,重视控制条件与计数。群体遗传学家后来用数学模型描述等位基因频率变化;这两类工作不能都概括为“基因中心论”。
-
自然历史学家:则聚焦于群体、种群甚至更高分类单元,如属、科、纲。他们通过跨越地理和时间尺度的实地观察,考察物种形成、环境适应和生物多样性的产生机制。例如,比较不同地理隔离群体的变异,就揭示了生态适应和物种隔离的复杂性。环境因素、气候变化与地质运动等多重影响,也成为他们建构进化理论不可或缺的部分。
下面梳理两类学者的典型关注层面:
遗传层面的结果不能不经转换就解释物种或生态系统,宏观模式也不能只靠描述就确定分子机制。现代综合进化论的重要任务,是把个体遗传差异转化为群体中等位基因频率和性状分布的变化,再讨论种群分化与物种形成。后来发展的层次理论进一步研究不同组织层次之间的关系,不是综合论形成前的直接基础。
这种连接并不容易。控制实验擅长分离少数变量,野外资料保留真实环境却包含更多混杂因素;两者需要用共同定义、可比较样本和群体模型对接。方法差异不等于一方只看单因子、另一方天然更全面。
归根结底,学科分化的深化使研究领域不断拓展,但也让跨领域交流和理论整合成为生物学持续创新的动力之一。正是在“进化是渐进还是跳跃?”等核心议题上,这种分歧带来了持续的学术张力和前进动力。
渐进进化与跳跃进化的激烈争论
生物群体通常包含遗传和表型差异,有性生殖通过重组产生新组合,无性生物也可由突变、水平基因转移等过程产生变异。演化作用于可遗传差异;环境造成但不能传递的变化不会直接改变下一代的等位基因频率。
按表型分布,性状可表现为连续或相对离散。身高等数量性状在特定群体中常近似连续,但分布未必是正态,也会受年龄、性别、环境和取样方式影响。离散表型也不一定由单个大突变造成,多基因阈值和发育过程都可能产生类别差异。
连续变异是一类“频率随性状数值平滑过渡”的变化,无明显界限;而不连续变异则是在特定极端,出现远离主群体的少数类型,从而形成单独高峰。这两种变异共同塑造出群体内外的多样性,是理解遗传与自然选择的理论基础。
不连续变异指表型落入若干较清楚类别,例如某些花色或血型。它可能由单个位点、多基因阈值、染色体变化或发育机制产生,不能仅凭外观跳跃就认定是“大突变”或新物种。19世纪末至20世纪初,研究者围绕这类差异能否解释物种形成展开争论,遗传实验随后让问题变得可检验。
达尔文的渐进主义立场
达尔文主要用大量微小、可遗传的个体差异来解释长期演化,认为自然选择能够在许多世代中积累这些差异。他也讨论过明显变异,但不把单个极端个体视为物种形成的一般机制。19世纪的遗传机制尚不清楚,混合遗传等设想又会削弱稀有变异,因此“差异如何保存并传给后代”一直是渐进解释面临的难题。
后来遗传学表明,颗粒式遗传并不会让等位基因在每代繁殖中被简单稀释;数量性状的连续分布也可以由许多遗传位点与环境共同造成。突变在遗传层面可能是离散事件,群体性状的变化却既可能细小渐进,也可能在特定条件下较快发生,两者并不矛盾。
贝特森的不连续变异理论
相比之下,威廉·贝特森(William Bateson,1861—1926)格外关注不连续变异。他早年研究动物形态与胚胎发育,后来系统整理自然群体中突然出现的形态差异,并推动孟德尔遗传学在英语世界传播。对他而言,先弄清变异有哪些形式、怎样遗传,才能判断选择能够产生什么结果。
贝特森在《用于研究变异的材料》中汇集了大量案例,试图用可观察的性状差异检验渐进主义。他倾向于认为不连续变异在物种分化中具有较大作用,这一判断后来被证明过于概括;但他把“变异的类型与遗传方式”推到研究中心,促使进化问题接受更严格的实验检验。
德弗里斯的突变理论
突变主义的兴起
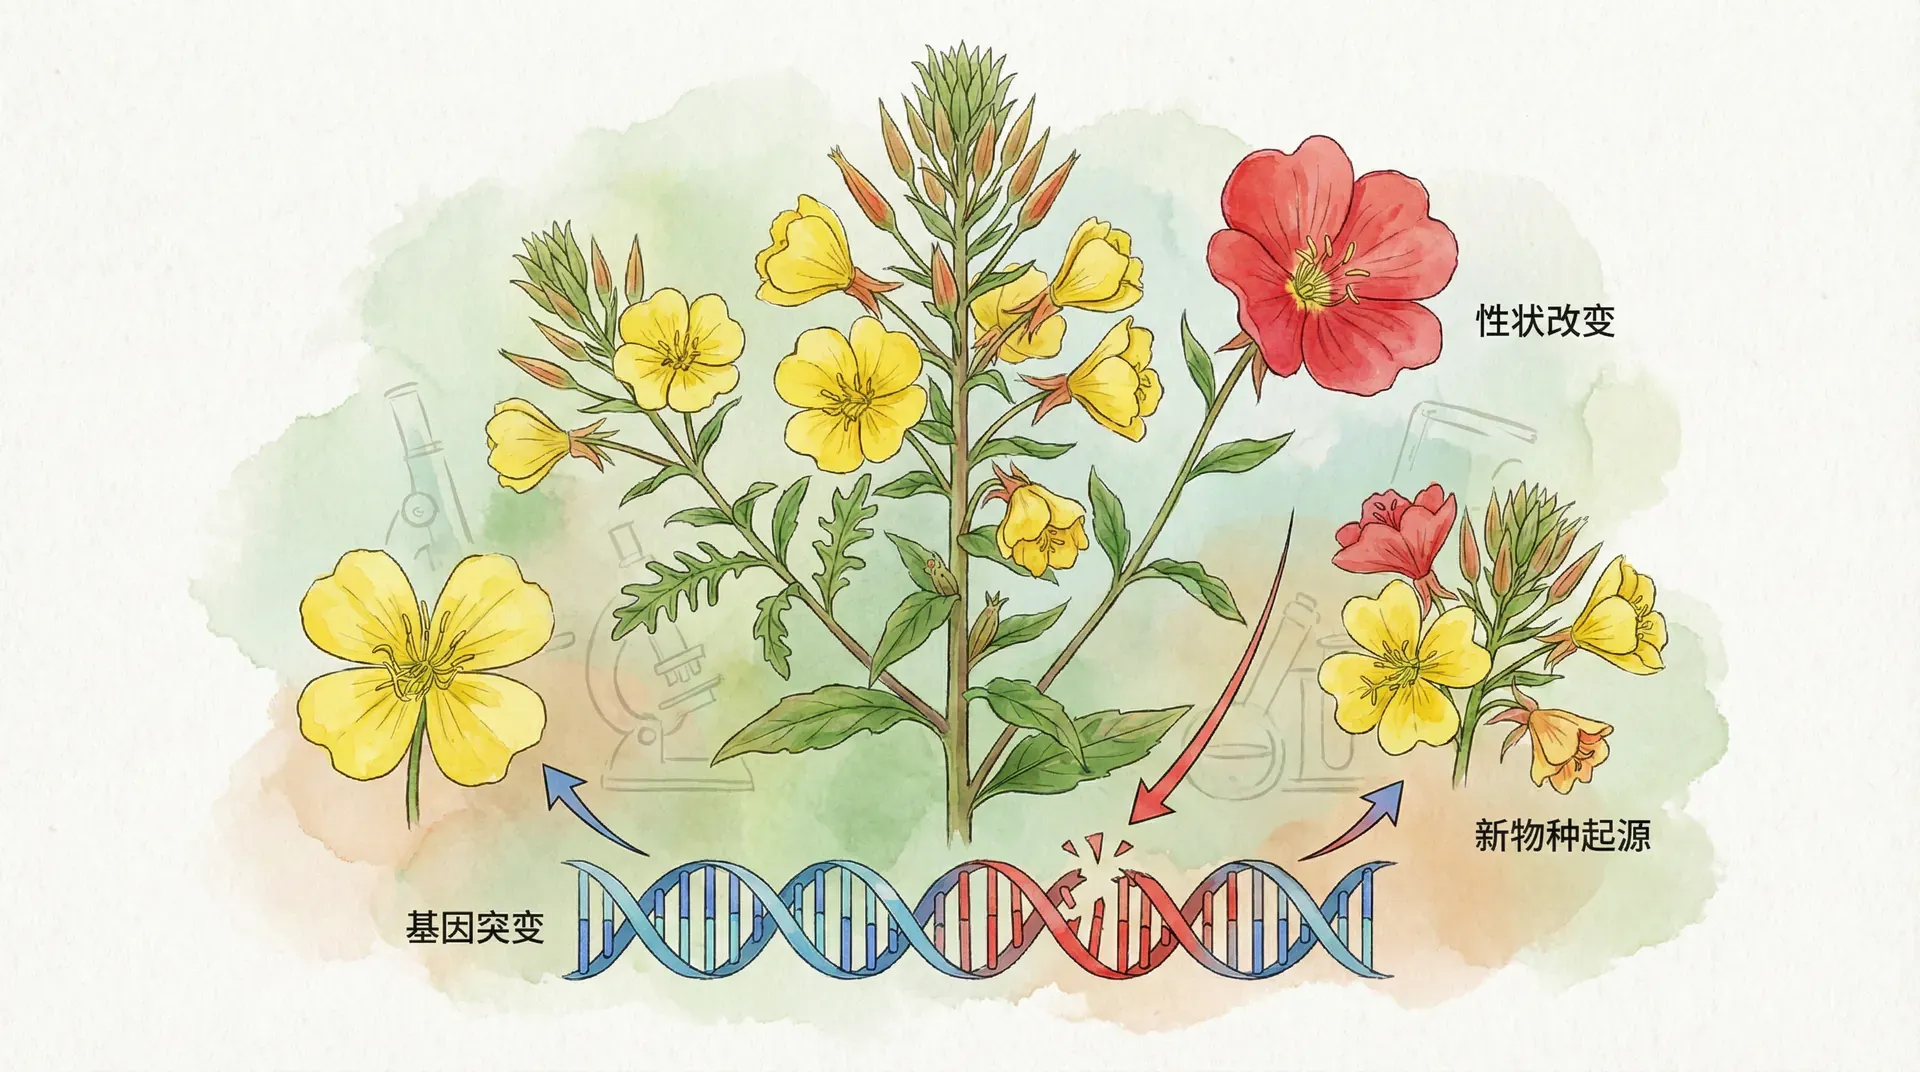
德弗里斯在1901年和1903年出版的著作中系统提出突变说,主张新类型可以突然出现,并把这种变化看作物种形成的重要动力。这一观点对当时只强调微小连续差异的解释构成挑战,也推动研究者更认真地区分遗传变异与环境造成的表型变化。
他的主要局限在于把形态上明显的新类型过快地等同于新物种,没有充分考察种群中的基因频率、生殖隔离和生态分化。现代演化生物学区分“突变发生”与“突变在群体中扩散”:新的遗传变异只是起点,它的后续命运还受选择、漂变、基因流和种群结构影响。
德弗里斯对月见草的栽培观察为突变说提供了重要材料。后来细胞遗传学研究发现,月见草具有复杂的染色体重排和特殊遗传方式,一些突然出现的类型不能简单代表普通基因突变,更不能直接证明新物种通常由一次“大跳跃”形成。这个案例也说明,选用何种研究材料会深刻影响理论判断。
早期孟德尔主义者的观点
20世纪初,突变说与重新受到关注的孟德尔遗传学相互推动,使离散性状和大效应变异成为研究热点。一些早期遗传学家据此认为,突变本身足以造成新物种,自然选择主要负责淘汰不合适的类型;自然史研究者则强调连续变异、地理分化和长期选择。双方使用的材料和尺度不同,因此一度得出相互冲突的结论。
-
突变动力论
认为每一次进化改变都依赖于全新且明显的大突变,突变本身就是进化的全部动力。
主要缺陷: 忽视自然选择的作用,实际多数突变无效或有害,只有极少有益突变可被积累。 -
选择微弱论
认为自然选择只能消除明显有害的突变,对创造新性状基本无作用。
主要缺陷: 低估了自然选择累积微小有利变异、推动适应性演化的作用。 -
连续变异无新论
认为连续变异或基因重组只是性状的简单混合,不能产生真正的新特征。
主要缺陷: 误解了遗传原理,事实上连续变异为数量性状提供基础,是进化的重要原材料。 -
非遗传性变异论
主张大多数连续个体变异只是环境因素引起的噪音,不具有遗传性。
主要缺陷: 错误否定了微小连续变异可遗传的事实,而这些变异正是渐进演化的主要来源。
进化遗传学的重要进展

新遗传学的关键发现
20世纪初,德弗里斯、贝特森和约翰森分别从突变、不连续变异和纯系实验出发,提出了不同解释。它们都揭示了真实现象,却不足以单独说明自然群体中的多样性如何产生、保持并改变。后续研究的关键进展,是把实验室中的遗传单位与群体尺度的演化过程连接起来。
摩根学派的果蝇实验支持基因位于染色体上,并揭示连锁、交换与突变等现象。这里建立的是遗传学与染色体行为之间的联系;DNA作为遗传物质及基因的分子机制,则是随后几十年才逐步明确的。育种、实验选择和自然群体研究又显示,许多连续性状具有可遗传成分,小效应差异也能在多代选择下造成明显变化。
对演化解释至关重要的一系列新遗传学发现包括:
- 遗传变异有不同尺度:碱基改变、染色体重排和基因组倍增等变化的范围不同,对表型的影响也受遗传背景与环境影响,不能归为单一类型。
- 突变的效应取决于情境:多数新突变效应很小或不利,也有近中性或在特定环境中有利的变异;群体大小会影响它们被漂变或选择改变的概率。
- 重组会产生新的组合:独立分配、染色体交换和受精可重新组合已有等位基因,但新的等位基因仍主要来自突变等过程。
- 连续性状与颗粒遗传相容:许多数量性状受多个位点、环境及其相互作用影响,群体中可呈连续分布,却仍遵循遗传单位的传递规律。
- 基因作用具有网络性:同一基因可能影响多个性状,一个性状也常由多个基因参与,选择因此可能产生相关响应和权衡。
- 群体变化需要多机制解释:选择、漂变、基因流与突变共同改变等位基因频率;观察到性状变化并不意味着每项变化都具有适应意义。
这些发现使“突变还是渐变”的二选一争论失去必要性。遗传事件可以是离散的,群体演化的时间尺度和表型轨迹却由多种机制共同决定。
数学群体遗传学的建立
1908年,哈迪与温伯格分别说明,在随机交配且不受选择、突变、迁移和随机漂变显著影响的理想群体中,等位基因与基因型频率具有可计算的稳定关系。非随机交配可直接改变基因型比例,却不一定单独改变等位基因频率。这个零模型让研究者能把观察到的偏离转化为需要解释的问题。
继哈迪-温伯格之后,诸如费希尔(Fisher)、霍尔丹(Haldane)、赖特(Wright)等人更进一步建立了完整的群体遗传学数学体系。他们探讨了包括群体规模、突变率、选择强度和随机漂变等因素对群体基因频率变动的影响。例如,费希尔系统分析了微小选择优势在“看似平稳”的群体内仍可导致基因型频率快速变化,为自然选择驱动群体进化提供了坚实理论基础。
在中国,群体遗传学同样经历了快速发展。自20世纪50年代起,中科院遗传所、复旦大学等研究单位,通过对小麦、水稻、油菜、玉米等重要作物群体的遗传多样性研究,深入探索了群体遗传结构与进化机制,为遗传育种与生物多样性保护提供了理论依据。近年来,随着高通量测序等分子工具的普及,群体遗传学在中国的生态保护和农业发展中的应用前景愈加广阔。
早期群体遗传学利用数学模型研究弱选择、突变、迁移、近交和随机漂变如何改变等位基因频率。尤尔(G. Udny Yule)、费希尔、霍尔丹和赖特等人的工作表明,即使选择系数较小,长期效应也可能累积;但变化速度同时取决于显隐性、初始频率、群体大小和随机性,不能脱离模型条件声称必然发生大幅改变。
如今,数学群体遗传学已成为现代进化生物学不可或缺的理论基础。它不仅解释了自然种群的遗传组成,还在疾病基因预测、农业遗传优化与生物多样性管理等前沿领域发挥着至关重要的作用。
进化系统学的贡献
自然主义者的独特洞察
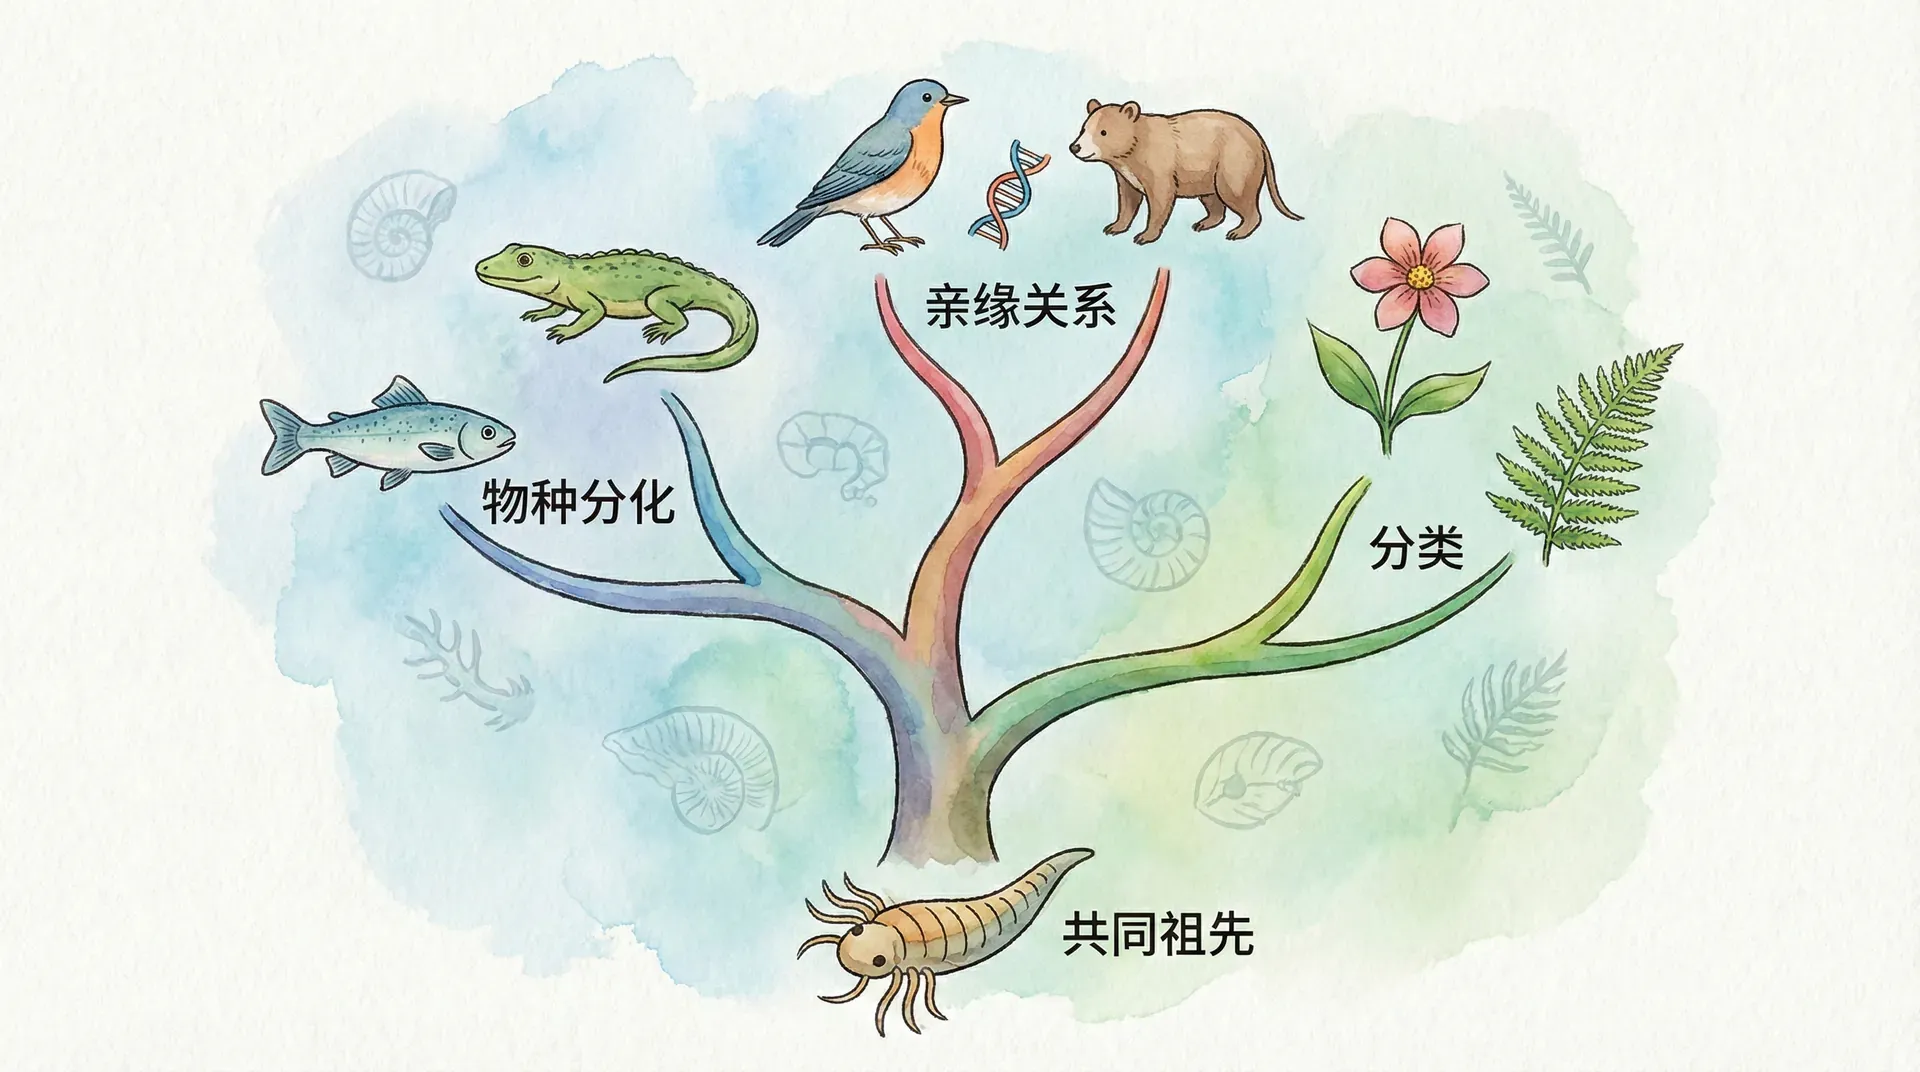
进化生物学的整合也依赖系统学、自然史和生物地理资料。切特韦里科夫把孟德尔遗传学与自然种群中的隐性变异联系起来,强调野外群体能够保存大量遗传差异。这类工作让数学模型可以与自然群体数据对接,而不是停留在实验品系中。
自然主义者长期关注物种的区域变异与地理分布,其主要研究与观点包括:
- 布丰:在分析北美动物时,认识到相近物种间存在广泛变异。
- 帕拉斯:在西伯利亚动物种群研究中,提出了相似的区域变异观点。
- 格洛格:发展了物种在不同地理环境下的分化理论,提出了著名的“格洛格法则”(即动物颜色随气候变迁而改变),强调生物类型的形成与生态适应多样性密切相关。
19—20世纪,长期关注自然分类学和生态环境的系统学家们,敏锐地捕捉到不同地理种群的内在演化差异,并系统揭示了物种多样性产生的生态动力。
中国作为生物地理多样性极为高的地区,山脉等地理屏障对动植物种群的遗传分化有着极其深刻的影响。秦岭、横断山脉和青藏高原等地区均是多种生物地理分化与物种形成的“实验场”,大量观测和分子遗传分析显示,这些屏障对于群体的基因流限制和地方性适应具有决定性作用。这一类型的大尺度自然史研究,为后来群体遗传学理论提供了强有力的实证基础。
自然主义者的最大贡献,在于观念的变革。在类型学思维占主导地位时,自然选择、物种形成与适应等演化问题往往被僵化、片面地理解。而群体思维强调:物种不是某种永恒不变的本质类型,而是由大量在遗传和生态上相互作用的个体组成的变异群体。正是在这种多样性视角下,生物学家开始理解自然选择以及复杂生境下的适应性进化过程。
物种概念的革新
生物学史上,物种问题长期困扰着遗传学家和分类学家。经典遗传学往往避开该问题,或以类型学方式将物种等同于某类“特征集合”,忽视了自然界丰富多样的繁殖隔离和生态分化现象。正是自然主义者和系统学家提出了“物种即自然群体聚合体”的观点,从而突破了传统本质主义的束缚。
按照自然主义者的创新理解,物种并不具有静止不变的内在本质。它们是由一系列在地理空间分布、生态位占据和生殖隔离等方面均呈现出明显分化的自然群体所组成。这一观点不仅直接影响了后来的“生物学物种概念”(biological species concept),如迈尔(Mayr)所强调的生殖隔离,而且也推动了对地理型、生态型、亚种等多层次系统分类模板的发展。
对物种本质的更新理解还体现在对分类单元和范畴的区分上。用哲学的语言来说,“物种”这个词类似于“兄弟”“姐妹”这样表示关系的集合概念,物种本身是一个“个体”,而隶属于它的每一个生物体是这个个体的“部分”。这一转变改变了生物分类和进化研究的基础方法。
这种群体性、动态性的物种新观念为当代中国生物多样性的保护与管理提供了理论基础。无论是大熊猫、华南虎等旗舰濒危动物的保护规划,还是珙桐、银杏等珍稀植物的种质保存研究,皆以生殖隔离群体与生态分化为单位,结合分子标记和群体遗传方法,有效指导了濒危物种的保护管理与自然资源的可持续发展。
进化综合论的形成
学派融合的历史条件
20世纪前几十年,实验遗传学家常研究少数性状在若干世代中的传递,自然史研究者则面对地理分布、物种差异和化石记录。研究尺度与证据形式不同,使双方对突变、连续变异和自然选择的作用产生长期分歧。
数学群体遗传学逐步说明,孟德尔式遗传可以与连续的群体变化相容。与此同时,研究自然群体的遗传学家开始测量野外变异,系统学家和古生物学家也尝试用群体过程解释物种与化石模式。20世纪30至40年代出版的一系列著作把这些线索组织成现代综合进化论,其核心认识包括:
- 群体是演化变化的重要尺度:演化可以用等位基因频率及性状分布在世代间的变化来描述。
- 遗传变异与多种过程共同作用:突变和重组产生或重排差异,选择、漂变与基因流改变差异在群体中的分布。
- 微观过程可以联系较长尺度的模式:种群分化、生殖隔离和灭绝等过程能够连接遗传变化、物种形成与化石记录,但不同类群的路径并不完全相同。
综合论的核心架构师
杜布赞斯基、赫胥黎、迈尔、辛普森、伦施和斯特宾斯的著作分别连接遗传学、动物学、系统学、古生物学与植物学,因而常被视为综合论形成过程中的代表性成果。这里的“综合”是多人、多学科持续交流的结果,并非六位学者在同一时刻提出一套封闭理论。
| 姓名 | 领域 | 桥接 | 主要贡献 | 代表作 |
|---|---|---|---|---|
| 杜布赞斯基 | 群体遗传 | 遗传学-自然主义 | 融合实验遗传学与野外群体研究,奠定综合论基础 | 《遗传学与物种起源》(1937) |
| 赫胥黎 | 动物学 | 多领域-综合 | 整合各分支成果,建立统一进化理论框架 | 《进化:现代综合》(1942) |
| 迈尔 | 系统学 | 系统学-遗传学 | 提出“生物学物种”概念,强调地理隔离作用 | 《系统学与物种起源》(1942) |
| 辛普森 | 古生物学 | 古生物-遗传学 | 化石进化模式与遗传机制兼容 | 《进化的节拍和模式》(1944) |
| 伦施 | 动物学 | 地理变异-遗传学 | 研究地理变异,推动欧洲进化思想现代化 | 《种级以上的进化》(1947) |
| 斯特宾斯 | 植物学 | 植物-遗传学 | 推动综合论在植物界,关注杂交和多倍体 | 《植物中的变异与进化》(1950) |
形成综合论的基础远比这张表广泛。费希尔、霍尔丹和赖特建立了群体遗传学的数学框架;切特韦里科夫把这些思想用于自然群体;果蝇、育种、生态与系统分类研究又不断提供可检验的数据。不同国家的研究传统彼此影响,才使遗传机制与野外演化模式逐渐进入同一解释框架。
现代综合论把孟德尔遗传、群体遗传模型与自然种群、系统学和古生物学证据连接起来,化解了部分“连续变异与颗粒遗传是否相容”的争论。它仍没有终结进化生物学,后来关于中性演化、分子进化、发育偏向、水平基因转移和多层次选择的研究继续扩展框架。
综合的本质特征
综合论不是达尔文理论的最终形态,而是20世纪中叶一次影响深远的理论整合。它让实验遗传学家关注的遗传单位、自然史研究者观察到的群体差异,以及数学模型中的频率变化能够相互检验。
这次整合也没有让所有分歧消失。它较好地解释了许多群体遗传和物种形成问题,后来关于中性演化、分子机制、发育约束与基因组演化的研究则继续修正和扩展其适用范围。学习综合论的重点,是理解证据怎样跨越不同尺度建立联系,而不是把它当作进化研究的终点。
因此,说综合论仅仅是自然主义者接受遗传学较新发现是不正确的。这将忽略自然主义者贡献的众多概念:群体思维、多型物种的多维性、生物学物种概念(物种被定义为生殖和生态自主实体)、行为和功能变化在进化新颖性起源中的作用,以及对多样性进化的整体强调。所有这些概念对于充分理解进化都是不可或缺的,但它们在实验遗传学家的概念框架中实际上是缺失的。
短期来看,可能是对一些误解的反驳对进化生物学产生了最大影响。这包括软遗传、跳跃进化论、进化本质主义和自发进化理论。综合论明确确认了自然选择、渐进主义、进化的双重性质(适应和多样化)、物种的群体结构、物种的进化作用以及硬遗传的压倒性重要性。
尽管这相当于大幅缩小了进化论者可用的选择,但它留下了许多问题未解决。这些问题分为两类,由这两个问题表示:
- 给定现象的含义是什么(选择、渐进进化、生物学物种等)?
- 给定的进化原理或现象在个别情况下实际上是如何运作的,这又提出了什么新问题(应用于选择、隔离、变异的产生、随机过程等)?
总结
进化生物学的发展充分说明,科学理论的完善依赖于不同学派与观念的交流与整合。达尔文提出进化论后,各领域学者曾在进化机制和遗传本质等问题上存在明显分歧,直到20世纪中叶,遗传学与自然主义逐步结合,形成了现代进化综合论,为理解生命多样性奠定了基础。
中国生物学家一方面学习西方理论,另一方面结合本土资源与观察,推动了理论创新。科学进步离不开批判、融合与创新,这成为推动理论发展的共同动力。
如今,进化生物学不仅解释了生命演化的基本规律,也为医学、生态和相关领域提供了重要理论支撑。随着新科技的发展,我们对进化过程的理解还会不断深化,进化论的综合与创新精神将持续影响科学探索。