减数分裂与性生命周期
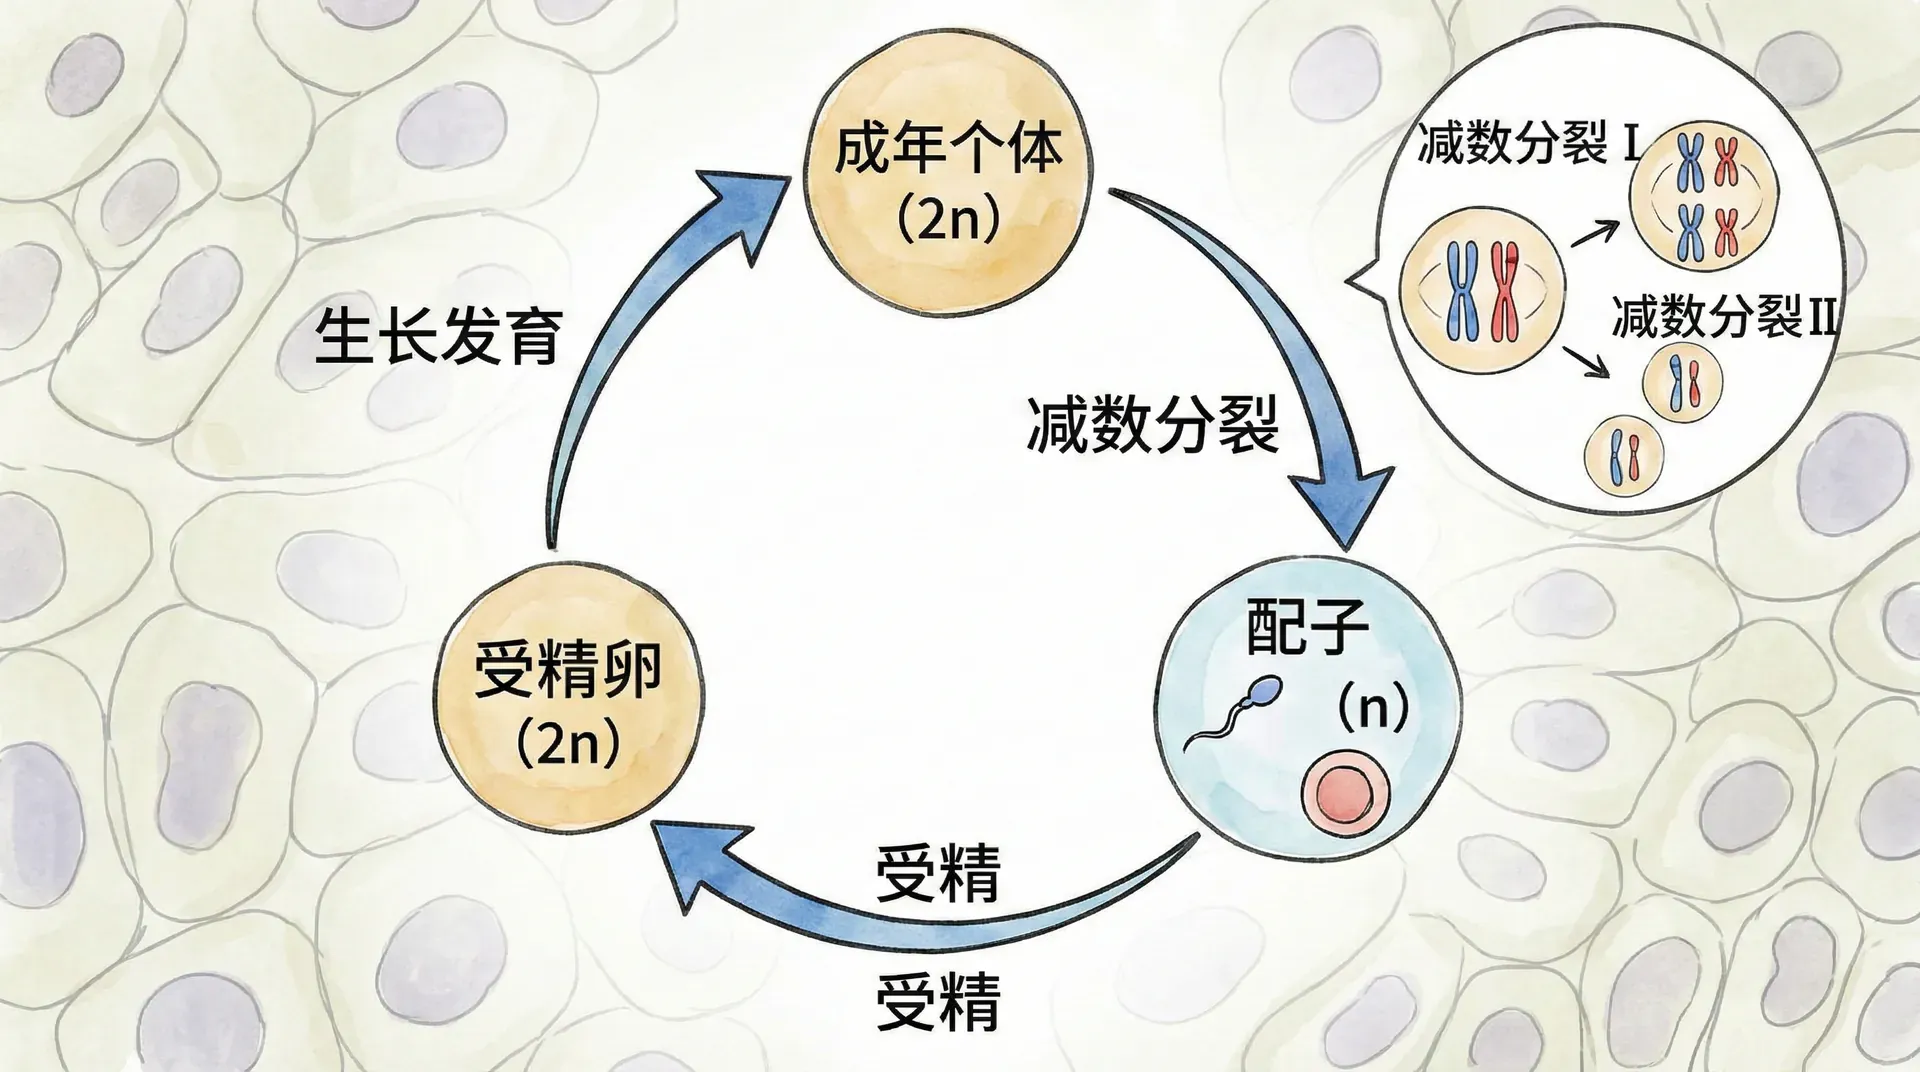
同胞兄弟姐妹会共享一部分遗传变异,却通常拥有不同的等位基因组合。眼睛颜色、面部结构和身高等性状还会受到多个基因与环境的共同影响,因此子女既可能在某些特征上像父母,也不会成为任何一方的复制品。
减数分裂把二倍体细胞中的同源染色体分开,形成染色体数目减半的细胞。独立分配和同源染色体之间的交换会产生新的等位基因组合,再加上受精时配子的随机结合,使有性生殖后代具有丰富的遗传差异。
遗传学的基础认知
遗传现象的观察
观察一个家庭时,常能发现某些特征在亲属间相似,另一些特征差异明显。仅凭照片很难把某个复杂性状准确归因于父亲或母亲;可靠分析需要明确性状的测量方式、家系信息,并考虑环境和发育条件。
除了外貌特征,像血型、身高、疾病易感性等也在家族成员之间代代相传,但每个人又总有自己独一无二的地方。
遗传学是研究生物如何将自身的遗传信息传递给后代,以及这些信息在后代之间为何会出现差异(即变异)的科学分支。它帮助我们科学解释为什么子女既“像”父母,又“有不同”,为我们揭示了生命延续和进化的奥秘。
父母通过配子把DNA中的遗传信息传给子女。基因型会影响许多性状,但外貌、体质和行为等复杂表现通常由多个基因、发育过程与环境共同形成,不能从某段DNA直接推导出完整的人格或命运。
基因与染色体的关系
基因是能够产生功能性RNA或参与其调控的DNA序列单位。血型中的某些差异可以由少数基因解释,身高和肤色等性状则涉及许多位点及环境因素。染色体为基因、调控区和其他DNA序列提供了有序的物理载体。
这些基因被有序地排列在23对染色体上。可以把人类的全部遗传信息比作一套内容丰富的百科全书,每条染色体就像其中的某一本书,而基因则是每本书中的不同条目。和书一样,每个人的遗传百科全书由父母各贡献一半:一半的染色体来自父亲,一半来自母亲。因此,我们既是父母基因的“拼图”,又在无数基因位点和排列组合中产生了全新的特征。
这样的遗传结构,使得生命的延续既有“稳定性”,也具备了“变化性”。正因为如此,家族成员间既有很多相似之处,又保持着各自的独特性,这也是自然界物种多样性和进化的基础。
繁殖方式的对比分析
无性繁殖的特点
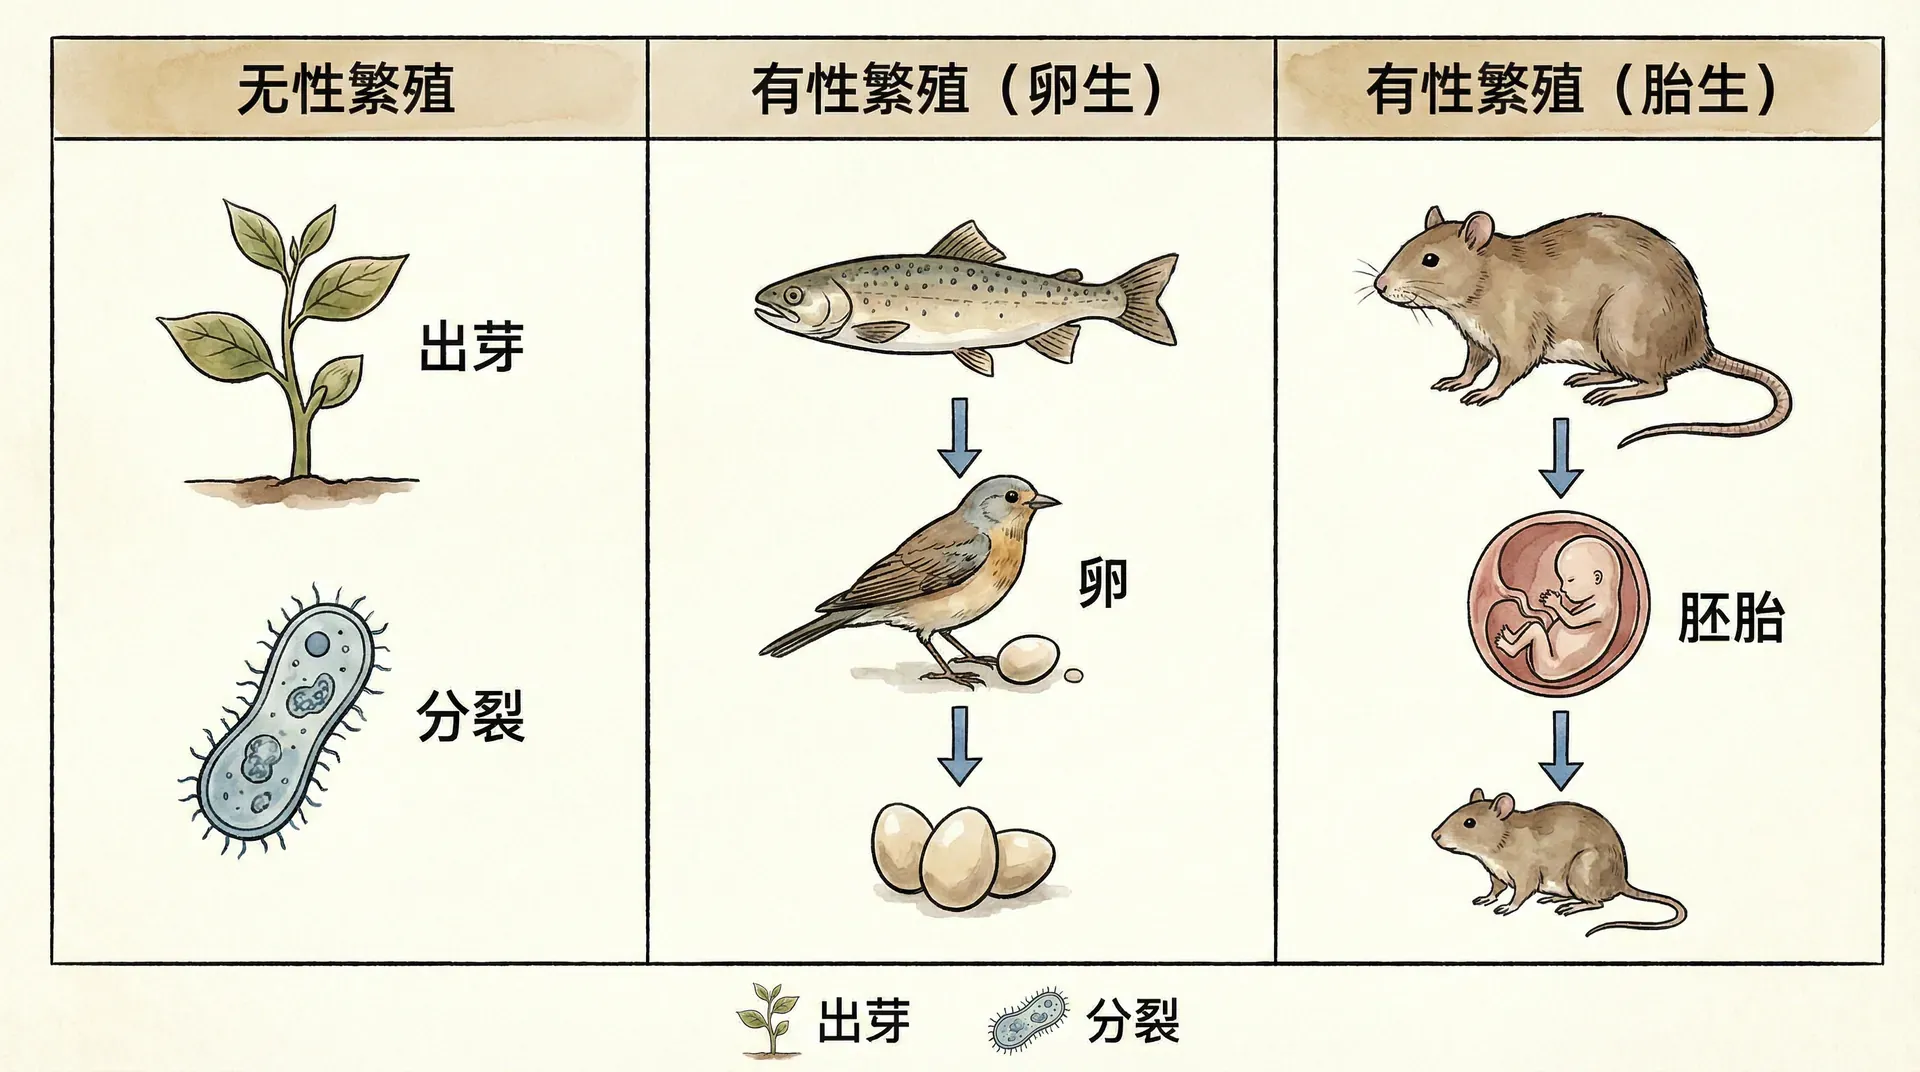
在生物界,繁殖的方式主要分为无性繁殖和有性繁殖。无性繁殖是一种只需要一个亲本,不经配子融合的新个体产生方式。比如我们日常熟悉的马铃薯可以通过块茎繁殖,竹子可以通过地下茎蔓延扩展,这些都是典型的无性繁殖。
无性繁殖产生的后代通常与亲本具有高度相似的基因组,但DNA复制错误、转座活动和染色体变化仍可产生变异。植物的营养繁殖还可能保留嵌合体或表观遗传差异,所以“克隆”并不意味着所有个体在基因和表型上永远完全相同。
无性繁殖不必寻找配偶,在某些条件下能够快速增加数量并保留已有的有利基因组合。遗传组成较单一的种群在面对新病原或环境变化时可能更脆弱,但实际结果还取决于突变、种群规模、传播方式和环境稳定程度。
有性繁殖的意义
有性生殖以减数分裂和配子融合为核心,常由两个个体提供配子,但也存在雌雄同体、自体受精等形式。它会重组遗传变异,同时也有产生配子、寻找配偶等成本;在何种环境下带来净优势,要结合物种生态和时间尺度判断。
有性生殖通过染色体独立分配、交换和随机受精形成新的等位基因组合。遗传多样性使种群中的个体对同一环境压力产生不同响应,为自然选择提供材料,但多样性本身不保证种群一定适应或存续。
丰富的遗传变异还为进化提供了“原料”,促使物种能够持续优化自身特征。例如,人类对粮食作物、家畜的选育,都是基于这一原理来增强优良性状。
有性繁殖通过减数分裂和受精过程,打破和重组父母的遗传信息,不断创造遗传上独特和多样的新个体。这些个体面对环境时,会表现出不同的适应能力,为物种生存和进化提供了持续的动力与保障。
人类染色体的组织结构
体细胞中的染色体配对
多数人类有核体细胞含有46条染色体,组成23对同源染色体,其中每对通常分别来自父母。成熟红细胞没有细胞核,某些组织还可出现多倍体细胞,因此46条是典型核型而不是所有体细胞都无例外遵循的数量。
人类染色体根据结构和功能主要分为两类:
- 第一类是22对常染色体,携带参与多种结构和生理过程的基因;
- 第二类是1对性染色体。多数人的核型为XX或XY,Y染色体上的SRY等因素通常参与睾丸发育,但人的性发育还涉及其他基因、激素及其受体。
同源染色体在相应位置通常具有相同的基因,但等位基因可能不同。某些性状可由少数位点较好地解释,人的眼睛颜色等表现则通常涉及多个基因,不能只用“棕色对蓝色”的单基因模型概括。
在细胞分裂期间,同源染色体的排列与分离,决定了每个新细胞所获得的遗传信息组合。而染色体错误的组合或分离异常,也往往是很多遗传疾病发生的根源,比如唐氏综合征就是由21号染色体多了一条所致。
染色体的结构与核型分析
每条染色体由一条长DNA分子与相关蛋白质组成。着丝粒把染色体划分为短臂(p臂)和长臂(q臂),不同染色体在长度、着丝粒位置和带型上有所区别。核型分析适合识别较大的数目或结构异常,但无法发现所有微小变异。
核型分析可以用于诊断21三体、18三体等染色体异常。产前筛查用于评估风险,诊断则需要根据具体情况采用绒毛取样、羊水检查及相应遗传检测;二者的目的和证据强度不能混为一谈。
生殖细胞的形成过程
前面提到,人类细胞有46条染色体,但只有体细胞是如此。如果生殖细胞(即精子或卵子)也有46条染色体,那么结合后新个体就会有92条染色体,这显然无法维持遗传信息的稳定和物种的正常发育。
减数分裂通过一次DNA复制和两次连续分裂,使细胞由二倍体转为单倍体。人的精子发生通常由一个初级精母细胞形成四个单倍体细胞;卵子发生则因胞质分配不均,通常形成一个较大的卵细胞和较小的极体。受精时两个单倍体配子结合,恢复二倍体染色体数。
减数分裂不仅仅是数量的减少,过程中的“交叉互换”等机制,还极大促进了后代表型与遗传的多样性。这有力推动了人类种群的多样性与适应性。
性染色体的特殊情况
在典型XY核型个体的精子发生中,X与Y染色体分离,形成携带X或Y的精子;典型XX核型个体产生的卵细胞携带X。哪类精子参与受精通常决定合子的性染色体组合,但后续性发育还需要多个基因和激素通路共同参与。
减数分裂的细胞机制
减数分裂第一次分裂(分离同源染色体)
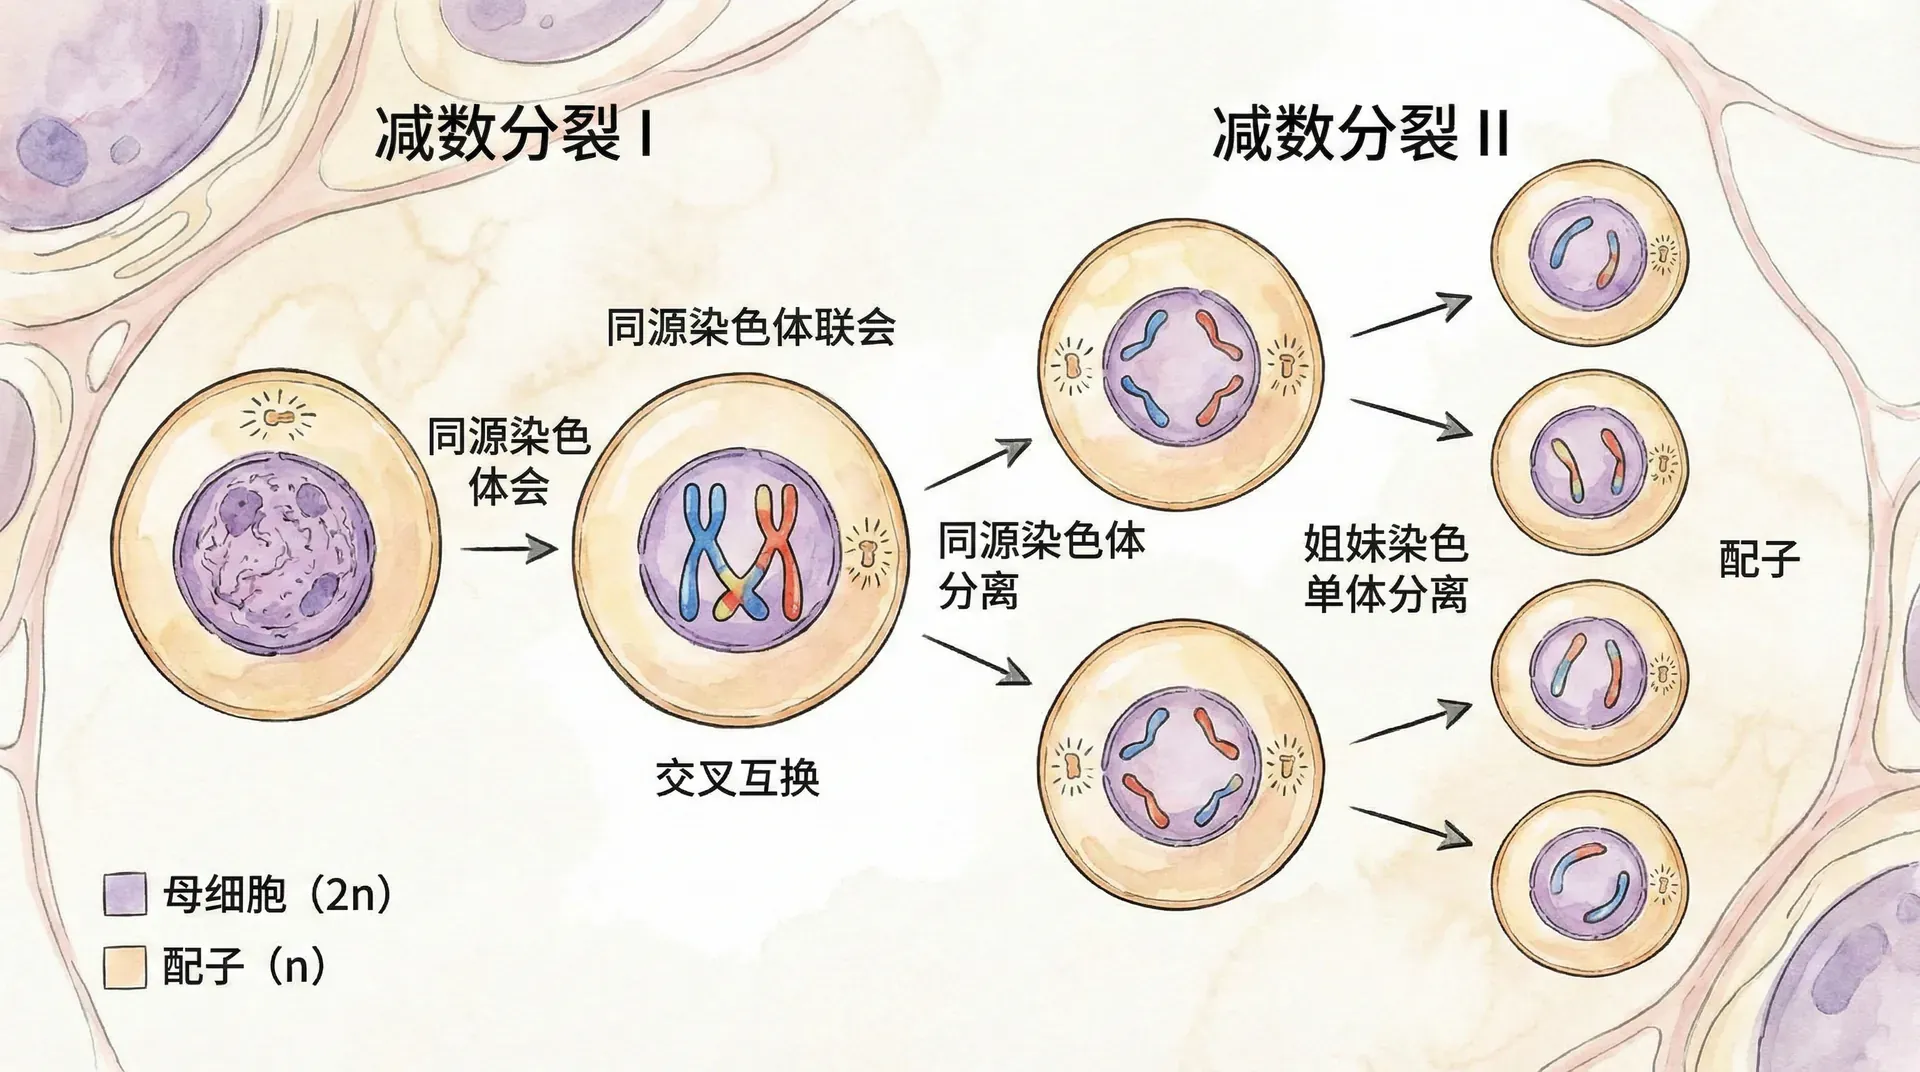
减数分裂分为两大阶段。第一次减数分裂的核心在于“同源染色体分配”——每对同源染色体在细胞的赤道板成对排列,然后被随机分配到不同的子细胞中。这一过程不仅减半了染色体数量,还为基因重组和遗传多样性奠定了基础。
在第一次分裂的前期(前期I),非常关键的“同源染色体配对”和“交叉互换”同步发生。简单来说,这一交换让父母染色体之间的基因片段进行“重新组合”,想象成两份家族食谱互换了一部分内容,使得下一代不再只是简单的“父母复制品”,而有了全新的基因排列。
交叉互换会重新排列同一条染色体上的等位基因组合,增加配子的遗传差异。它提供的是变异材料,具体组合是否有利取决于环境和与其他基因的相互作用。
第一次分裂完成后,细胞染色体数目由2n降低为n,每条染色体依然以姐妹染色单体的双线状态存在,随后的第二次分裂还会继续精细化基因分配。
减数分裂第二次分裂(分离姐妹染色单体)
第二次减数分裂在染色体行为上与有丝分裂相似,主要分离姐妹染色单体。数学上一个起始细胞可形成四个单倍体细胞,但在动物卵子发生中,四个产物大小和命运不同,通常只有一个成为成熟卵细胞。
这一完整过程可用数学式表达如下:
减数分裂的主要意义有二:
- 通过两次连续分裂将染色体减半,确保物种染色体数恒定;
- 通过同源染色体的独立分配和交换产生不同的等位基因组合,为种群演化提供遗传变异。
与有丝分裂的区别对比和进化意义
减数分裂与有丝分裂虽然在机制上相关,却服务于生物体不同的“人生阶段”:
- 有丝分裂(Mitosis):把复制后的姐妹染色单体分给两个细胞;若不考虑新突变和分配异常,子细胞的核基因组通常彼此近似。
- 减数分裂(Meiosis):发生在形成配子或孢子的细胞谱系中,通过两次分裂降低倍性并重组遗传信息。
两个过程各有分工,又协同保障了遗传的“稳定”与“变化”,是生命延续和进化的重要动力。
性生命周期的多样性

动物的生命周期模式
多数动物的多细胞阶段为二倍体,减数分裂形成单倍体配子,单倍体阶段通常只限于配子。受精后形成二倍体合子,再经有丝分裂发育为个体。某些组织会出现多倍体或非整倍体细胞,因此“所有体细胞都为二倍体”并非没有例外。
这一生命周期模式让动物可以“稳定繁衍”,维持复杂的器官系统和行为特性。例如,人的体细胞始终维持46条染色体,只有精子和卵子各为23条。
植物的世代交替与生命周期复杂性
比较之下,植物的生命周期就复杂得多了。植物拥有“世代交替”特点,即在其生命周期中,既存在二倍体的“孢子体”阶段,也有单倍体的“配子体”阶段。这两个阶段依次交替进行,实现了遗传物质的循环传递。
水稻或玉米植株是二倍体孢子体。孢子体经减数分裂产生单倍体孢子,孢子再通过有丝分裂形成雄、雌配子体,如花粉粒和胚囊;配子融合后形成合子并发育为新的孢子体。不同类群的配子体大小和独立生活能力差异很大,不能简单把生命周期更复杂等同于适应性更强。
特殊生命周期模式
除动植物外,真菌、藻类等生物还存在更多样化的生命周期模式。例如有些藻类主要以单倍体阶段为主,只有在受精时短暂出现二倍体阶段。这些不同的生命周期模式,展示了生物界适应环境和进化的多样性。
人类染色体的精妙组合、减数分裂机制的严密运作,以及动植物各自独特的生命周期模式,共同保证了遗传信息既“守恒”又“变异”,是生命进化与生物多样性的根本动力。
遗传变异的产生机制
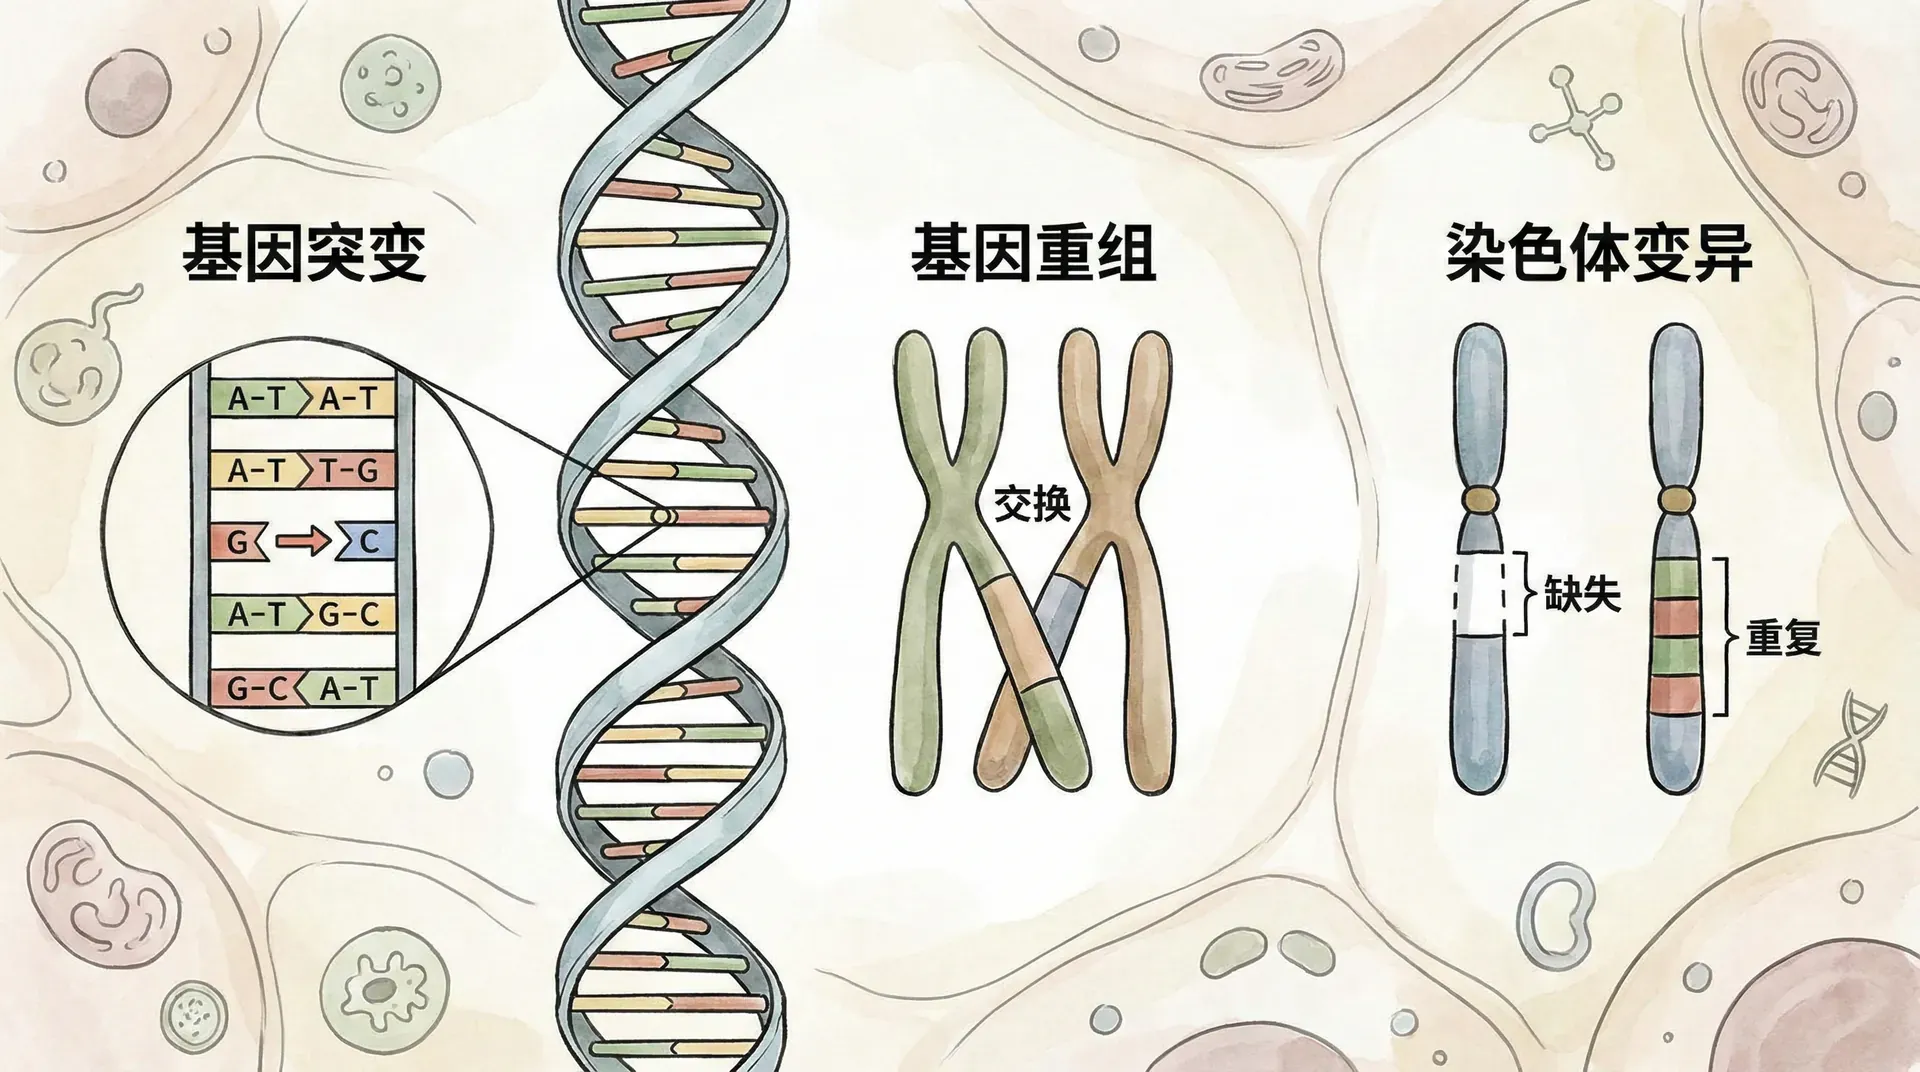
遗传变异来自突变、重组和染色体变化等过程。减数分裂不会凭空产生新的等位基因,但独立分配和交叉互换能重排已有变异;随机受精又把来自两个配子的组合汇集到同一合子中。
染色体的独立分离
在有性生殖中,减数分裂的第一次分裂阶段是遗传变异产生的关键时期。在这个阶段,每一对同源染色体如何分配到子细胞里,完全取决于随机事件。可以想象为“抛硬币”:来自父亲或母亲的染色体进入哪一个新生细胞,并没有先验的规律。这一机制称为同源染色体的独立分离(或自由组合)。
我们有23对同源染色体,在减数分裂时,这23对染色体的分离方式就像同时抛23枚硬币,每一对 都有如下特点:
- 每对染色体的分离都是独立的,每一对都有“父源”或“母源”两种可能性。
- 23对染色体同时分离时,理论上组合方式为 种,也就是约840万种不同的配子类型。
- 这个数字还只是考虑整条染色体整体的自由组合,并不包括染色体内部的基因重组(如交叉互换)。
- 如此巨量的组合,确保了人群之间的遗传多样性。
这个估算说明仅考虑独立分配就能产生大量组合;交叉互换和新生突变还会进一步增加差异。单卵双生个体起始基因组高度相似,发育过程中仍可能积累体细胞变异和表观遗传差异。
交叉互换现象
减数分裂不仅通过独立分离带来变异,更重要的还有“交叉互换”现象。所谓交叉互换,是指在减数分裂前期,同源染色体的非姐妹染色单体之间会发生DNA片段的互换。这种基因重组过程,实现了母源和父源染色体间的遗传物质“拼接”,产生全新的基因组合。
ABO血型主要由ABO基因的等位基因组合决定。一个基因型为AB的人会在配子中分别传递A或B等位基因,子女血型还取决于另一位亲本提供的等位基因。这里的差异主要由等位基因分离和随机受精解释,不需要用同一基因座内部的交叉互换来说明。
人的每条染色体通常至少形成一个保证正常分离所需的交换,但交换数目会随染色体长度、性别和个体而变化。重组率应通过遗传图谱或细胞学观察估计,不能把固定次数套用于每条染色体。
不同物种、染色体区域和性别的重组率都可能不同,着丝粒附近常较低,部分区域则较高。育种可以利用重组把有利等位基因组合在一起,但连锁、重组冷点和不利基因拖带也会限制选择效率。
随机受精过程
除染色体层面的变异外,受精时精子与卵子的结合同样存在巨大随机性。每一个精子和卵子都包含着不同组合的遗传物质。当这2个分别有840万种可能组合的配子结合时,理论上可以产生大约70万亿种基因型的新个体,这还没有考虑交叉互换和小范围基因突变。
这个天文数字意味着,即使是同一个父母,多次受精产生的子女,遗传背景也是极其独特的。也难怪地球上几乎没有两个完全相同的自然人。
随机受精会改变等位基因在合子中的组合,却不会自动“稀释”有害等位基因或提高种群健康。隐性遗传病风险取决于亲本基因型、等位基因频率和亲缘关系,可以用孟德尔概率和群体遗传学模型分析。
遗传变异的进化价值
适应环境变化的意义
种群中的遗传变异使个体在体型、颜色、抗性和生理功能等方面出现差异。当环境改变时,某些已有变异可能影响生存和繁殖成功,从而改变等位基因频率。变异没有预先设定的用途,同一变异在一种环境中有利,在另一种环境中可能中性或有害。
遗传多样性较高的种群可能包含更多不同响应类型,但能否应对高温、干旱或病原压力,还取决于种群大小、变异是否与相关性状有关、环境变化速度以及迁移条件。作物育种需要保存和评价种质资源,再通过受控试验确定哪些等位基因组合在特定环境中有效。
不仅如此,遗传多样性也有助于生态系统的稳定。当某些性状被环境压力淘汰时,其他性状的个体能顶上,保证物种延续。如同“基因库”的保险机制,变异是整个种群的“免疫系统”。
物种生存的策略
动物、植物和微生物采用多种繁殖方式,有些物种还会在有性与无性生殖之间切换。有性生殖能够重组遗传变异,却伴随配子和配偶等成本;无性生殖能够较快保留已有组合,却也可能让连锁的有害变异难以分离。两种方式的结果都取决于生态条件和演化历史。
图中的关系用于比较可能的成本与收益,不代表所有物种都会沿同一曲线变化。环境变化并不保证有性种群一定占优,无性谱系也可能通过突变、水平基因转移或庞大的种群数量获得变异;判断具体案例需要观测繁殖成功率和等位基因变化。
减数分裂通过同源染色体分离和交换重排遗传信息,受精再组合两个配子的基因组。它们能够增加后代组合差异,但不会针对未来环境主动制造有利性状。
对减数分裂的研究可用于分析不分离、非整倍体和生育问题,也能帮助育种者理解连锁与重组怎样影响性状组合。遗传风险分析提供的是概率信息,实际应用还要结合检测范围、家系背景和伦理规范。
辅助生殖、遗传诊断、作物育种等实际应用都需要深入理解以下遗传学过程:
- 配子形成:涉及染色体减数分裂,使细胞倍性减半,为遗传信息的重组提供基础。
- 染色体分配与重组:减数分裂期间,同源染色体分离与基因重组产生新的等位基因组合,增加了遗传多样性。
- 受精过程:两个配子结合,恢复细胞倍性,并将双亲的基因组重新整合在一起。
把这些流程放在同一条因果链上,可以清晰区分每一步的作用:
- 减数分裂降低倍性;
- 重组创造新的遗传组合;
- 受精则恢复倍性并整合双亲基因组,为后代奠定遗传基础。
理解这些机制时,应把“产生变异”与“筛选变异”分开:减数分裂和受精改变组合,自然选择、遗传漂变与基因流动则在种群尺度上改变变异的频率。这样的区分能避免把随机过程误解成面向目标的设计。