生物多样性与群落稳定性
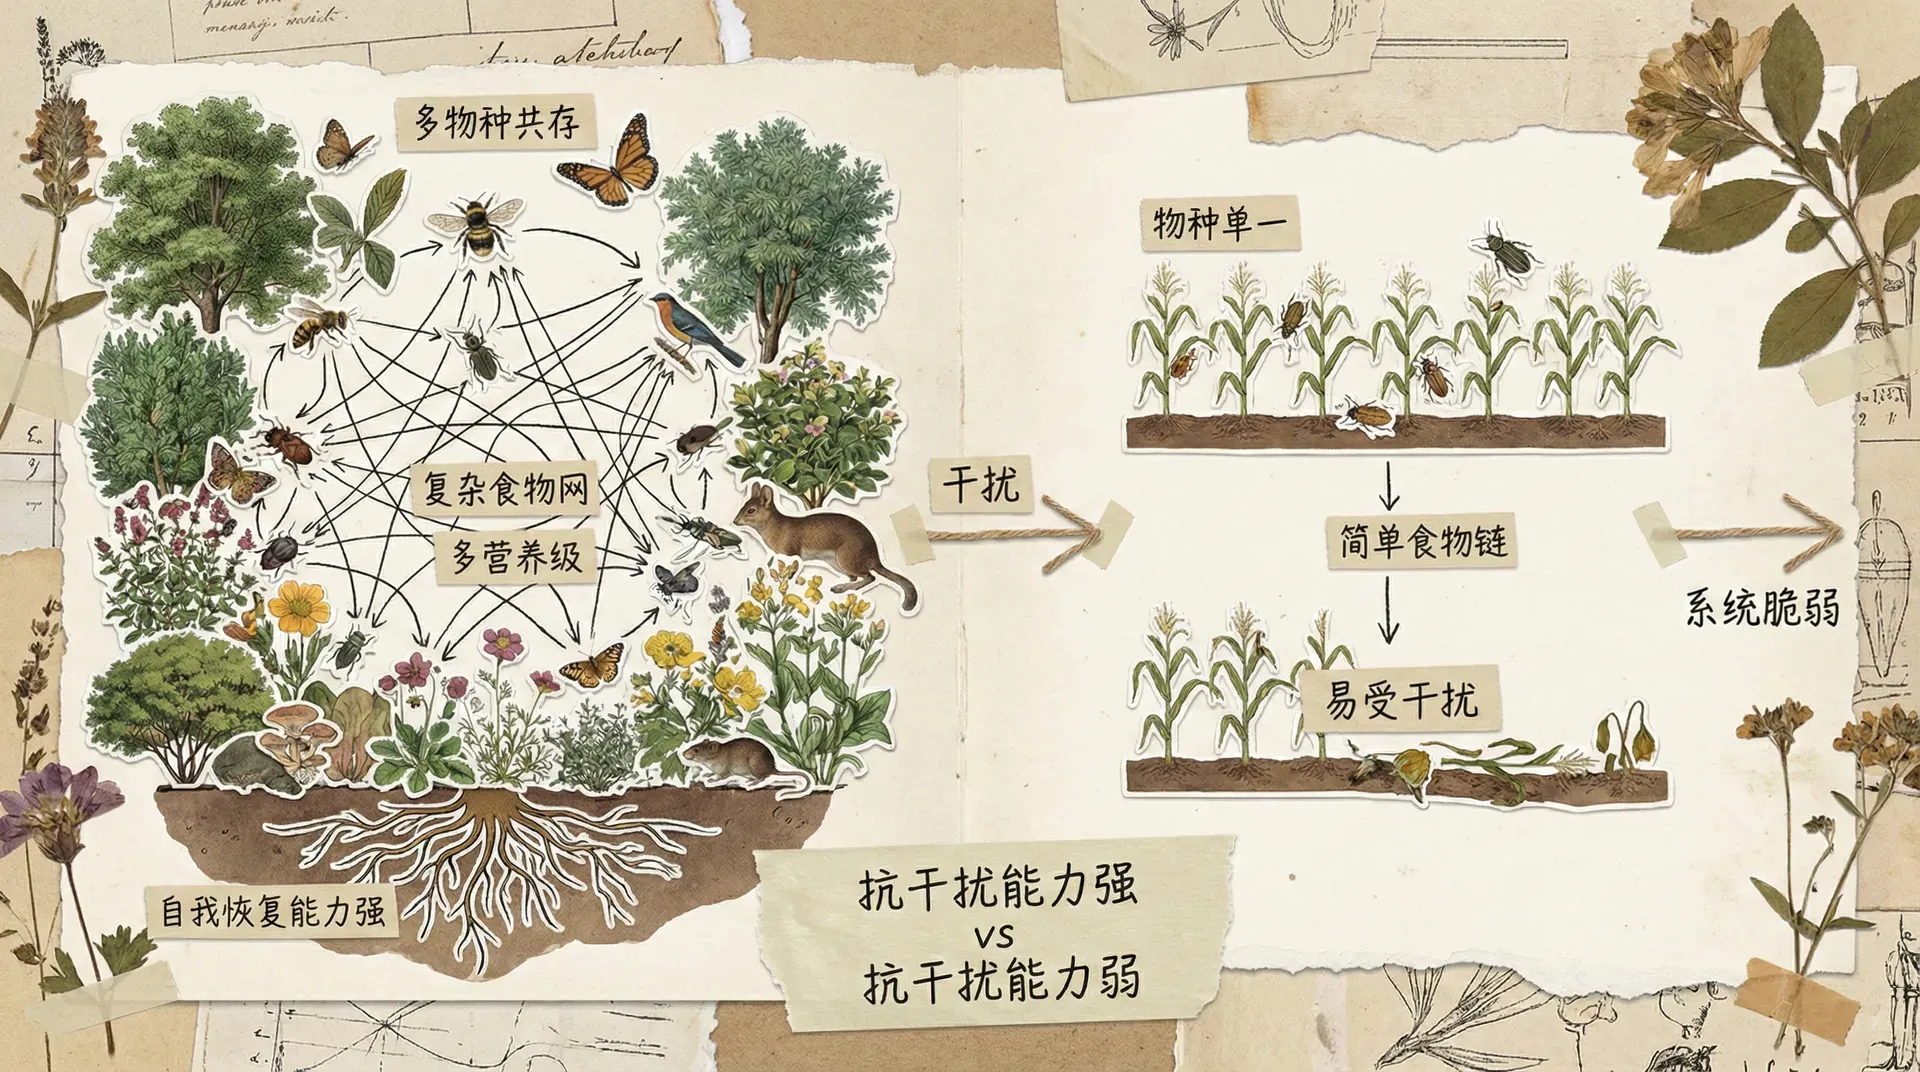
生态系统能够容纳多少种生物?物种丰富度为什么随区域和尺度变化?热带雨林通常记录到较高的物种丰富度,北极苔原则相对较低,但具体数目取决于研究类群、面积和调查强度。气候、资源、面积、演化历史与扩散共同塑造这些格局,不能用一个固定“上限”概括。
科学家们一直在尝试解释这些差异,探索生物多样性背后的规律。今天,我们就将一探究竟:是什么限制了生态系统能容纳的物种数量?是什么机制让一个系统保持稳定,又是什么让某些系统更加脆弱?通过深入了解,我们也可以思考人类活动又如何影响着这些生态系统的平衡。
生态系统的饱和现象
个体数量的饱和
有限空间中的种群会受到资源、废物积累、疾病和种间作用限制,但生态系统很少以“全部能量正好被消耗”来定义个体饱和。更可操作的做法是分别估计种群增长率、资源供给和环境容纳量,并说明所研究的时间尺度。
以长江中下游的湖泊生态系统为例,湖水中的藻类每天产生一定量的有机物,浮游动物、小鱼、大鱼依次捕食,最终能量在整个食物网中流转完毕。即使总生物量在一段时间内相对稳定,物种组成和能量通量仍会变化,也不能由一次测量认定达到固定最大值。
生态位描述物种能够维持种群的环境条件、利用的资源以及与其他生物的关系,常用温度、食物、空间和活动时间等多个维度表示。它不是一个固定职位,也很难囊括“所有生态特征”;研究者会根据问题选择可测量的生态位轴。
但实际情况往往更复杂。捕食者通过捕食会降低猎物的数量,使猎物种群无法达到理论上的最大密度。在青藏高原的草地上,狼群的存在限制了藏羚羊的数量,使得草地从未真正被完全啃食。不同营养级都可能受到自下而上的资源限制和自上而下的捕食调节;没有哪个营养级天然更接近“完全饱和”。
物种数量的饱和
更有趣的问题是:一个生态系统能容纳多少个不同的物种?这个问题的答案关系到生态系统是否存在“物种饱和”现象。“物种饱和”是一项关于区域物种库与局地丰富度关系的假说。新物种定居可能增加局地丰富度、替代原有物种,或只在短期出现;判断饱和需要跨地点、跨时间并考虑取样强度,而不是把每次入侵都写成一进一出。反之,如果新物种能够成功定居而不引起其他物种消失,说明原来的系统还没有达到饱和。
一项经典的对比研究提供了物种饱和的有力证据。观察发现,在中国、北美和澳大利亚,植被结构相似的栖息地中,鸟类物种数量惊人地相近。下图展示了这种关系:
植被垂直结构多样性指数与鸟类物种数关系数据如下:

植被的垂直结构由简单到复杂(指数由0.2~1.0递增)时,各地区森林支持的鸟类物种数均大幅上升。南方森林的物种数略高于东北和华北地区。
结构简单时(如仅有草本层),各地鸟类物种数较低;结构复杂到多层复层林后,鸟类物种数达到最高。
植被垂直结构越复杂(从地面草本层到低矮灌木层再到高大乔木层),鸟类物种数就越多。关键在于,植被分了多少层比具体是什么植物更重要。一个拥有草地、灌丛和高大树木的森林,能支持的鸟类物种数量,远超单一结构的草原。
相似的丰富度—植被结构关系说明生境复杂度可能限制鸟类数目,但不能单独证明群落已经饱和。还需检验区域物种库扩大时,局地丰富度是否停止增加。但对于植物、昆虫和蜥蜴等其他生物类群,类似的规律并不总是成立,这说明不同类群的饱和程度可能存在差异。
物种多样性的奥秘
多样性的度量
走进云南西双版纳的热带雨林,你随手指向一棵树,很难猜出它是什么种类,因为这里有数百种树木混杂生长。但在华北平原的玉米地里,你闭着眼睛都知道脚下是什么植物。这就是物种多样性的直观差异。
物种多样性不仅包括物种数量(物种丰富度),还包括各物种的相对重要性。两个生态系统可能都有50个物种,但一个是少数几种占据主导地位,其余都很稀少;另一个则是各物种数量相对均衡。后者的多样性更高。
下图展示了三种不同的物种重要性分布模式:
长白山混交林中多种树木共同出现,但不同样地的优势度和更新状况可能差异很大。均匀度需要由各物种相对丰度计算,不能从“混交林”名称推断竞争温和或数量接近。
而与此形成鲜明对比的是,位于干旱极端环境的塔克拉玛干沙漠边缘,这里土壤贫瘠、水分稀少,红柳、梭梭等耐旱植物能在部分荒漠生境形成优势,但群落组成还随地下水、盐分、沙丘位置和干扰改变。优势种比例高会降低均匀度,并不表示它“占据了绝大部分生态位”。两地植被分布的巨大反差,正好反映了不同生态系统中生物多样性的显著差异。
多样性的三个维度
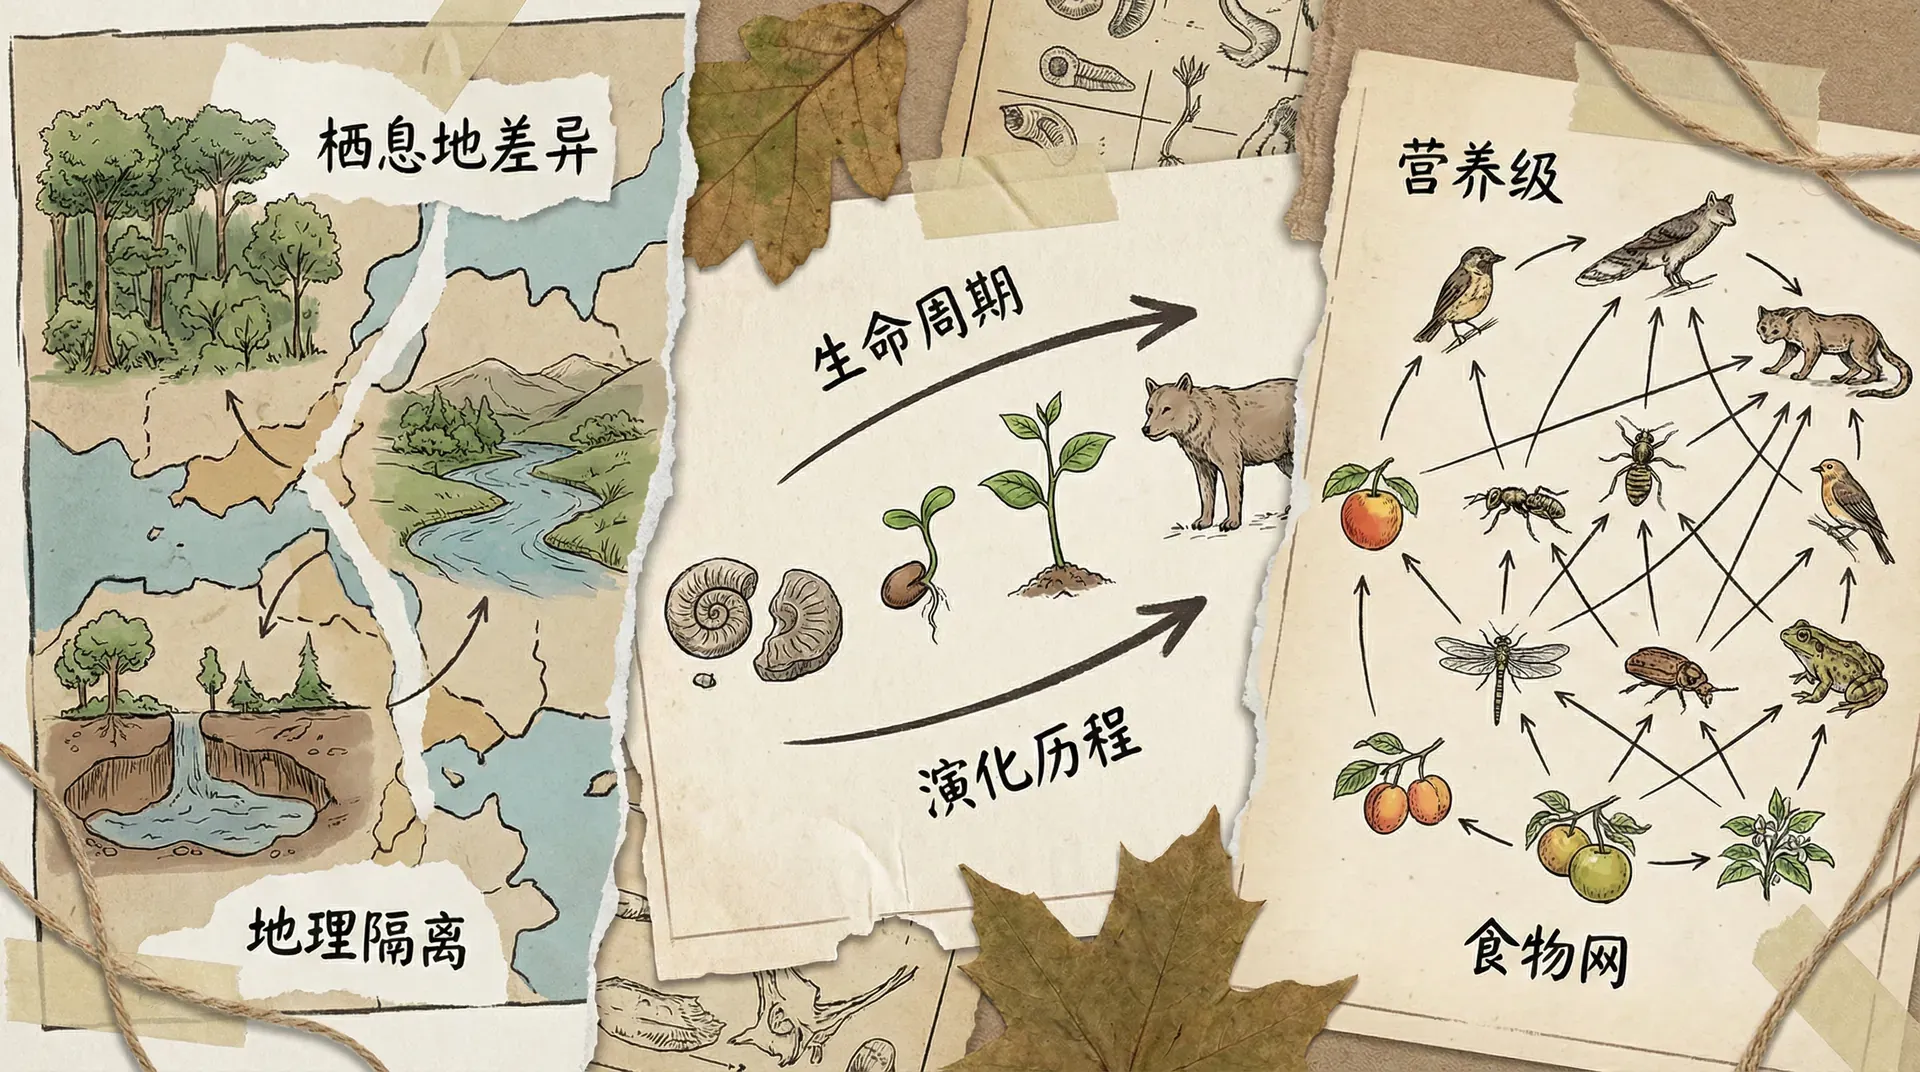
生态系统的物种多样性可以从三个基本维度来理解:空间、时间和食物。
空间维度
不同物种在水平和垂直方向上分工明确。在一片森林中,有些鸟类专门在树冠层觅食,有些在树干上攀爬寻找昆虫,还有些在林下灌丛中穿梭。同样,在长江口的滩涂上,不同种类的鹬在不同深度的泥层中寻找食物,各自占据特定的觅食位置。
以西双版纳热带雨林为例,植被从地面到树冠可以分为地被层(0-0.6米)、灌木层(0.6-8米)和乔木层(8米以上)。这种垂直分层为不同生态习性的动物提供了多样的栖息环境。在林冠层活动的白颊长臂猿几乎不会与地面的野猪发生资源竞争。
时间维度
物种还可以通过时间上的分离来共存。在神农架的森林里,猫头鹰在夜间捕鼠,而日行性的猛禽在白天活动,两者虽然捕食相似的猎物,但通过时间错开避免了直接竞争。
季节性的分离同样重要。青藏高原的高山草甸在不同季节开放不同的花朵:早春的雪莲,仲夏的龙胆,晚秋的绿绒蒿。相应地,传粉昆虫的种类也随季节更替,形成了时间上的物种替换。
营养维度
食物选择的差异是物种共存的重要机制。即使生活在同一片水域,不同鱼类也有各自的食谱。长江中的草鱼吃水草,鲢鱼滤食浮游植物,鳙鱼吞食浮游动物,青鱼则专吃螺蛳。这种食性分化让多个物种能够共享同一片水域。
体型差异通常对应着食物大小的差异。在同一片湿地,小型鹭鸟捕捉小鱼小虾,中型的苍鹭捕食较大的鱼类,而大型的白鹤则能处理更大的猎物。这种分级利用资源的方式,极大地提升了群落的承载能力。
空间、时间和营养是物种进行生态位分化的三类常见轴,能够帮助解释共存,但它们不是生物多样性的全部度量。保护评估还会区分物种丰富度与均匀度、功能多样性、系统发育多样性,以及局地、地点间和区域尺度的多样性。
从赤道到两极的多样性变化
纬度梯度现象
地球上的生物多样性分布,有一个广为人知且令人惊叹的规律:从赤道往两极移动,物种的丰富度通常会逐渐递减。比如在中国南部的海南岛热带雨林中,同一公顷土地上就可能生长着上百种不同的树木,荫蔽蓊郁、生命竞相展示。而到了遥远的黑龙江北部针叶林地带,树种却屈指可数,大片林区中常见的只有几类松树和冷杉,很难找到几十种甚至上百种树木共存的景象。
纬度多样性梯度在许多类群中明显,但海洋和陆地、不同谱系及不同空间尺度可表现出例外,具体体现在:
- 鸟类
- 昆虫
- 两栖动物
- 其他动物类群
研究表明:
- 热带地区拥有更多的物种数量;
- 个体之间的生态分工更为细致;
- 极地和高纬寒带区域生物多样性大幅减少,生态系统结构更为简单。
这一现象在全球广泛存在,被称为“生物多样性的纬度梯度”。让我们看看中国境内爬行动物多样性随纬度的变化:

位于北纬20度左右的海南岛,蜥蜴种类最为丰富;随着纬度升高,到了东北地区,蜥蜴几乎绝迹。这种普遍存在的纬度梯度背后,究竟是什么在起作用?
影响多样性的机制
生态学家提出多种机制解释物种多样性为何随地区变化。有些机制强调温度、降水和资源等环境条件对物种生理耐受与生产力的限制;另一些则关注面积、扩散、物种互作和演化历史。任何单一机制都需要与标准化分布数据和替代解释比较。
而另一些机制则更关注生物之间的相互影响,例如捕食、竞争、共生等关系如何推动不同物种共同存在和演化。总体来看,环境因素与生物互动往往共同作用,影响着生态系统中能够维持多少种类的生物。

下方用几个例子来理解这些机制:
气候稳定性与可预测性
云南南部相对较弱的季节温度波动可作为气候稳定性假说的研究背景,但专化程度还受降水季节性、资源持续时间和谱系历史影响——有的植物只在特定月份开花,有的昆虫只取食某一种植物。内蒙古草原季节温差较大,但这并不要求所有物种都成为通才,也不能单独解释物种数。对比研究需要使用同一类群和标准化采样,并同时考虑面积、生产力与演化历史。
生产力假说
这个机制特别有趣。当食物充足时,动物可以挑食。例如,一片沙漠绿洲植物稀疏,蜥蜴见到昆虫就必须捕食;另一片植物茂盛,昆虫丰富,蜥蜴可以专门挑选最容易消化、营养最好的种类。结果是,后者能养活更多种对食物有不同偏好的蜥蜴。
图中展示了不同生态系统的资源可用量,高生产力环境的资源是低生产力环境的两倍。彩色矩形代表各个物种的生态位宽度。可以看到,生产力可能通过增加个体数、资源类型或种群持续性提高丰富度,也可能在高生产力下增强遮阴和竞争。图中的生态位打包是候选机制之一,不能由资源总量直接推出每个物种都会更专化。
适度干扰假说
这个假说特别能解释一些令人费解的现象。中度干扰假说预测某些系统在中等干扰下丰富度较高,但实证关系可能是单调、驼峰或没有一致模式,结果依赖干扰类型、生产力和观察尺度。
洪泛平原的淹水会改变沉积、连通性、繁殖体传播和种间竞争,适合用来检验干扰频率、强度与多样性的关系。某些淹水过程可能限制优势种并为耐淹物种创造更新机会,另一些则可能直接降低物种数;无洪水或高频洪水会产生什么结果,需要结合水文历史、区域物种库和生产力测量,不能预先写成固定的两端结局。
生态系统的稳定性
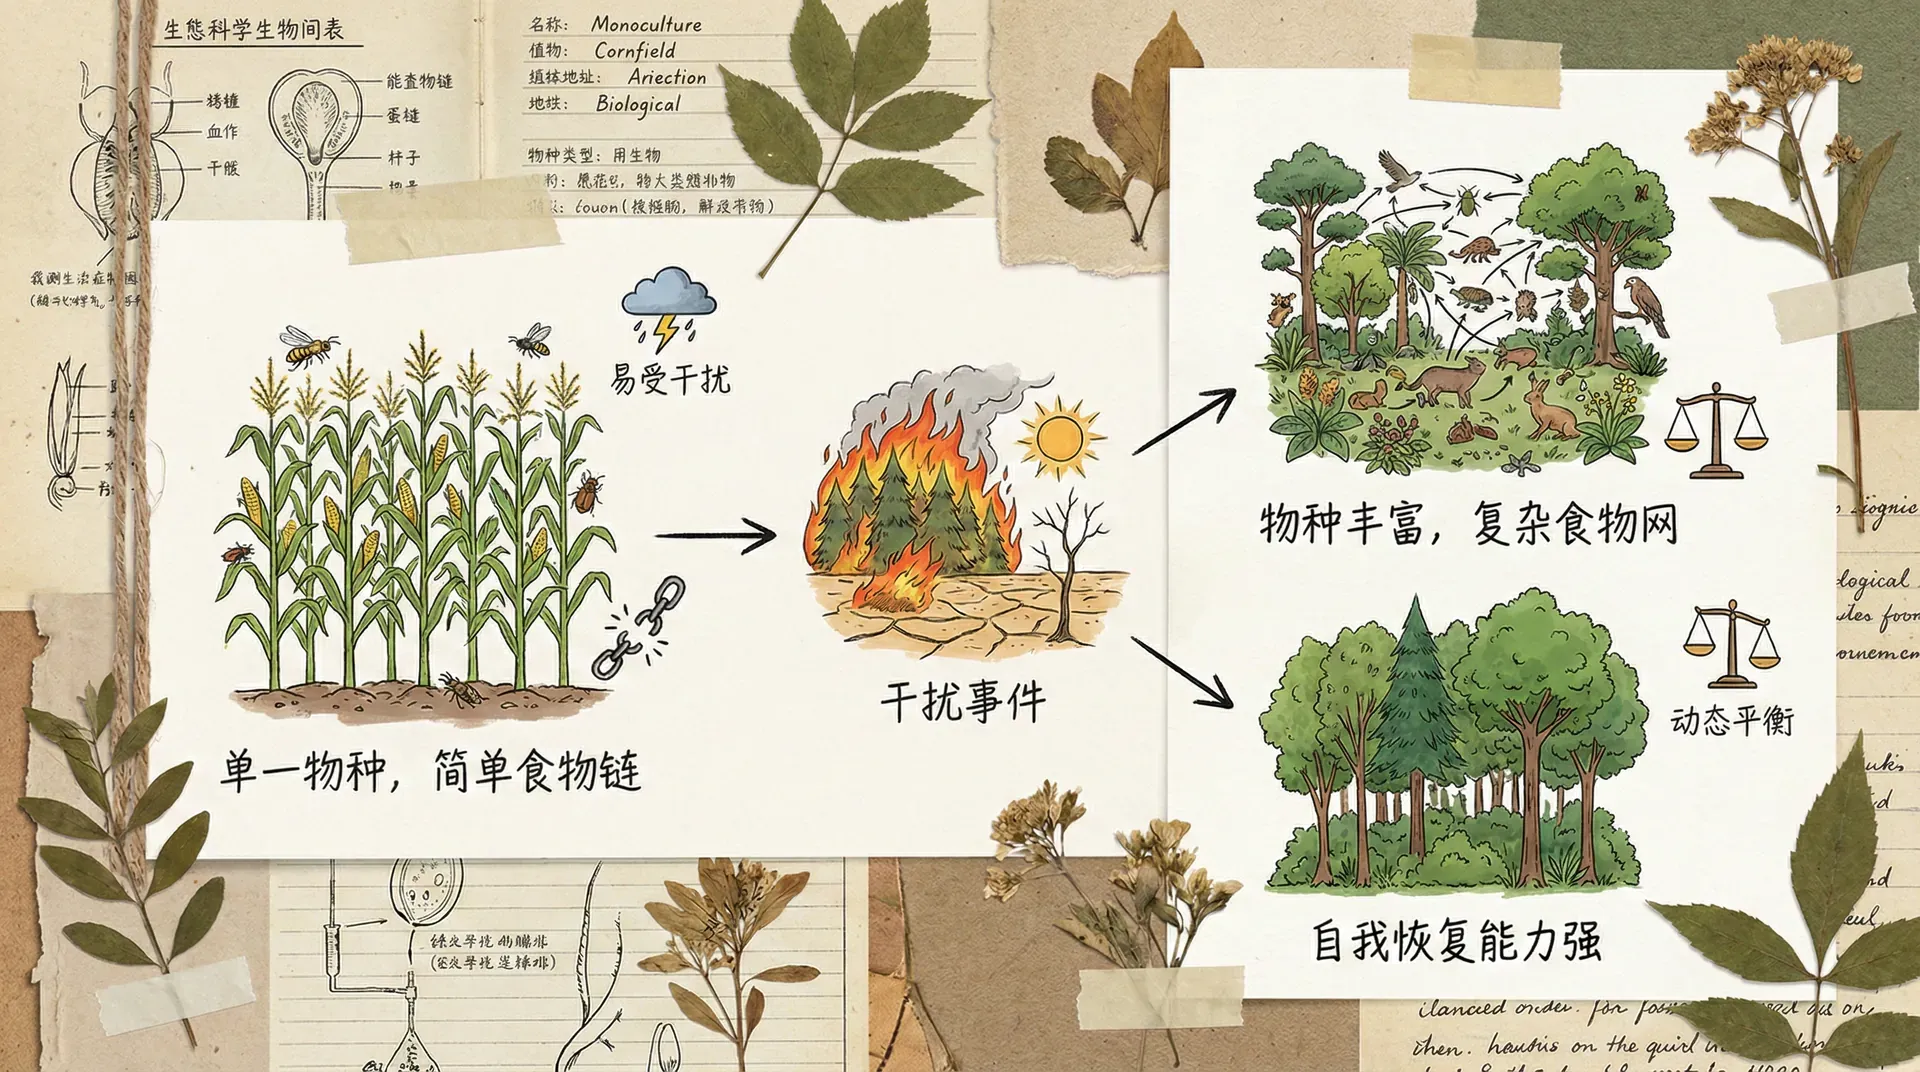
稳定性的多副面孔
当我们说一个生态系统“稳定”时,实际上可能指完全不同的意思。稳定性至少包含四种不同的含义,而一个系统可能在某种意义上很稳定,在另一种意义上却很脆弱。
-
时间不变性
某项指标相对于其平均值的时间波动较小;群落总量稳定时,单个物种仍可能明显波动。例如:青藏高原高寒草甸多年间物种组成与生物量非常稳定,节律高度一致。相比之下,黄土高原草地受降水影响,植被覆盖度严重波动。 -
抵抗力
指生态系统面对外部压力或干扰时抵御变化、维持原状的能力。例如:长江下游湿地即使遭遇台风暴雨,结构仍能基本保持;而黄河上游草原,仅中度过度放牧就可引起退化。 -
恢复力
当系统受干扰偏离原态后,能多快恢复到原有平衡状态,例如东北针阔混交林火灾后白桦快速演替,仅需几十年可恢复森林;但珊瑚礁生态系统一旦遭遇灭绝性干扰,常年难以恢复原状。 -
持久性与阈值
系统能否在扰动下维持关键物种或功能,以及跨越阈值后是否转入另一种状态。状态转变可能难以逆转,但“不可逆”需要长期证据。例如三江源草地在适度压力下可稳定存在,但一旦强烈放牧超过极限后会急剧退化为沙地,哪怕之后停止放牧也难以恢复。
多样性与稳定性的关系
一个古老的生态学观点认为:物种越多,生态系统越稳定。逻辑似乎很简单——物种多意味着食物网复杂,能量流动途径多样,某个物种波动的影响可以被其他途径缓冲。
但理论分析给出了出人意料的结果。数学模型显示,随意组装的复杂系统(物种多、相互作用强)反而更容易失稳。这是因为复杂的相互作用网络中,一个物种的扰动会通过多条路径传递和放大,最终导致整个系统振荡或崩溃。
这个悖论困扰了生态学家数十年:现实中的复杂生态系统明明长期存在,为什么理论却说它们应该不稳定?答案可能在于,自然系统的构建遵循特定规则,而不是随机组装的。
实地观察的结果并不一致。长期草地实验发现,较高植物丰富度常提高群落生产力的时间稳定性,这可来自物种响应不同步和平均生产量提高;但丰富度对抗扰性、恢复力和单个种群稳定性的影响可能不同。2000年以来,黄土高原大规模退耕还林还草,植被多样性增加,水土流失减轻,生态系统稳定性明显提升。
同一系统也可能出现稳定性指标之间的权衡:多样性提高群落总量的时间稳定性,却不一定提高每个种群的稳定性;对某次增温或干旱的抵抗与事后恢复也可能方向不同。这可能是因为专食性昆虫与寄主植物之间形成了更精细的调控机制。
目前的共识是:多样性与稳定性的关系取决于具体情境。不同类型的稳定性对多样性的依赖程度不同,不同的生态系统和生物类群也表现出不同的模式。但总体而言,维持较高的生物多样性,是生态系统健康和可持续性的重要保障。
群落动态的数学描述
生态学家用数学方程来描述物种之间的相互作用。最基础的模型可以写成:
这个方程表示第 个物种的数量 随时间的变化率。其中 表示低密度下的内禀增长项, 表示物种 的密度对物种 人均增长率的线性影响。自我调节通常要求 ,种间系数的正负再对应促进或抑制。负值可表示竞争或消费者对资源种的抑制,正值可表示促进;仅凭符号不能区分全部生物学机制。
这个看似简单的方程,实际上包含了丰富的生态学含义。当系统包含多个物种时,它们的命运相互交织。一个物种数量的增加,可能通过竞争压制另一个物种,但又可能为第三个捕食者提供更多食物,而这个捕食者的增多又反过来控制第一个物种……
系统的稳定性取决于这些相互作用的强度和结构。如果物种自我调节能力强(数量增加时受到负反馈强烈),相互作用又比较温和,系统就容易保持稳定。但如果相互作用很强,物种数量又很多,系统就可能出现复杂的振荡甚至混沌行为。
持续存在的群落通常具有非随机的相互作用结构,但结构来自环境筛选、物种迁入和灭绝、共同演化及历史偶然性的共同作用。模型稳定也只是众多可检验性质之一。不是所有的物种组合都能共存,只有那些相互作用符合特定约束的组合,才能形成持久的群落。
保护启示
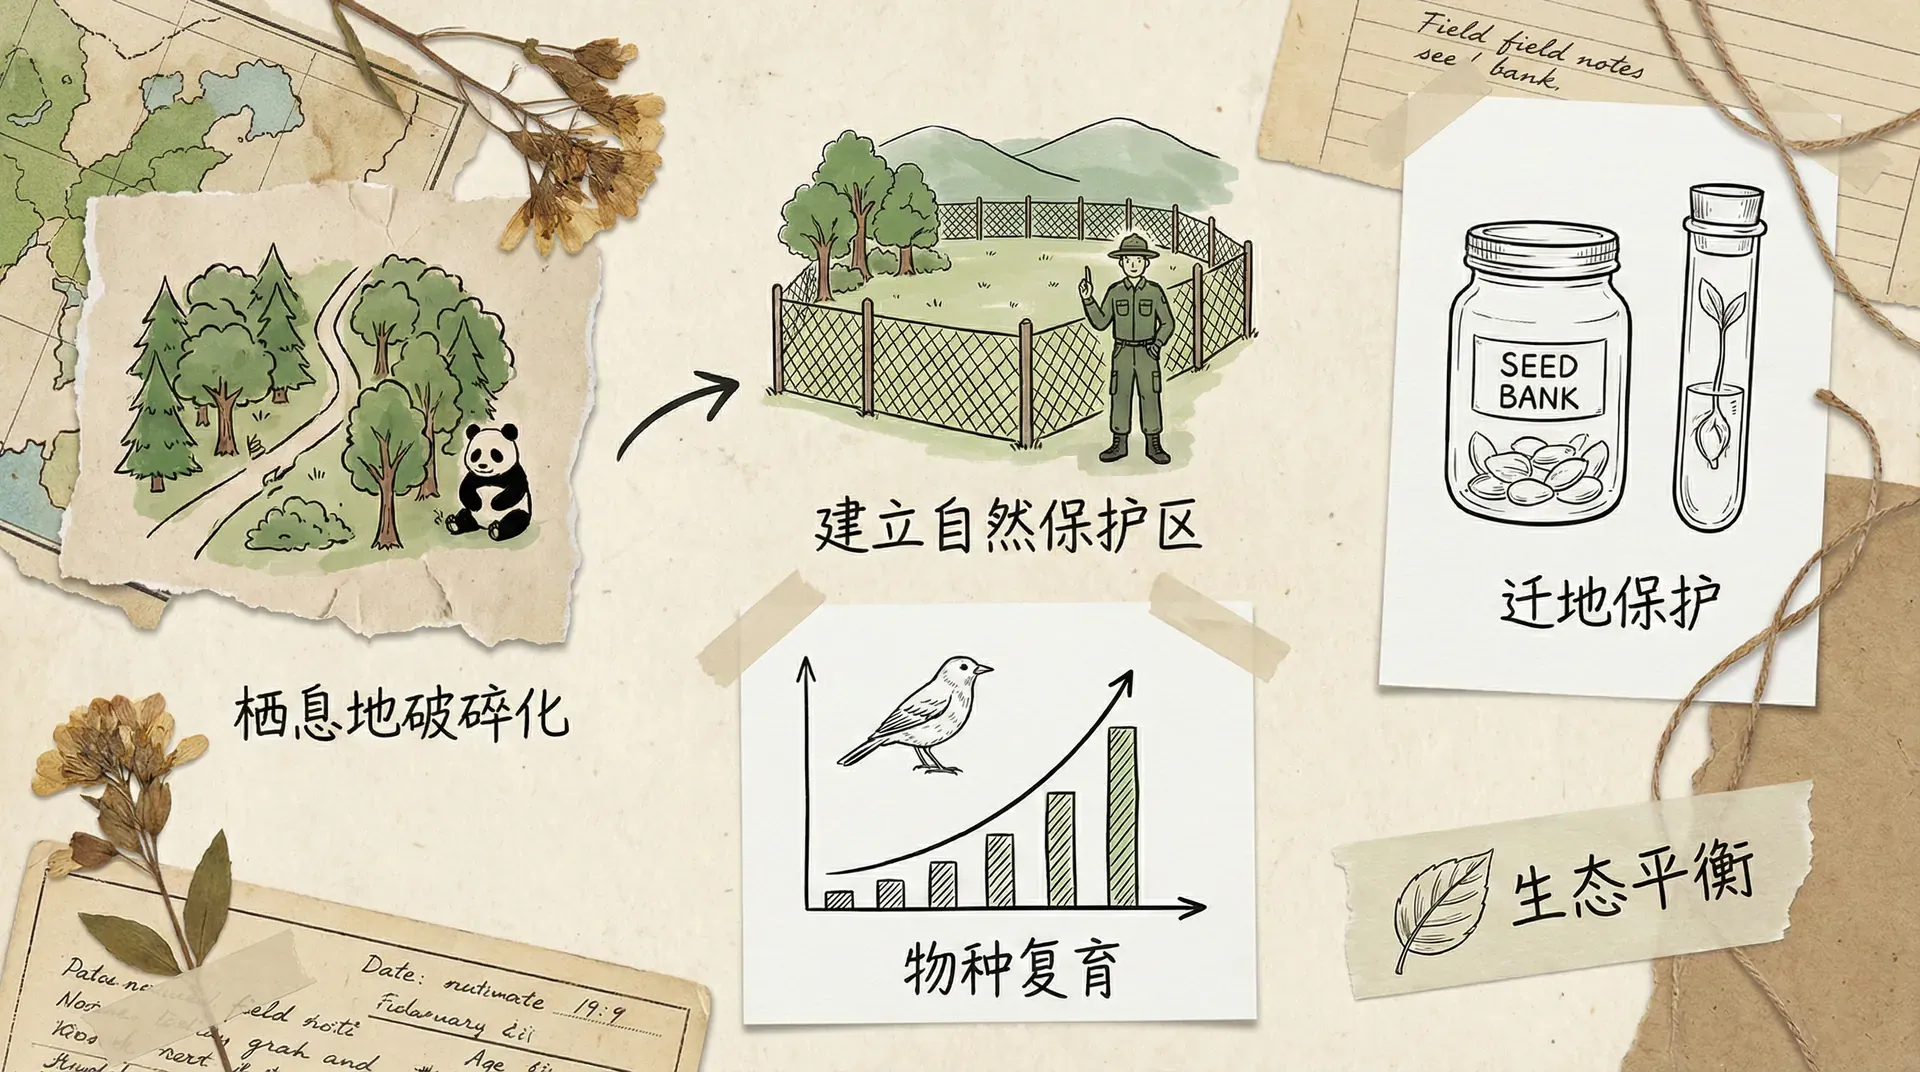
理解生物多样性的形成与维持机制,对于生态保护具有重要意义。
-
保护需要考虑空间尺度。一个小的保护区可能只能保护点位多样性,但区域多样性需要保护足够大的面积,包含不同的生境类型,让物种能在空间上更替。
-
干扰管理需要以当地证据确定类型、强度和季节。某些草地在一定放牧水平下可维持较高植物丰富度,另一些已退化地点则需要休牧或减牧;不能把“适度干扰”直接转换成普遍的放牧建议。
-
保护关键种和关键过程至关重要。顶级捕食者的消失会引发级联效应,改变整个食物网的结构。同样,传粉昆虫、种子传播者等功能类群的丧失,会破坏生态系统的正常运转。
-
多样性不仅关乎物种数量,更关乎生态系统的功能和服务。一个功能完整、相互作用网络健全的生态系统,才能真正具备抵御环境变化、持续为人类提供服务的能力。
从西双版纳的热带雨林到青藏高原的高寒草甸,从长江三角洲的湿地到大兴安岭的针叶林,中国辽阔的土地上孕育着丰富多样的生态系统。保护这些生态系统的多样性,不仅是为了自然本身,更是为了我们自己和子孙后代的福祉。