生态竞争
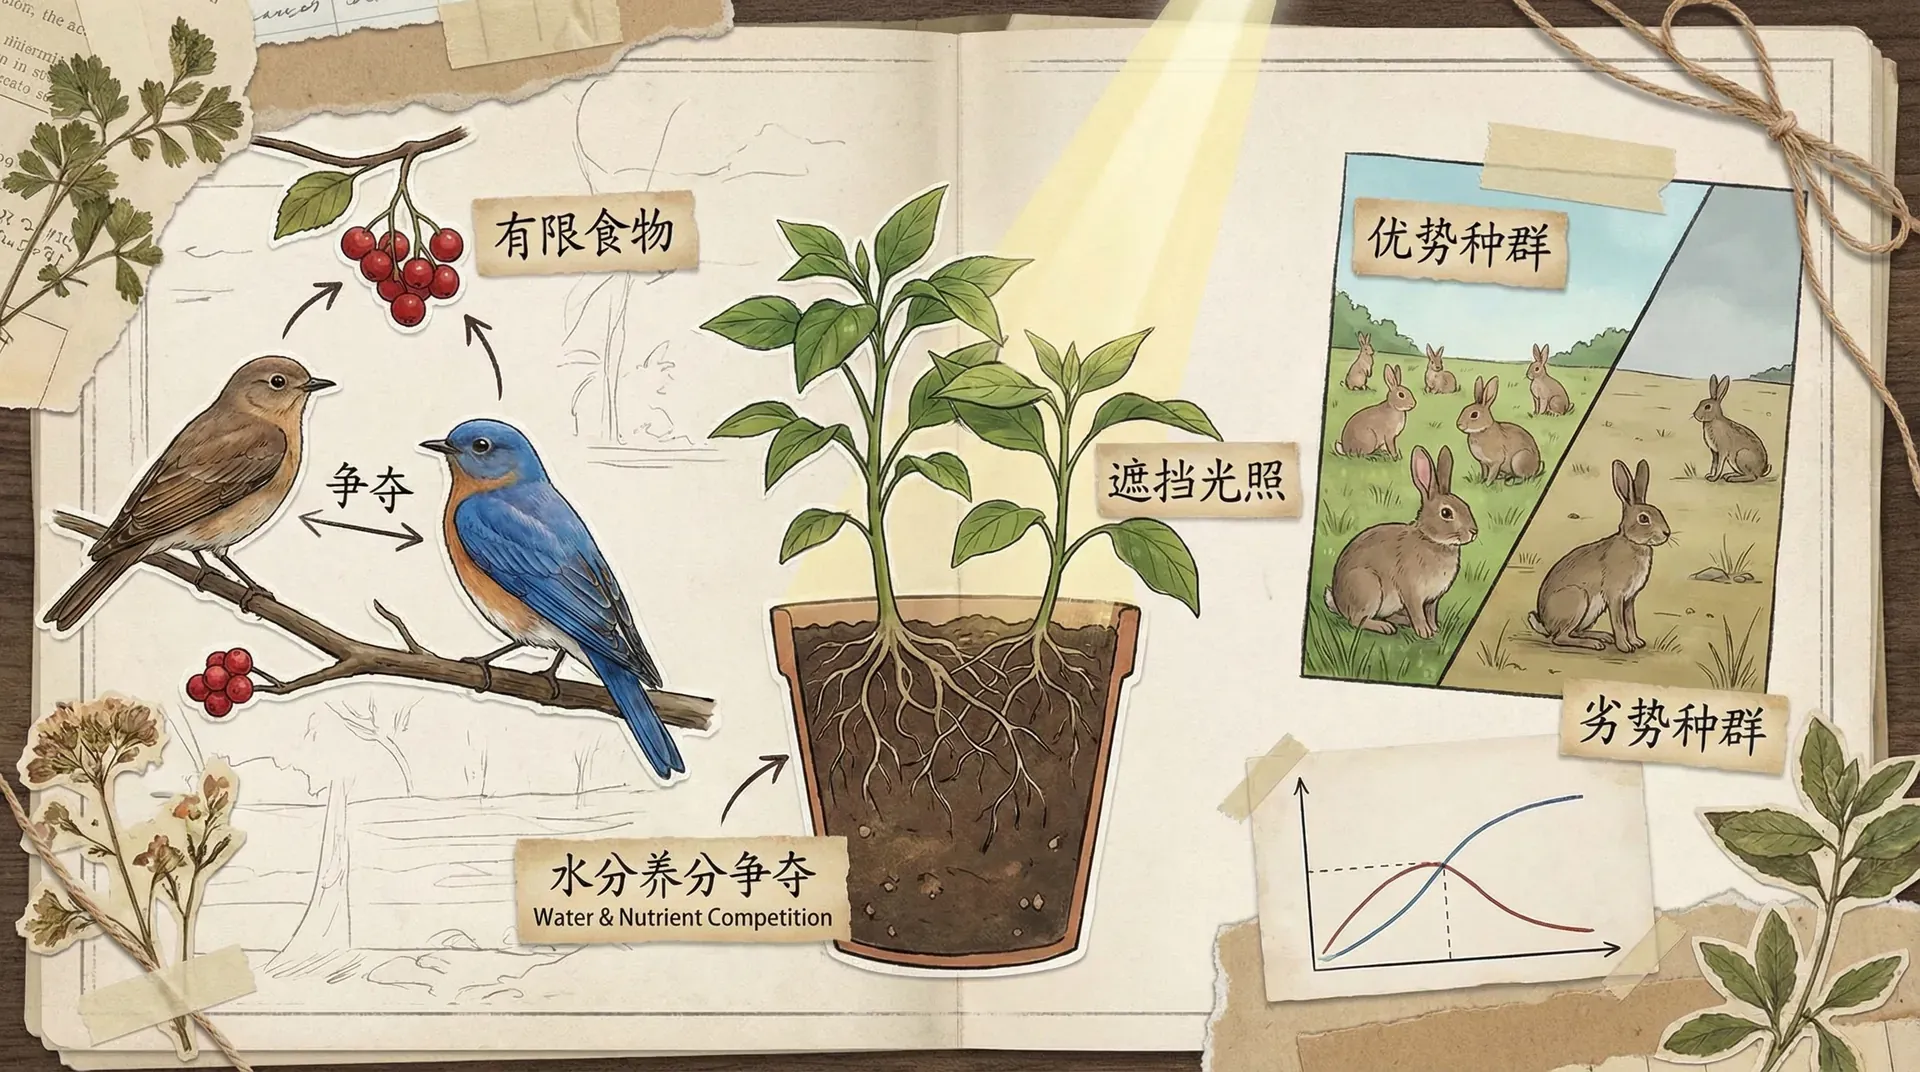
生态系统中的生物并不是孤立存在的,而是彼此相互联系、相互影响的整体。它们在生命活动过程中持续发生着多种多样的相互作用,其中竞争被认为是最为重要且普遍存在的一种关系。竞争不仅发生在野外的原始森林和草原中,也广泛出现在我们身边的各种自然和人工生态系统里。
比如,在城市公园中,各类植物为了争夺阳光、水分和养分而展开激烈的竞争;在农田里,作物和杂草之间也在无时无刻不进行着生存资源的分配和争夺。即使是在微观世界中,如土壤中的微生物,也因空间或营养来源的限制进行着看不见的激烈竞争。正是这种无声却持久的生存较量,推动着生物种群的动态变化,并影响着生态系统的结构与稳定性。
什么是生态竞争
竞争的基本概念
生态竞争是指两个或多个生物个体或群体为了获取有限的资源而产生的相互作用过程。这些资源可能是食物、栖息地、阳光、水分,或者配偶。竞争发生在多个个体对同一限制性资源的共同利用降低彼此适合度时。资源看似丰富时,空间、时间或配偶仍可能成为限制因素;资源减少也不一定让竞争增强,因为种群密度和需求会同时变化。
竞争并不是一种“非有即无”的现象,而是一个连续变化的过程。竞争的激烈程度取决于资源需求量与供给量的比值。
我们可以把竞争分为两大类型:种内竞争和种间竞争。种内竞争发生在同一物种的个体之间,比如同一片森林中的松树为阳光而竞争;种间竞争则发生在不同物种之间,比如水稻和稗草争夺土壤中的养分。
竞争的三种方式
生物进行竞争的方式可以分为三种基本类型:
- 消耗性竞争是最常见的竞争方式,也称为利用性竞争。在这种竞争中,生物通过更快或更有效地消耗共同需要的资源来获得优势。比如在中国北方的草原上,不同种类的草本植物都需要土壤中的氮、磷等营养元素,谁能更快速地吸收这些养分,谁就能获得更好的生长条件。
- 干扰性竞争通过攻击、领域防卫或化学抑制等方式直接限制对方使用资源。植物化感是否存在,需用活性物质、剂量和对照实验确认;邻近植物生长较差也可能来自遮阴、根系争水或土壤差异。
- 抢占性竞争主要围绕空间资源进行,谁先占据了有利位置,谁就获得了竞争优势。在潮间带的岩石表面,各种海藻和贝类为了附着空间展开激烈竞争,这在我国东南沿海地区的海岸生态系统中表现得尤为明显。
种内竞争与种间竞争
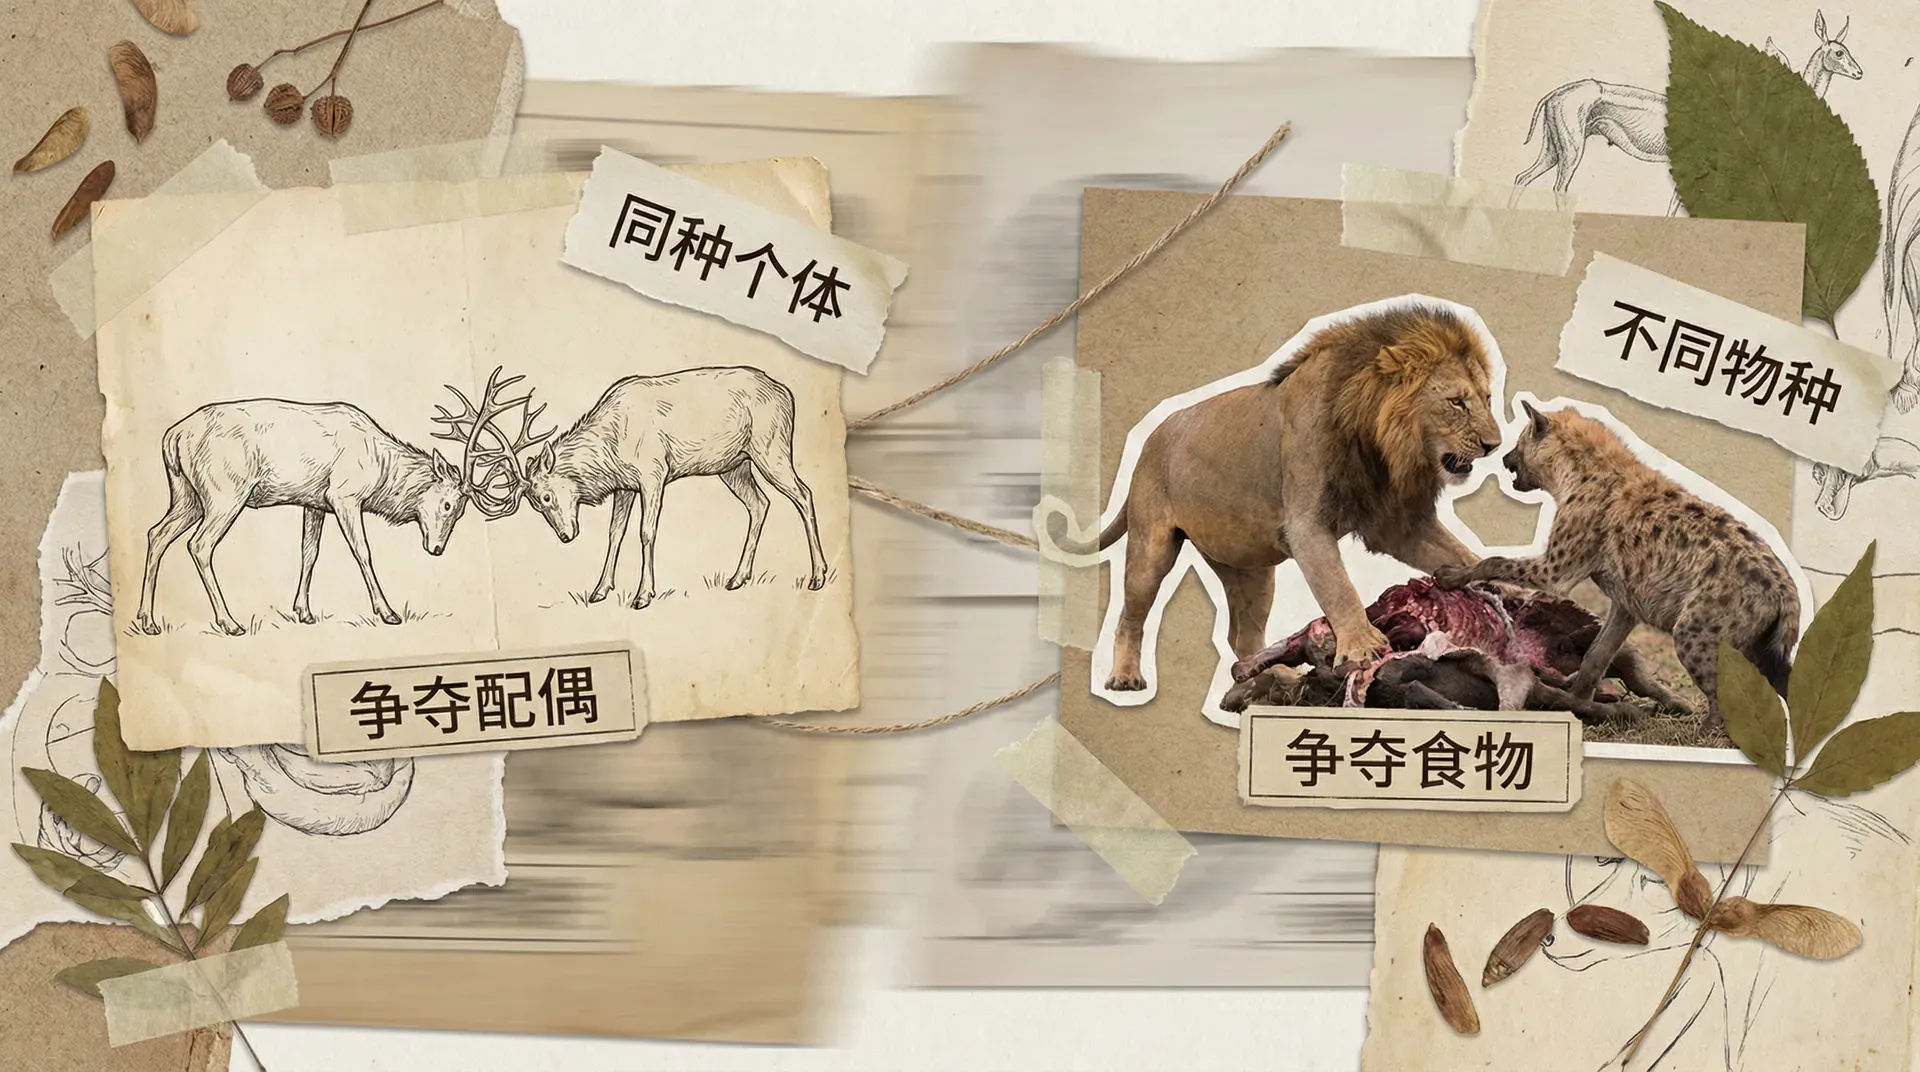
种内竞争的特点
同种个体通常共享较多资源需求,因此种内竞争常很明显,但强度不能只由“同种”推出。不同年龄、性别和大小的个体可能利用不同资源,而生态位高度重叠的两个物种也可能产生很强的种间竞争。在河南省的小麦田中,我们可以观察到明显的种内竞争现象:当小麦播种密度过高时,幼苗之间为了获取阳光和养分而竞争,结果导致植株变细、产量下降。
种内竞争有一个重要特点,就是它具有自我调节的功能。密度升高可能降低个体生长、繁殖或存活,形成负密度制约。种群因此可能围绕某个水平波动,也可能因时间滞后、资源崩落或随机事件出现超调,并不存在所有种群都会回到的“合适水平”。这种现象在许多动物种群中都能观察到,比如东北地区的野猪种群。
种间竞争的作用
种间竞争的结果往往更加复杂多样。在长期的进化过程中,种间竞争成为推动物种分化和生态位分离的重要力量。在环境恒定、没有空间异质性和外来补充等条件下,若两个物种长期依赖同一限制资源且一个物种始终具有优势,模型会预测局部竞争排斥。真实群落中的扰动、迁移、捕食和多资源权衡都可能改变结果。
但是,种间竞争也可能促进物种的共存。共存可能来自既有性状差异、行为可塑性、环境筛选或长期进化。要证明竞争促成了分化,需要比较同域和异域种群,并排除气候、历史和随机差异;观察到共存本身并不能说明物种主动避让。
竞争强度的影响因素
竞争强度受到多个因素的影响,其中最重要的是环境容量和种群密度。竹类在山谷与坡地的分布差异可能同时反映养分、水分、光照、克隆扩展和干扰历史。资源减少常会改变竞争强度,但结果未必总是竞争增强,因为低生产力也可能使植株稀疏、减少邻体接触。需要通过邻体移除或资源添加实验,才能把竞争效应与环境筛选区分开。
竞争排斥现象
竞争排斥的过程
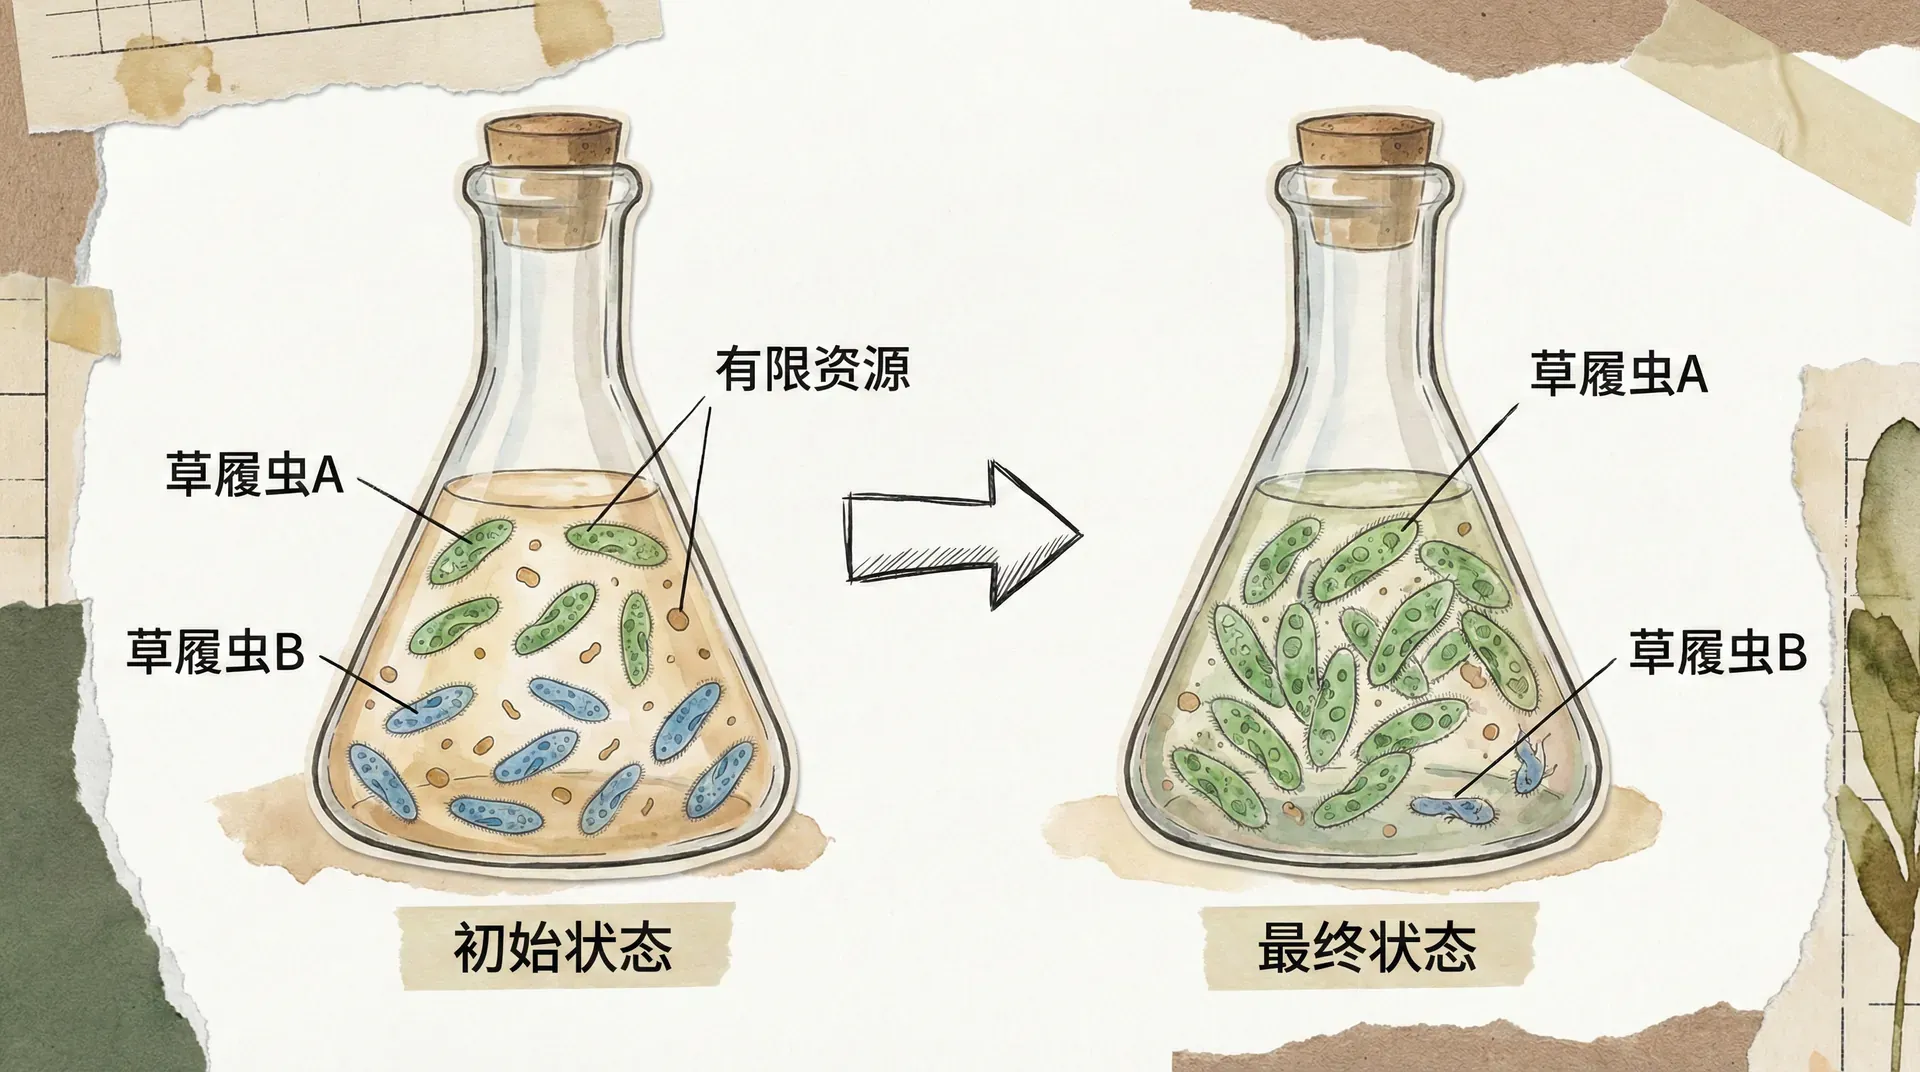
竞争排斥是生态学中一个重要概念,描述的是当两个生态需求完全相同的物种同时存在于同一环境中时,其中一个物种会被另一个物种完全排除的现象。这个过程通常需要经历几个阶段。
最初,两个物种都能够在环境中正常生长繁殖。但随着种群数量的增加和资源的日益稀缺,竞争开始加剧。竞争结果取决于两种生物对资源的影响以及资源对各自增长的限制。稳定共存要求物种受到自身密度制约的程度相对更强;若优势随环境或频率改变,初始密度和时空异质性也可能使结果反转。
中国的入侵物种
加拿大一枝黄花的入侵就是竞争排斥现象的例子。这种原产北美的植物在20世纪30年代被引入我国作为观赏植物,但很快就逃逸到野外。加拿大一枝黄花具有极强的繁殖能力和竞争优势,它能够快速占领空地,并通过地下根茎迅速扩张。
加拿大一枝黄花的扩张可能与繁殖传播、扰动生境、资源利用和天敌作用等多种因素有关。比较入侵地与原产地、设置本地植物对照并测量种子输入,才能区分“天敌释放”与竞争优势等解释。
在江浙一带的农田边缘和荒地中,加拿大一枝黄花大面积生长,排挤了许多本土植物,如野菊、紫云英等。这种单一物种的大面积扩张不仅破坏了植物群落的多样性,还影响了以这些本土植物为食的昆虫和其他小动物的生存。
凤眼莲原产南美,在富营养、流速较缓的水体可形成密集覆盖,减少水下光照并改变溶解氧的昼夜变化。鱼类死亡还可能涉及分解耗氧、水温和污染等过程,不能简单写成植物直接“消耗氧气”造成的单一路径。
竞争结果的四种可能性
生态学家通过理论分析和实验观察,总结出种间竞争可能产生的四种结果:
稳定共存是最理想的结果,这要求每个物种对自身种群增长的抑制作用要强于对其他物种的抑制作用。换句话说,种内竞争必须强于种间竞争。
| 初始物种A密度 | 初始物种B密度 | 竞争结果 |
|---|---|---|
| 高 | 低 | A物种获胜 |
| 低 | 高 | B物种获胜 |
| 中等 | 中等 | 共存区域 |
| 接近边界 | 接近边界 | 结果依赖初始分布,存在不稳定共存 |
不同的初始密度条件下,两物种的竞争结果可表现为A获胜、B获胜、稳定共存,或依赖初始情况的不稳定共存。共存通常出现在两物种对自身的抑制作用大于对方时。
竞争的平衡机制
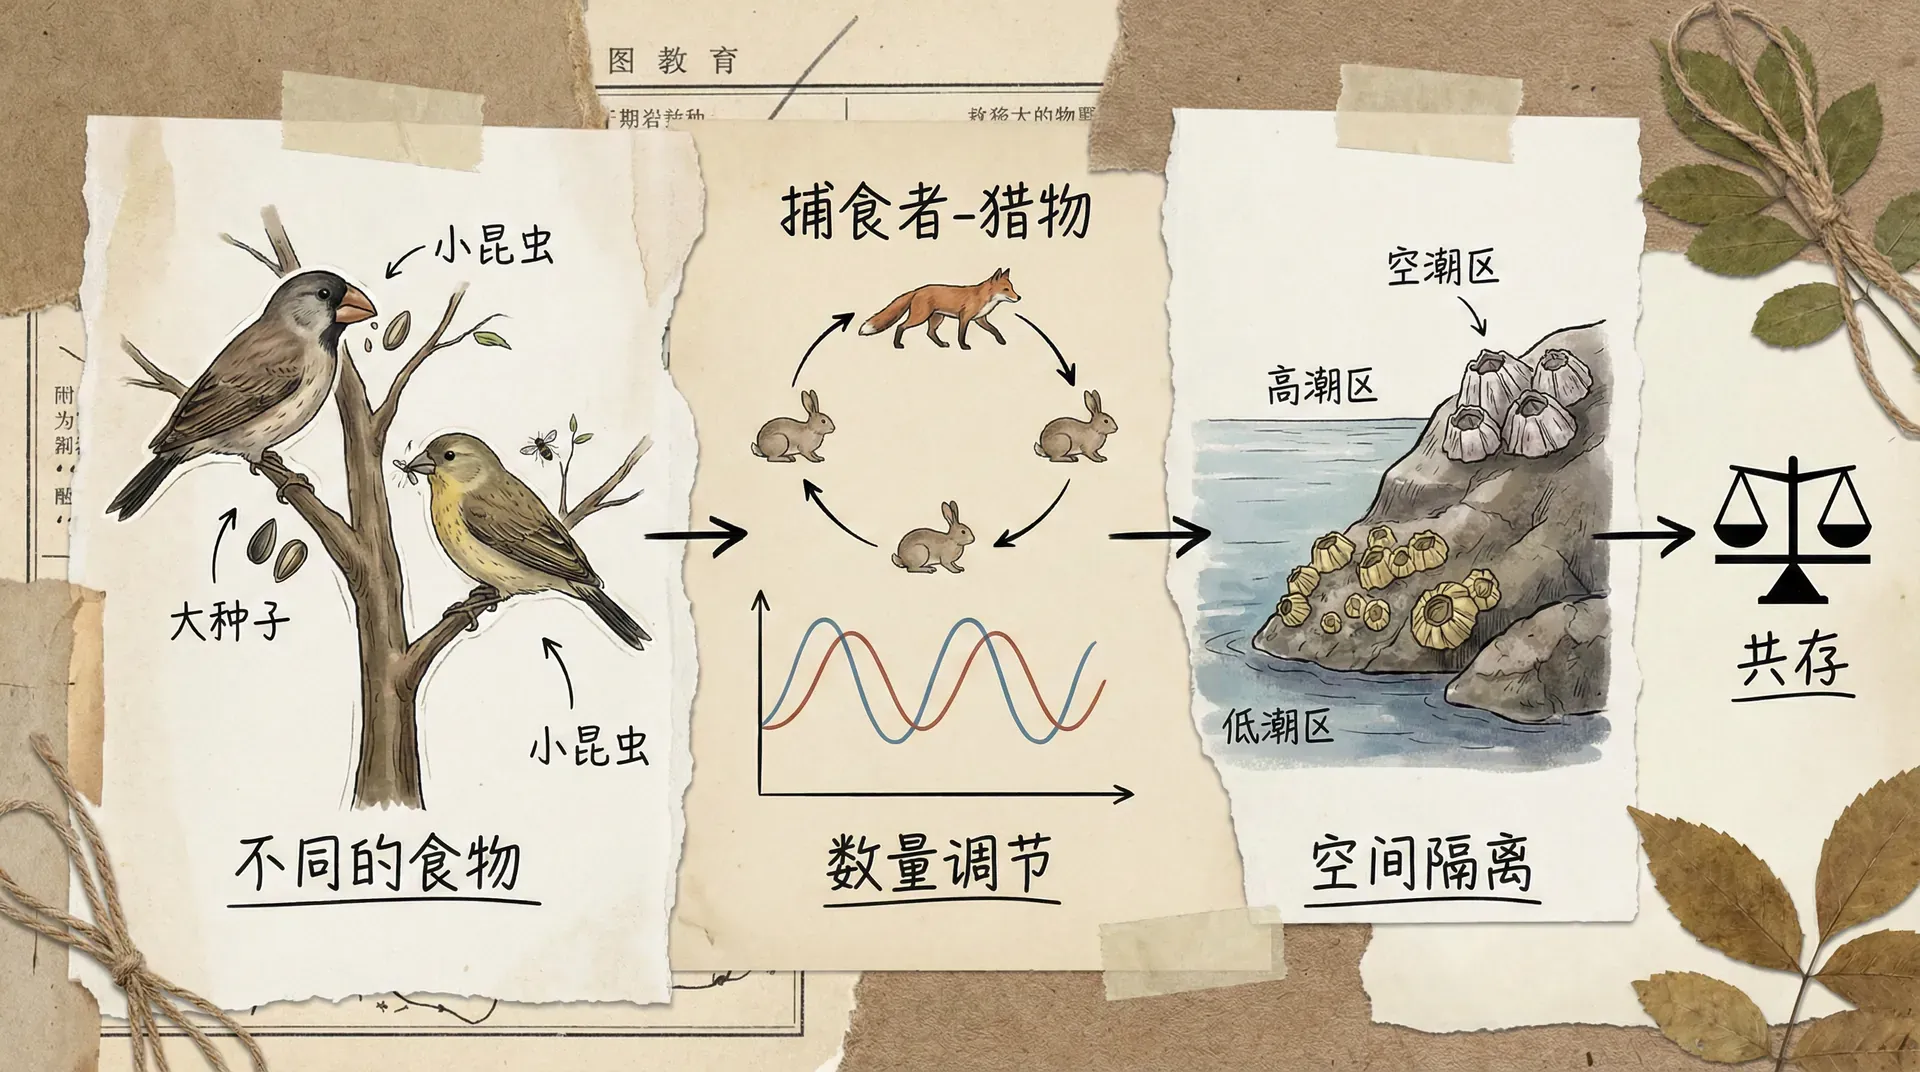
栖息地选择与资源分配
个体可能依据可感知的资源、风险和竞争者线索改变栖息地选择,但这种行为受到信息、移动能力和历史占据限制。资源分化也可能来自物种原有差异,并非生物有意识地避免竞争。栖息地选择就是一种重要的竞争缓解机制。
以东北地区的森林为例,在同一片林地中生长着多种鸟类,它们虽然都以昆虫为食,但在空间利用上却表现出明显的分化。啄木鸟主要在树干上觅食,山雀类更偏好在树枝间活动,而地面的鸟类如鸫则主要在林下层寻找食物。
理想自由分布模型提出:如果个体能够充分获知环境、自由移动且竞争能力相近,更多个体进入高资源斑块后会降低其中的个体收益,直到不同斑块的预期收益趋近。真实个体可能受领地、信息不足和移动成本限制,因此观察到空间分布偏离资源比例时,应继续检验这些假设。
生态位分化
生态位分化描述共存物种在资源利用、栖息地或活动时间等方面的差异;这些差异可能早于共同出现,也可能来自可塑性或竞争驱动的进化,从而减少直接竞争的现象。
暖温带落叶阔叶林中,不同树种对光照、土壤水分和更新干扰的耐受范围可能不同。先锋树种常在林窗中更新,部分耐阴树种能在林下维持幼苗,这些差异有助于解释共存;但林龄、种源和病虫害同样会影响格局,不能从一次分层观察直接认定竞争已经造成生态位分化。
湿地鸟类会因腿长、喙形和取食动作不同而利用不同水深与猎物。白鹭和苍鹭常以伏击或缓步搜索方式捕捉鱼类等猎物,鹮类的弯喙更适合在浅水或泥滩探触无脊椎动物。要判断这是否减少竞争,还需测量食谱重叠、资源限制与空间利用,而不能只比较外形。
时间和空间的分离
时间分离是另一种重要的竞争缓解机制。许多生态需求相似的物种通过在不同时间进行活动来避免直接竞争。
昼夜活动节律能造成时间分离。例如,日间取食昆虫的鸟类与夜间活动的食虫蝙蝠可能利用部分相似猎物,却在活动时段上错开。麻雀的食谱包含大量种子,并不是与蝙蝠简单对应的食虫者;即使两个物种昼夜错开,也要先证实猎物有限且食谱重叠,才能说它们因此缓解了竞争。
季节性的物候差异也可能改变相互作用。高山草甸植物的花期会随物种、海拔、积雪和年度温度而变化,早季与晚季开花者对传粉者的利用可能部分错开。不过,花期错开也可能来自气候适应,植物之间还可能通过共同吸引传粉者产生促进作用,因此需要观察访花网络和繁殖成功才能判断竞争是否减弱。

说明:
- 麻雀(昼行):在白天6:00~18:00间逐步进入活跃状态,早晚活跃度较低,正午最活跃。夜间休息。
- 蝙蝠(夜行):夜间活跃,白天大多在洞穴中休息。傍晚前后活跃度上升。
- 活跃度为相对值,数值与原动画仪表盘进度大致对应。
竞争塑造的进化适应
性状替代现象
性状替代指近缘物种在同域时的性状差异大于异域时的模式。它是竞争驱动分化的候选证据,但还需证明性状具有遗传基础、差异与资源利用相关,并排除环境梯度、创始效应和杂交等解释。
检验性状替代时,可在多个独立同域地点和异域地点测量近缘物种的取食结构,同时记录温度、基质和食物。若同域差异在重复地点稳定出现,并与资源分化和竞争实验一致,才更支持竞争驱动的解释。单个牡蛎或啄木鸟地点的形态差异不足以成为结论,因此这里把数值当作比较方法的示意,而不对应特定野外调查。
形态差异与生存策略
长期的竞争压力不仅塑造了物种的形态特征,还影响了它们的行为策略和生理特征。
在中国西南地区的喀斯特地貌中,不同种类的攀援植物发展出了各具特色的攀爬策略。木质藤本植物如猕猴桃依靠强健的茎干缠绕上升,而草质藤本如葛藤则通过快速生长和密集分枝来抢占光照空间。一些植物如薜荔发展出了气生根,能够在垂直岩壁上攀爬,开辟了其他植物无法利用的生态空间。
上方显示了两个相近物种在同域分布时比异域分布时表现出更大的形态差异,这是竞争驱动进化的重要证据。
中国物种的进化
中国幅员辽阔,地形复杂,为物种的适应性进化提供了丰富的舞台。大熊猫和小熊猫就是一个有趣的例子,虽然它们都以竹子为主食,但在食物选择上表现出了明显的分化:大熊猫主要取食竹子的嫩茎,而小熊猫更偏好竹叶,这种取食差异减少了两者之间的食物竞争。
在青藏高原上,不同海拔高度的植物群落展现出了明显的垂直带状分布。随着海拔升高,温度下降,氧气稀薄,植物逐渐从高大的乔木过渡到低矮的灌木,最后是贴地生长的草本植物。每一个海拔带的植物都发展出了适应当地环境的特殊形态和生理特征。
竞争不仅是一种破坏性力量,更是推动生物多样性发展的重要动力。正是在竞争的压力下,不同物种才能够不断进化出新的适应策略,最终形成丰富多彩的生物世界。
竞争研究的科学证据
实验室观察结果
实验室竞争实验可以把温度、食物和初始密度控制在预定范围内。下面以两种水蚤的简化培养设计说明如何比较单养与混养;它表达实验逻辑,不对应某个机构已经发表的具体数据。
实验设计很简单:在相同的培养条件下,分别单独培养两种水蚤,然后将它们放在一起混合培养,观察种群数量的变化。结果发现,当单独培养时,两种水蚤都能稳定增长并维持在较高的数量水平;但当混合培养时,其中一种水蚤的数量逐渐下降,最终完全消失。
进一步的正交实验可以同时改变温度与湿度,检验环境是否改变竞争系数。他们发现,在温度和湿度等外部环境因素不同的情况下,同样的两种物种可能表现出完全不一样的竞争优势,甚至出现一方翻盘的情况。
这些研究结果表明,环境因子的变化不仅会影响竞争的激烈程度,还可能决定最终哪一方能在生态系统中占据优势。因此,理解和考虑环境背景,是预测和分析生态系统中物种共存与排斥现象时不可忽视的重要因素。
野外调查发现
野外的竞争现象往往更加复杂,但也为我们提供了更接近真实情况的观察结果。
在长白山的针阔混交林中,科研人员发现了鸟类觅食行为的精细分化。五种外形相似的鸟类虽然都在同一片森林中生活,都以昆虫为食,但它们在树冠的不同部位进行觅食活动。有的主要在树冠顶部活动,有的偏好树干中部,还有的专门在枝条末梢寻找食物。
这种空间分化如此精确,以至于研究人员能够根据鸟类在树冠中的位置来预测它们的种类。更有趣的是,当其中一个物种因为迁徙或其他原因暂时离开时,其他物种会扩大自己的活动范围,临时占用空出来的生态空间。
在中国南方的水稻田生态系统中,研究人员发现了植物与昆虫之间复杂的竞争关系网络。水稻不仅要与杂草竞争阳光、养分和空间,还要面对多种害虫的取食压力。而这些害虫之间也存在复杂的竞争关系,比如稻飞虱和稻蓟马虽然都取食水稻汁液,但它们偏好植株的不同部位,从而减少了直接竞争。
中国生态保护的应用

竞争理论在中国的生态保护和恢复工作中发挥着重要作用。
在退耕还林工程中,科学家利用竞争原理来设计植物群落的搭配。例如,在西北地区的荒山造林实践中,通常采用以下措施:
- 种植不同根系深度的树种,提高水资源利用效率:
- 深根系的刺槐能够吸收深层土壤水分
- 浅根系的沙棘主要利用表层水分
- 通过合理组合,减少种间水分竞争,促进植物共同生长
在生物防治中,释放寄生蜂控制玉米螟利用的是寄生者—宿主关系,不属于竞争。竞争理论则可用于判断多种天敌是否争夺同一宿主,以及组合释放是否产生相加、协同或相互削弱的效果。寄生蜂的幼虫在玉米螟体内发育,最终导致玉米螟死亡,这种生物防治方法既环保又有效。
在生态恢复工作中,必须充分考虑物种间的竞争关系。盲目引入外来物种可能会破坏本土生态系统的平衡,造成不可逆转的生态损失。
生态竞争的意义
理解生态竞争机制,有助于保护生物多样性和提升生态管理水平。许多濒危物种面临的竞争压力,特别是来自外来物种的入侵,已成为生物多样性保护的重点问题。例如,中华鲟与其他鱼类竞争有限的食物资源,大熊猫要依赖于竹子的持续更新,保护工作都需统筹群落平衡,防止某类资源被过度占据。
在农业领域,利用作物和天敌之间的互补和竞争关系,可以减少农药使用,提高产出,如玉米与大豆套种、生物防治棉蚜等做法。覆盖作物通过抢占资源抑制杂草,同时改善土壤,充分体现了竞争机制的积极作用。
城市生态建设也需充分考虑植物的竞争关系。合理搭配乔木、灌木、草本,分层配置植被,有效利用空间并提升生态效益,促进稳定的城市绿色群落。例如,不同植物适应不同水深和光照,通过科学配置支持整体生态系统的健康。
理解竞争有助于判断哪些资源限制种群,以及管理措施可能怎样改变物种共存。物种的功能可能相似、互补或随环境改变,不能预设每个物种都承担唯一作用;保护决策应同时考虑物种、遗传和生态系统多样性,以及不可替代的关键过程。