种群生物学基础
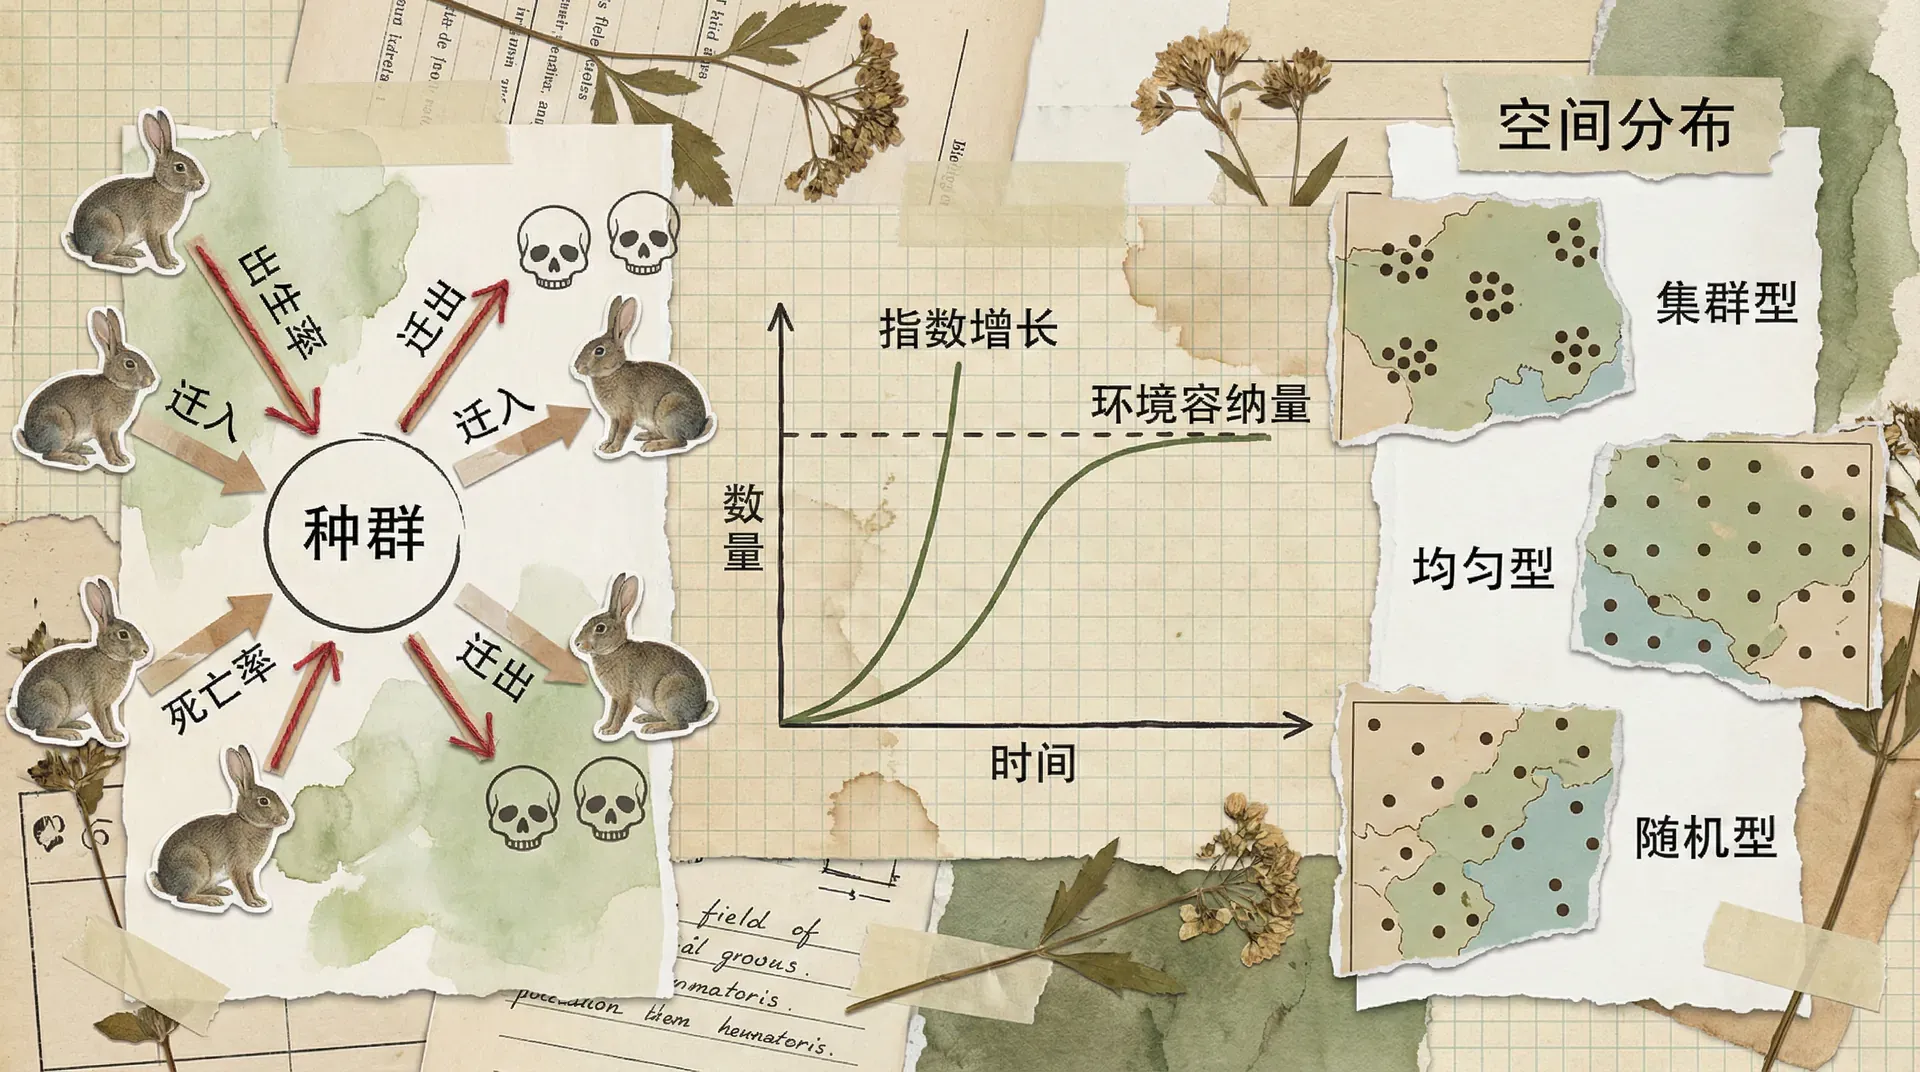
种群生物学(Population Biology)是研究生物种群数量变化及其规律的学科。它关注于同种生物在特定区域中所组成的种群,通过分析个体的出生、死亡、迁入与迁出等过程,揭示种群数量随时间和空间的动态变化。种群是生态系统的基本单位,不同物种的种群,其数量变化模式、生存策略和调节机制存在显著差异。
在自然界中,种群规模受到多种内外因素的共同影响,包括资源的供给、天敌的威胁、疾病流行和环境条件的变化。通过研究这些影响因素,种群生物学不仅能够解释种群数量的周期波动和突变,还能为野生动物保护、渔业管理以及入侵物种防控等实际问题提供理论基础和科学方法。
典型的问题包括:一个濒危动物种群能否恢复到安全水平?一个入侵种的扩散速度有多快?合理的资源利用强度应如何确定?这些都与种群的生存、繁殖、年龄结构、空间分布和与其他种群的相互作用密切相关。
繁殖生物学与种群
种群的持续存在依赖于成功的繁殖。只有不断有新个体出生,种群才能抵御死亡和环境压力,维持数量的稳定甚至增长。繁殖失败会导致种群数量下降,长期下去可能引发濒危或灭绝。
不同物种在长期进化过程中形成了各具特色的繁殖策略。例如,物种在成熟年龄、后代数量、后代大小和亲代投入之间形成不同组合。传统的r/K框架可帮助比较两个端点,但现实物种多分布在连续谱上,同一物种也会随年龄和环境调整繁殖投入;不能把生活史简化成两种固定策略。
繁殖价值的概念
繁殖价值描述不同年龄或阶段个体对种群未来增长的预期贡献。它既取决于未来可能产生的后代,也取决于存活到各繁殖阶段的概率,因此必须由年龄别存活率和繁殖率共同估计。对于朱鹮等长寿鸟类,不能只凭当前年龄判断某个个体的繁殖价值。
繁殖价值是年龄或阶段特异的相对指标,表示该个体对种群未来增长的预期贡献。计算时既考虑未来繁殖,也考虑存活到各繁殖阶段的概率,并按后代的未来贡献加权,因此不等同于简单统计余生后代数。

说明:图中曲线用于说明繁殖价值随年龄变化的概念,不代表朱鹮的实测年龄别参数。真实曲线需要同一研究口径下的存活率、繁殖率和种群增长率数据。
未成熟个体当期不繁殖,但只要有机会存活到繁殖期,其未来繁殖价值就未必为零。图中的先升后降形态可作为一种可能情形;峰值年龄和下降速度必须由具体种群的生命表估计,不能从性成熟年龄直接推出。
净繁殖率与种群趋势
净繁殖率(R0)是衡量种群增长潜力的关键指标。它表示在当前的死亡率和繁殖率条件下,平均每个个体在一生中能产生多少个存活到繁殖年龄的后代。
在生命表所描述的年龄别存活率和繁殖率保持不变、且世代定义一致时,净繁殖率 表示一代平均能替代自身, 表示不足以替代。它与任意时刻的短期增长率并不完全相同。对大熊猫等长寿物种,估计值高度依赖年龄结构、监测期和圈养或野外条件,不宜给出脱离数据来源的固定区间。
繁殖策略的多样性
自然界中的生物采用了截然不同的繁殖策略。毛竹代表了一次性繁殖(大爆发式繁殖)的极端例子,而银杏则是多次繁殖(迭代式繁殖)的典型代表。
许多竹类会经历很长的营养生长期并出现大范围同步开花,但周期因种和种群而异,并非毛竹都固定为67年。部分竹类开花后地上秆或整株死亡,也有个体能够继续存活。同步结实可能产生捕食者饱和效应,但还存在遗传时钟、气候触发等解释,需要把假说与已观测事实区分开。
银杏可在一生中多次繁殖,进入生殖阶段的年龄会因繁殖方式、栽培条件和个体生长而变化。多次繁殖把投入分散到多个年份,能降低某一年失败造成的全部损失,但每年的存活、资源和天气仍会影响结实。

繁殖投入的权衡
生物在繁殖上的投入面临着复杂的权衡关系。过多的繁殖投入可能影响个体的存活,而投入不足则可能影响繁殖成功率。
鸟类繁殖可用来理解这种权衡。食物供应、繁殖经验、巢位安全和人工管理都可能影响产卵、孵化与育雏结果;圈养和野外资料若来自不同年份或管理方案,不能把蛋数差异只归因于营养。检验繁殖投入代价,需要追踪亲鸟后续存活和未来繁殖,而不是只比较一次产卵数量。

人工管理可能改变资源与风险,但是否提高繁殖投入、是否影响雌鸟长期存活,都需要年龄、健康和多年繁殖记录支持。这类资料的价值在于帮助区分当期繁殖成功与终生繁殖成功。
后代质量与数量的平衡
繁殖策略不仅涉及投入多少资源,还涉及如何分配这些资源。是产生更多但较小的后代,还是产生较少但较大的后代?这是生物面临的基本选择。
藏羚羊通常每胎产一仔,而野猪一胎可产多仔,这能展示后代数量、单个后代投入和亲代资源之间的差异。窝仔数还会随母体年龄、营养和环境改变,单胎并不保证幼仔存活,多胎也不是对某一种死亡压力的简单回应。比较生活史时,应同时观察幼仔大小、育幼投入、繁殖间隔与年龄别存活率。
理解不同物种的繁殖策略差异,有助于制定更加精准的保护措施。对于藏羚羊这样的物种,保护重点应放在提高幼仔存活率上;而对于野猪等物种,则需要考虑栖息地容量的限制。
种群增长模式与调节机制
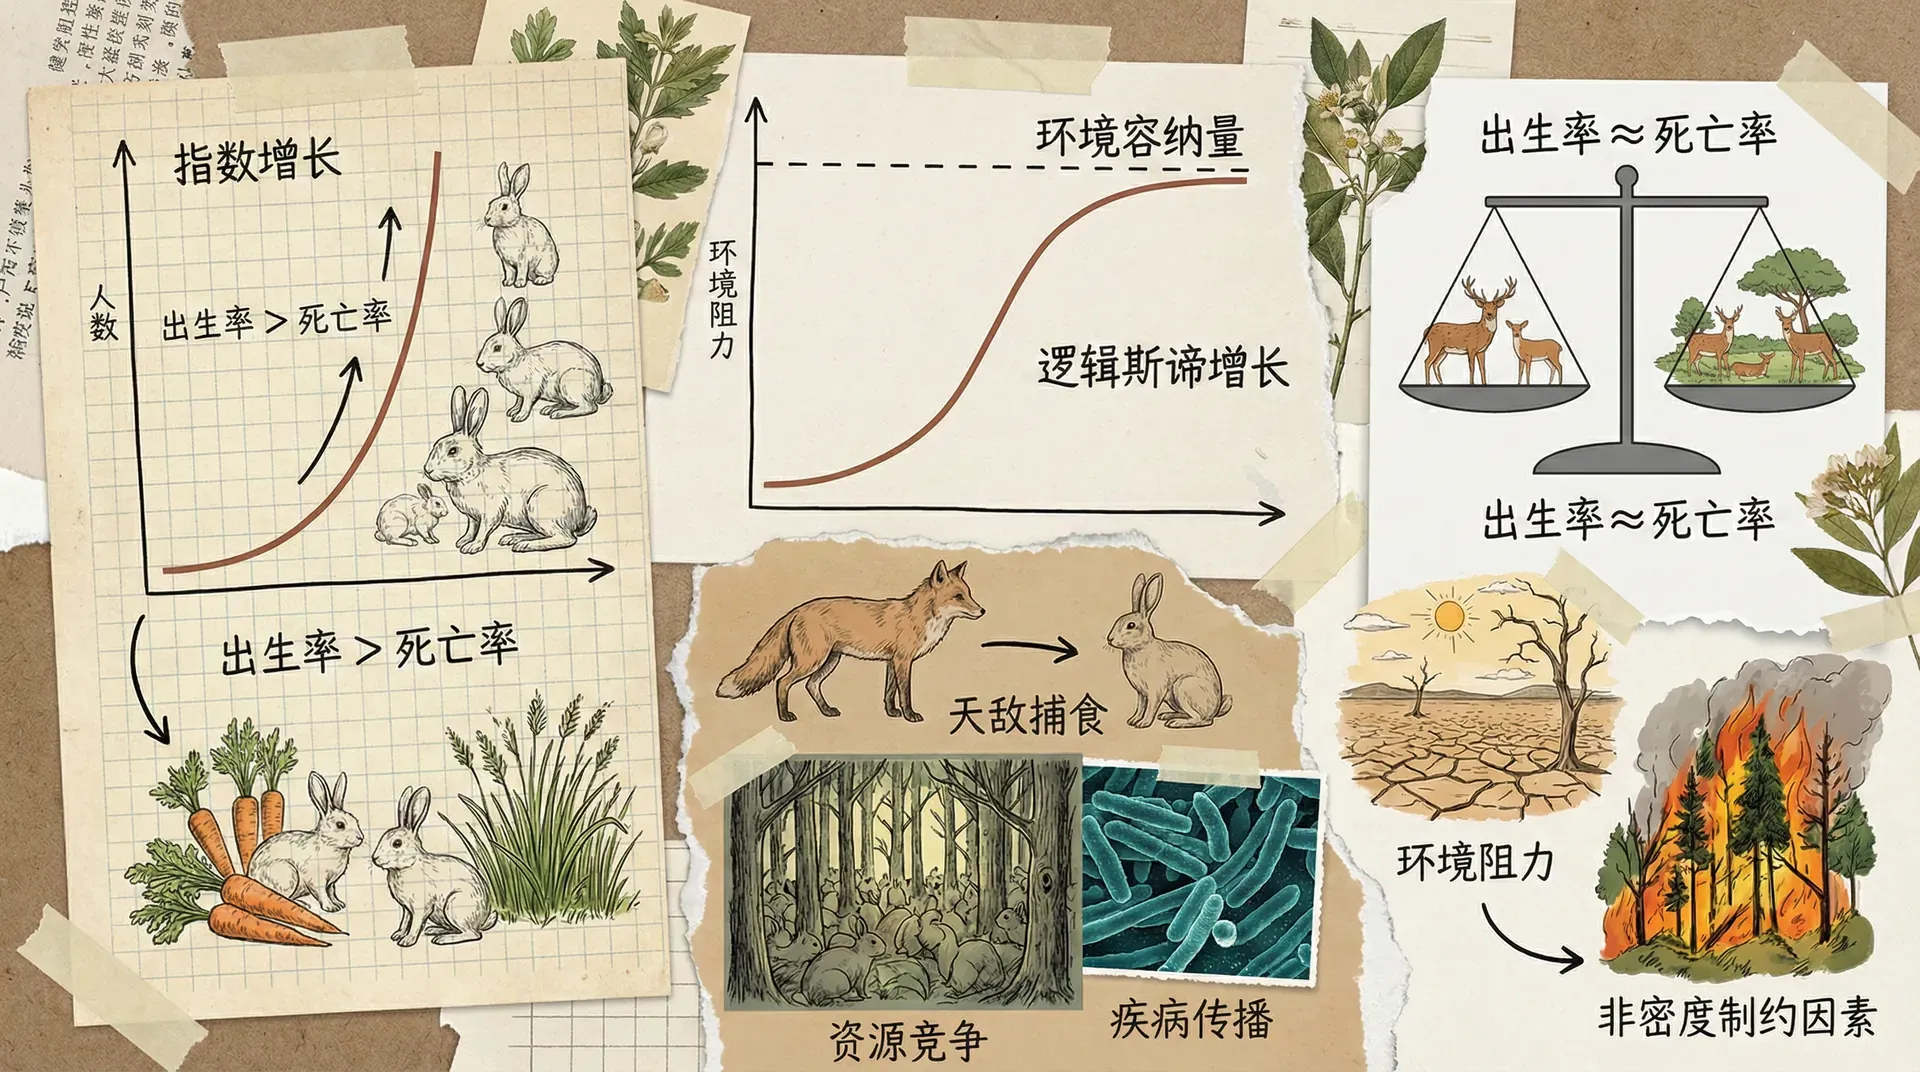
种群数量的变化并非杂乱无章,而是呈现出一定的规律性。这些规律既受到物种自身生理特性的影响,也会受到环境资源和天敌等外部因素的调节。
深入理解种群数量变化的模式,不仅有助于我们科学预测未来趋势,还能为资源管理、生态修复和物种保护措施的制定提供坚实的理论依据。例如,合理调节野生动物的种群密度,有助于维持生态系统的稳定和平衡。
指数增长模型
在理想条件下,种群会表现出指数增长模式。这种增长的特点是:增长率恒定,但绝对增长量随时间加速增大。
水葫芦在中国的传播就是指数增长的典型例子。1901年作为观赏植物引入中国,最初几十年增长缓慢,但1980年代以后开始爆发式增长,现在已成为中国水域的主要入侵物种之一。
凤眼莲在适宜水体中可以快速无性繁殖,但全国扩散历史不能由三个固定阶段代表。局地种群常受到温度、养分、水流和治理影响,可能增长、崩落或再次暴发。指数模型适合描述资源限制尚不明显的短期片段,不能自动推出长期趋稳。
内在增长率的生物学意义
内在增长率(r)反映了种群在理想条件下、没有资源限制时的最大增长能力,它是衡量物种繁殖与扩散速度的重要参数。r值越高,代表该物种在适宜环境下的种群数量上升得越快。
不同物种的r值相差悬殊,这种差异主要与它们的体型、寿命、繁殖周期等生活史特征有关。一般来说,体型小、生命周期短、达到性成熟快且繁殖频率高的物种,往往具有更高的r值,例如一些杂草、昆虫等;而大型、寿命长、繁殖速度慢的物种,比如大象和鲸鱼,r值则较低,增长速度也相对缓慢。

上方显示了r值与生物特征的关系:体型小、成熟早、繁殖频率高的物种具有较高的r值,而大型的长寿物种r值较低。
环境阻力与种群调节
在自然条件下,种群的增长总会受到多方面的限制。以大熊猫为例,随着数量增加,受到栖息地面积、食物资源、个体间关系等因素的影响,增长速度逐渐减缓。最终,种群数量会稳定在一个由环境承载力决定的最大值附近,而不会无限制上升。
环境容纳量 是逻辑斯蒂模型中的参数,表示给定条件下长期平均资源与密度制约的综合效果。它会随季节、栖息地质量、种间关系和管理措施变化,并不是自然界固定不变的最大数量。当种群逐渐接近这一上限时,常见的现象有:繁殖率降低、死亡率升高、种群成员发生迁移等。这种情况在很多受保护物种的管理中都值得关注。
种群波动与稳定性
即便接近环境极限,种群数量也不会一直保持静止,而是随着自然与外界条件起伏。例如,气候异常、食物短缺、疾病流行或人为干预等,都会引起数量的波动。
最近几十年,藏羚羊经历了数量快速下降、恢复增长到逐步趋于稳定的过程,这背后既有气候变化和天敌变化,也有保护措施的综合影响。种群波动大小取决于生活史、密度制约、气候噪声和食物网反馈。健康生态系统中的某些种群也会周期性大幅波动,而受扰系统有时表现为低而平的数量;评估稳定性应明确观察对象、时间尺度和参考状态。
掌握这些变化规律,有助于科学预测种群前景、优化物种保护和生态管理措施。在实际保护工作中,需要综合考量物种本身特性、环境周边条件及人为影响等各种因素。
衰老与死亡的进化意义
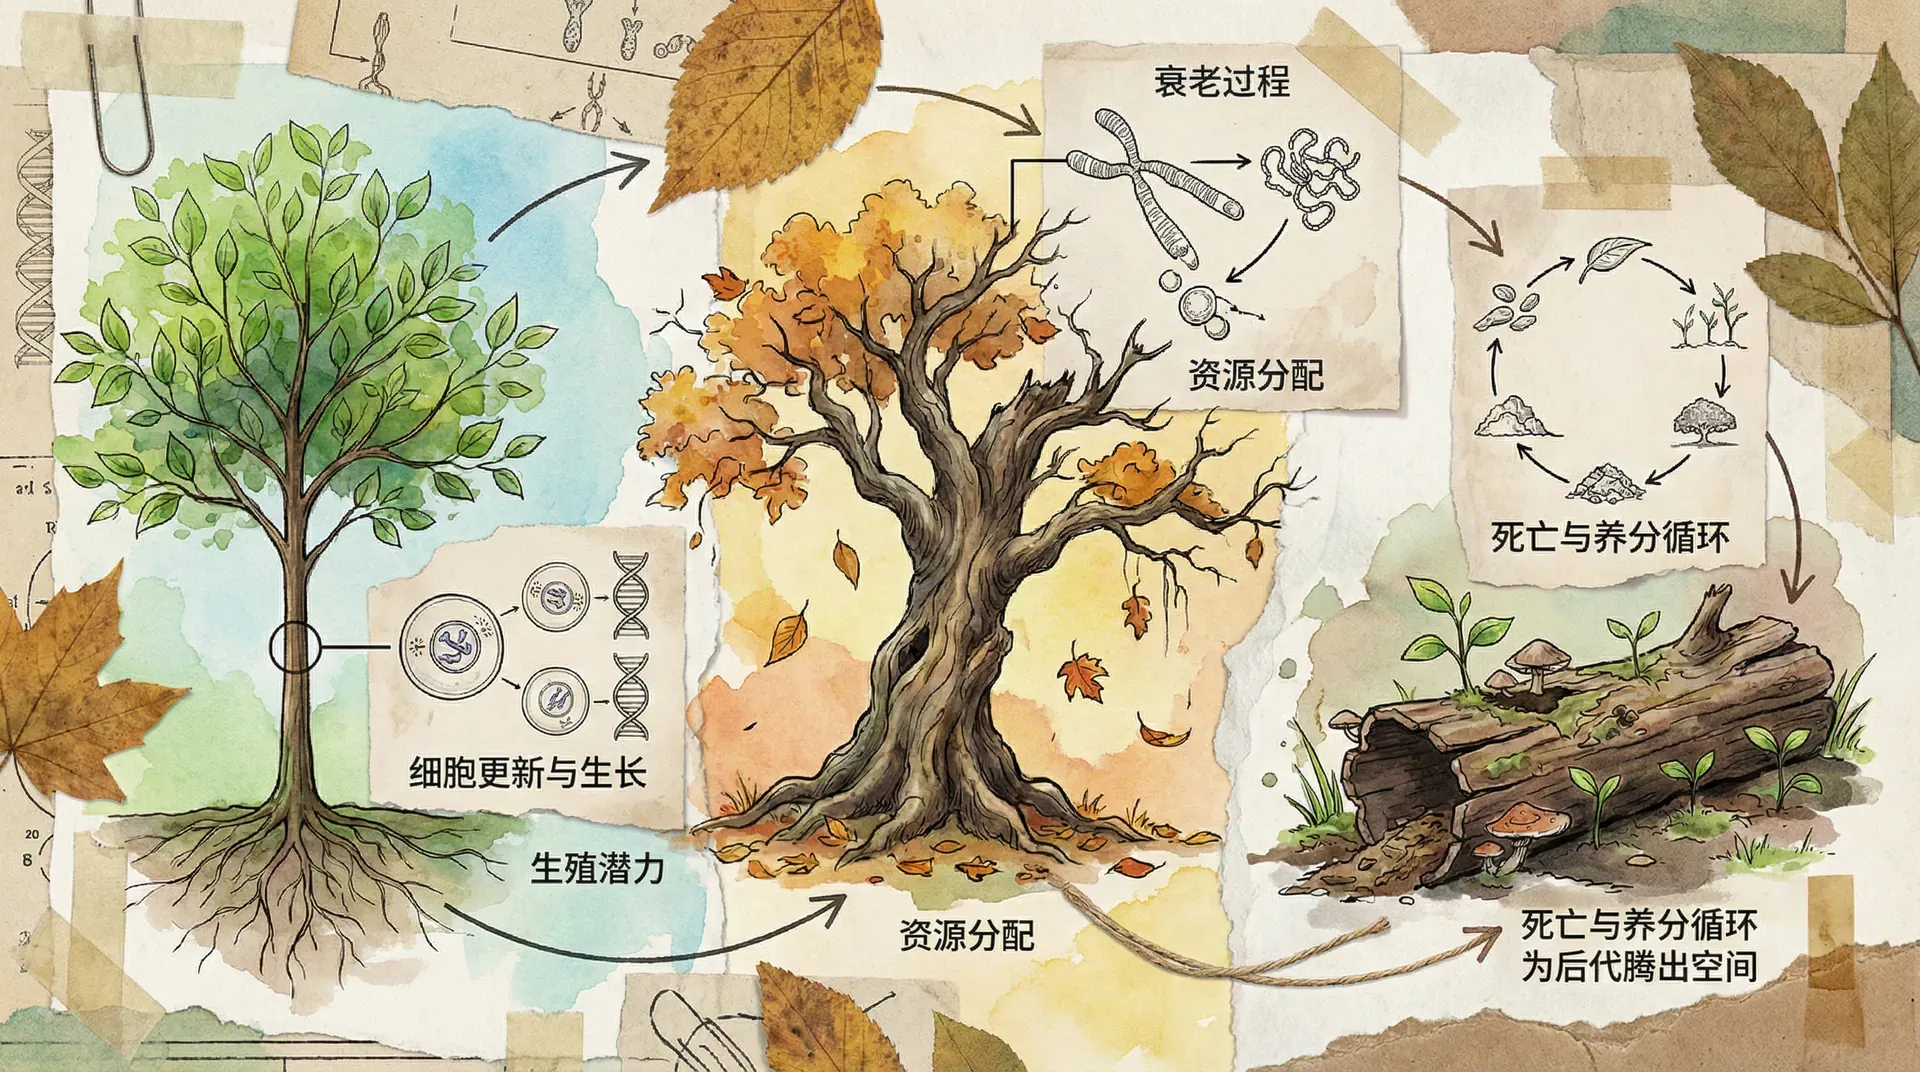
衰老是生物界的普遍现象,但为什么生物会衰老?从进化的角度看,衰老似乎是不利的,因为它降低了个体的生存和繁殖能力。衰老在许多生物中常见,但“常见”并不意味着它是自然选择主动保留的有益功能。进化理论主要解释为什么晚年损伤未被选择充分清除,以及资源分配如何在生长、繁殖、维护和修复之间形成权衡。
衰老的进化理论
衰老的进化解释包括突变积累、拮抗性多效和一次性体细胞等理论。它们共同强调:当外因死亡使较少个体活到高龄时,自然选择对晚发有害效应较弱;某些提高早期繁殖的变异即使带来晚年代价,也可能扩散。不同机制可以同时作用。
黄山迎客松已有800多年历史,虽然现在仍然存活,但其生长势已明显衰弱,针叶稀疏,树冠不完整。从进化的角度看,这种衰老现象并非偶然。
在迎客松的前200年,它处于快速生长期,具有很高的繁殖潜力。自然选择强烈地筛选掉那些影响早期生长和繁殖的有害突变。但到了后期,即使出现影响老年健康的突变,由于此时的繁殖贡献已经很小,这些突变受到的选择压力也很弱,因此得以在种群中积累。
衰老不是进化的目标。年龄别选择强度下降是核心解释之一,但具体衰老速度还受遗传、资源分配、损伤修复和环境死亡风险影响,不能用单一机制概括所有物种。这一认识对理解长寿物种的保护策略具有重要意义。
中国古树群落的衰老模式
中国拥有丰富的古树资源,这些古树为研究植物衰老提供了珍贵材料。不同物种的古树展现出不同的衰老模式和适应策略。
银杏谱系保存了许多古老形态特征,现存个体中也有长寿古树。老树仍能形成新组织和生殖结构,说明植物的模块化生长可以让不同枝条和组织经历不同年龄;但树龄鉴定、局部组织更新与整个个体的衰老不能混为一谈,也不能仅凭开花就锁定某种抗衰老机制。
相比之下,胡杨虽然也是长寿树种,但其衰老模式与银杏不同。塔里木河流域的千年胡杨林显示,胡杨通过不断萌发新枝来延续生命,老枝死亡而新枝继续生长,形成了特殊的“更新式衰老”模式。
动物的衰老与寿命进化
动物的衰老模式比植物更加复杂多样。在中国的野生动物中,不同物种的寿命和衰老特征差异巨大,这些差异反映了不同的进化策略。
大型猫科动物在野外会受到食物、疾病、伤害和人类活动等多种风险,圈养条件则改变了医疗、营养和竞争环境。牙齿磨损、肌肉状态与捕猎能力可能随年龄变化,但需要纵向数据才能区分衰老、旧伤和个体差异;少数个体的最长寿命也不等于种群平均寿命。
大熊猫的野外与圈养寿命资料同样受到监测完整度、医疗条件和个体差异影响。活动、牙齿与消化状况会随年龄改变,但不能由“生活方式简单”或单一代谢指标推断衰老速度。可靠比较需要年龄别死亡率、健康指标和相近体型物种的数据。
这个对比显示了环境条件对动物衰老和寿命的重要影响。圈养条件下,消除了天敌威胁、食物短缺等生存压力,动物的寿命可以显著延长。
衰老速度的种间差异
不同物种的衰老速度差异巨大,这些差异与其生活史策略密切相关。一般而言,体型大、代谢率低、繁殖开始晚的物种寿命更长,衰老速度更慢。
在中国的哺乳动物中,这种模式表现得很明显:
跨物种比较常见体型与寿命的相关趋势,但飞行能力、捕食风险、生活史和系统发育历史都会改变关系。质量特异性代谢率只是候选机制之一,不能直接推出细胞分裂或DNA损伤速度,也不能用一张混合类群的表预测某个物种寿命。
环境压力与衰老适应
环境压力会影响损伤、修复、繁殖投入和死亡风险,但适应严酷环境不等于普遍获得更长寿命。某种抗逆机制是否同时减缓衰老,需要在控制体型、系统发育和生活史后检验。
- 藏羚羊具有适应高海拔低氧、寒冷和强紫外线环境的生理与遗传特征,但这些特征是否延缓衰老,需要直接测量年龄别死亡率和细胞损伤指标,不能由生境反推寿命机制。
- 胡杨通过深根、耐盐旱和萌蘖更新在干旱河岸生存。克隆根系延续、树干年龄和整个遗传个体的年龄并非同一概念,因此古老林分不能直接证明单株通过某种修复机制“不易衰老”。
极端环境适应可能涉及抗氧化、蛋白稳态和DNA修复,但适应胁迫不等于减缓整体衰老。只有比较近缘物种、控制体型和生活史并测量年龄别死亡率,才能判断某种机制是否与长寿有关。
衰老与种群保护
理解衰老的进化机制对野生动物保护具有重要意义。在制定保护策略时,需要考虑不同年龄个体对种群贡献的差异。
对于大熊猫这样的长寿物种,老龄个体虽然繁殖能力下降,但它们的生存经验对种群仍有价值。老龄雌性大熊猫往往是优质栖息地的占据者,它们的行为模式会影响年轻个体的栖息地选择和生存策略。年龄结构会影响种群增长,但保护行动不能只按当前繁殖率给个体排序。老龄个体可能提供社会经验,年轻个体决定未来补充,繁殖期个体影响近期增长;实际决策还要考虑威胁来源、遗传代表性、福利与可操作性。
基于衰老生物学的保护策略需要平衡不同年龄个体的生态价值和繁殖贡献,这种精细化的保护理念正逐渐被应用于珍稀物种的保护实践中。
总结
种群生物学不仅为物种保护、资源管理和生物入侵防控等领域提供了坚实的科学理论基础和有效的分析工具,还推动了相关实际工作的不断优化。例如,中国朱鹮的濒危物种保护与恢复,就是在深入研究种群动态、遗传多样性及其栖息地微环境变化的基础上,通过精细化管理和科学干预,最终实现了朱鹮种群从边缘灭绝到健康增长的典型转变。
在资源管理方面,野生动物种群的数量监测、年龄结构分析及繁殖率评估等工作,为可持续利用和合理开发提供了重要决策依据。对入侵物种而言,通过构建其扩散模型和评估种群参数,可以制订出更具针对性的防控和治理策略。随着大数据、遥感、分子生物学等交叉学科方法的不断应用和创新,种群生物学将在未来的生态文明建设、环境管理及全球生物多样性保护中展现出更为广阔的应用前景和影响力。