系统发育学
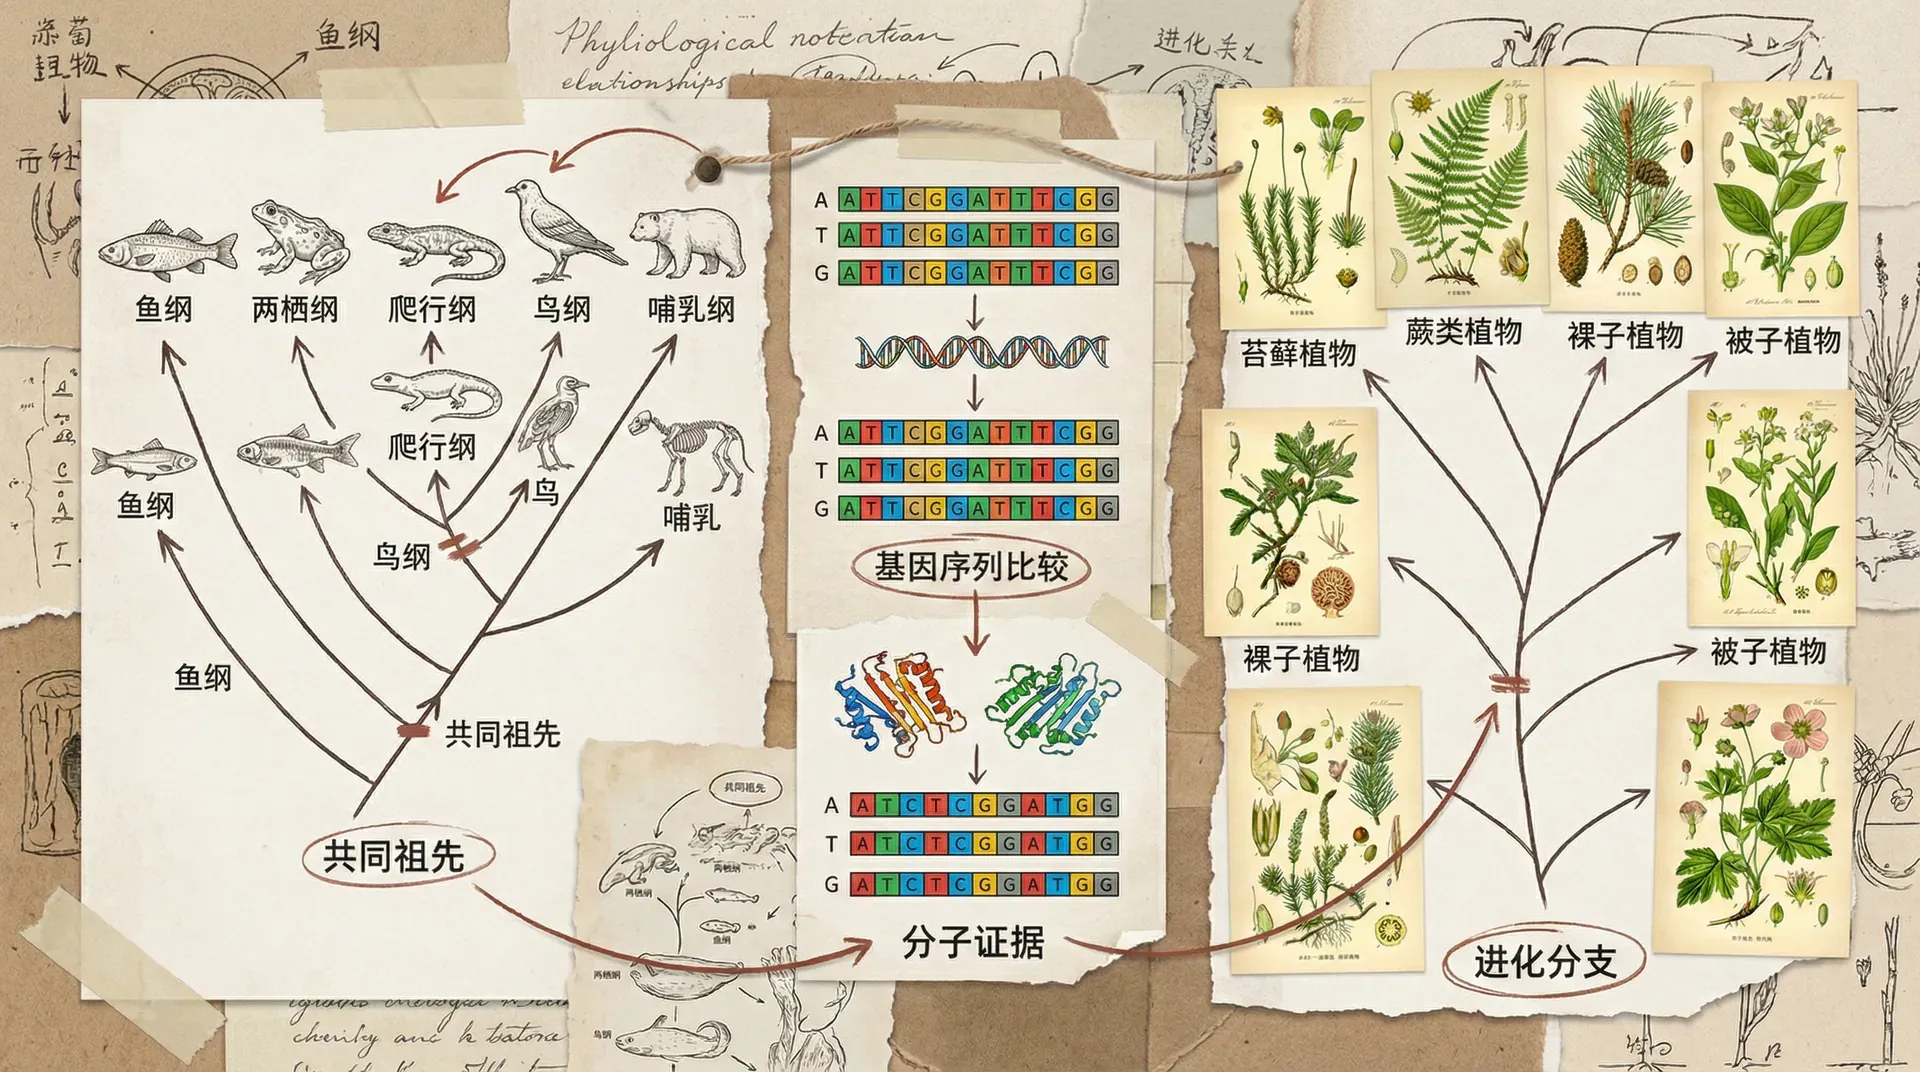
如果我们要研究你的家族历史,我们会查看家谱,梳理祖父母、曾祖父母的身份,以及你和堂兄弟姐妹的亲缘关系。在生物学中,科学家们也在进行着类似的工作,不过我们研究的不仅仅是人类的家族,而是自然界中各种不同生物之间的“亲戚关系”。这个庞大的研究领域,就是“系统发育学”。它的核心目标,是重建谱系之间的亲缘关系和分化模式,帮助我们搞清楚今天生物多样性的由来。
什么是系统发育树
系统发育树(Phylogenetic Tree)可以看作是自然界的“家谱树”或“族谱”。它用树状结构展示不同生物是如何从一个共同祖先逐步分化出来的。节点表示谱系的共同祖先假说,分枝表示祖先与后代之间的谱系延续,末端可以是现生物种、化石类群或取样序列。末端的左右顺序可以旋转,不能当作从低级到高级的进步顺序。通过解读系统发育树,我们能够了解物种的亲缘远近,在明确模型和证据条件下重建共同祖先的部分性状,还可以追溯它们各自演化出独特特征的过程。
系统发育学不仅仅是翻译或整理已有的国外文献,更是一项需要深入考察和推理、融汇多学科证据的科学探索。生物学家就像侦探一样,通过观察现存物种的形态结构、分子数据,甚至生活习性,综合分析,逐步拼凑出“演化历史的拼图”。
科学家在构建系统发育树时,特别重视“共有衍生特征”(synapomorphy),这些特征是判定谱系关系的重要依据。主要内容可以总结为:
共有衍生特征(synapomorphy):
- 指在某一演化分支上新出现,且由该分支多个成员共同继承的特征;
- 这些特征为进一步分析亲缘关系提供了线索;
- 近亲或祖先中不具备这些新特征。
自衍征与共有衍生特征的区别:
- 末端类群独有的特征,称为自衍征(autapomorphy),可用于识别该类群,但不能用来连接多个类群;
- 例如,大熊猫的“伪拇指”源自桡侧籽骨的特化;而小熊猫也独立演化出类似结构,是研究趋同演化的案例。
分子系统学的发展:
- 借助DNA与蛋白质序列数据,科学家能够更精确地分析生物间的亲缘关系;
- 分子证据有助于校准和完善系统发育树,提高判断的科学性和权威性。
地理如何塑造生物演化
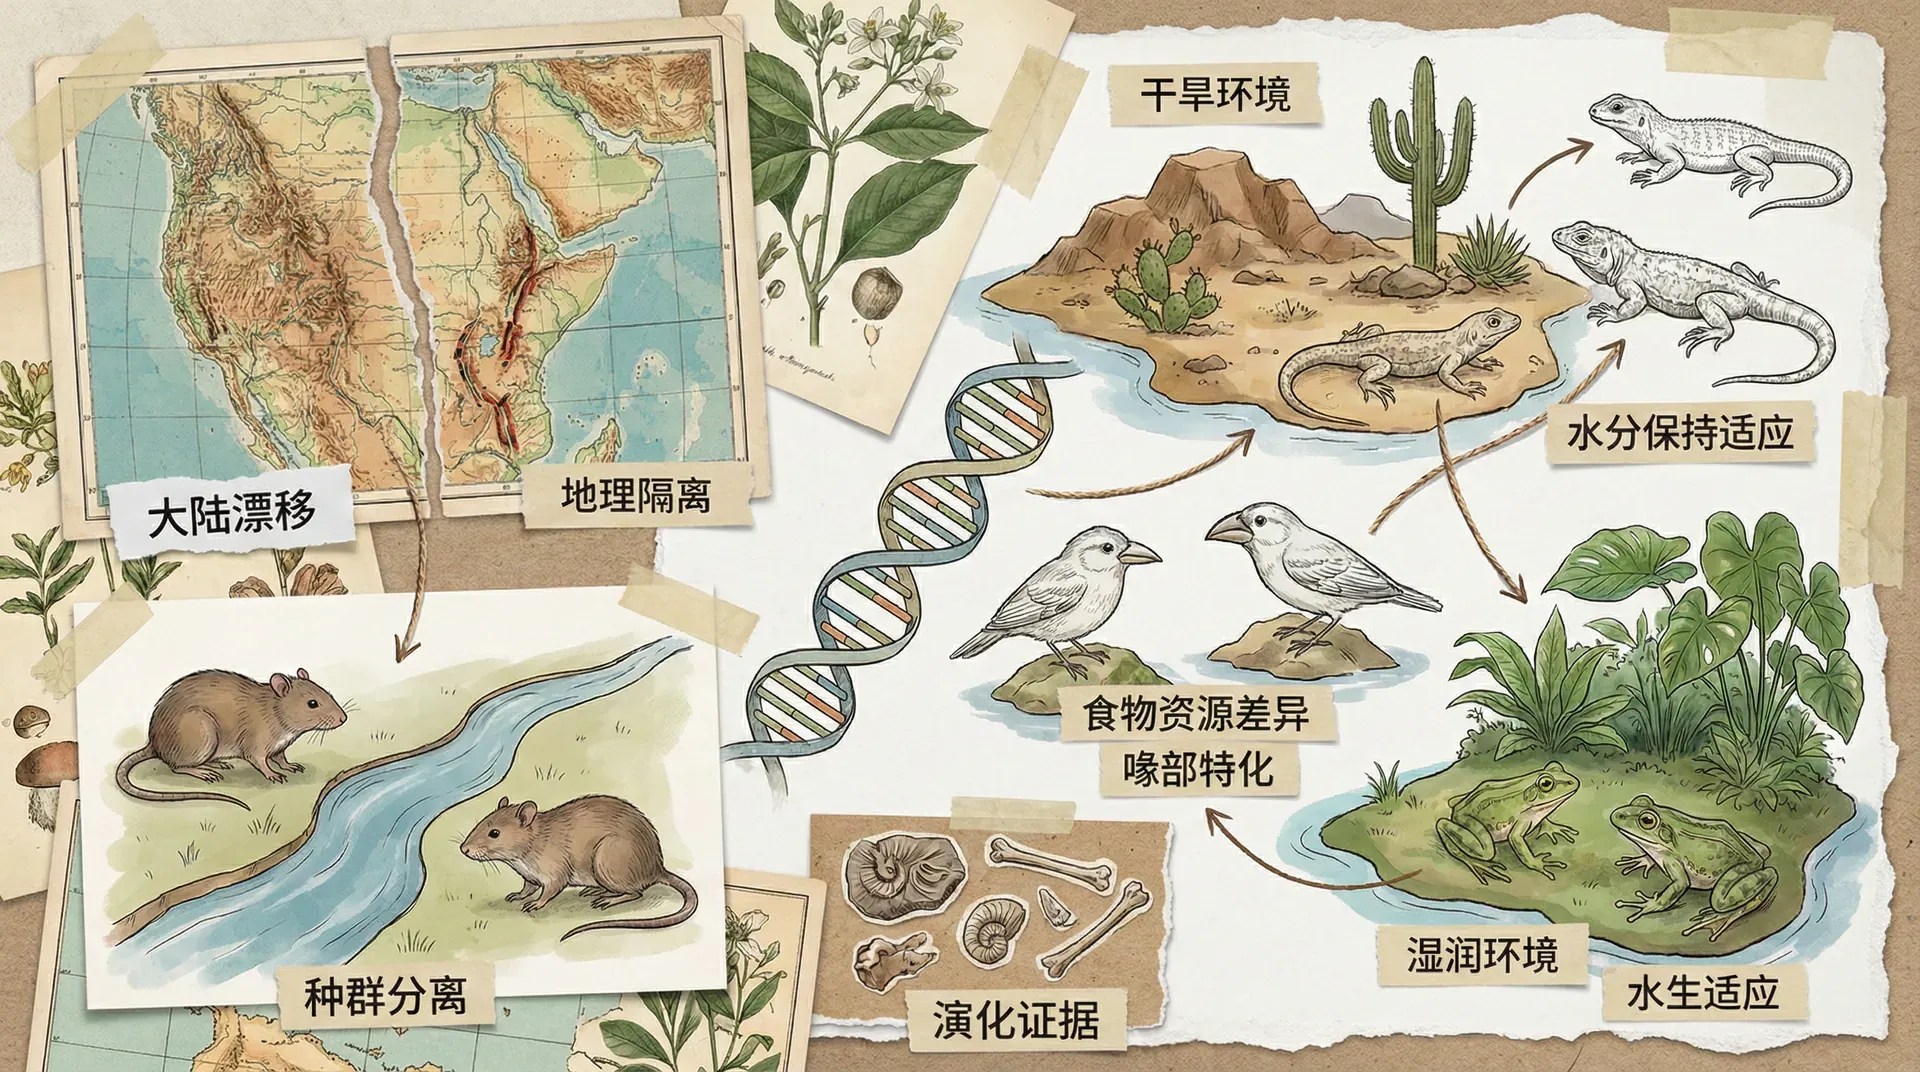
大陆移动、山脉隆升、河流改道和冰期变化会改变栖息地与种群之间的连通性,有时减少基因流,有时也打开新的扩散通道。地理隔离能为谱系分化创造条件,却不会自动产生新物种;突变、漂变、选择和生殖隔离需要在足够时间内积累。系统发育研究把这些地质假说与分化时间、现生分布和化石记录进行比较。
印度板块与欧亚板块的碰撞及青藏高原隆升是一个漫长且分阶段的过程,不同地区、不同山系隆升的时间也不尽相同。这些地质变化带来了以下影响:
形成屏障、廊道和新的气候梯度,改变种群的连通性,使动植物在高原与平原两个生态系统中各自生存。
高原环境具有多重挑战:
- 空气稀薄
- 气温低
- 紫外线增强
- 氧含量减少
种群可能的响应方式包括:
- 迁移到更适宜的地区
- 通过表型可塑性来适应新环境
- 通过遗传适应获得生存优势
- 分布范围缩小甚至消失
形成新物种的过程还需要:
- 基因流受限
- 生殖隔离的逐步积累
- 仅仅高原环境的变化并不能直接导致物种形成
青藏高原隆起催生了许多中国西部特有的“演化明星”,如:
- 旱獭
- 高原鼠兔
- 雪莲
地理隔离仿佛为生物演化按下了“分支”按钮——原本同宗同源的种群,在天堑的两端开启了各自迥异的进化历程。正是这种分分合合、不断分化与适应的演化机制,让生物界变得五彩斑斓。
我们不妨来看一个数据化的例证:青藏高原地区植物多样性随海拔变化的规律

图中的示例数据在约3000米出现峰值,但山地多样性格局会随山系、坡向、面积、取样范围和类群变化。这一带气候温和,水源充足,适合各类植物生长。随着海拔进一步升高,气候变冷、空气中氧气含量显著下降,紫外线更为强烈,这些高原环境因素使得能够生存的物种大大减少。
由此形成的梯度分布,正是地理和环境因素对生物多样性“筛选”作用的生动写照。此外,这种山地生物多样性的“中高峰、两头低”的趋势,在许多大陆高原和山系中都有广泛的体现,展现了自然界在分化、隔离和适应中的复杂性与多样性。
从现在推测过去
我们无法回到几百万年前,亲眼见证生物祖先的模样与演化过程,但这并不妨碍我们通过研究现存物种,推断它们祖先可能拥有的特征。这就像通过对多个表兄弟姐妹的外貌比对,可以反推出他们共同祖父母的形象轮廓一样。科学家们把这种方法称为“比较法”或“系统发育推断”,是演化生物学中非常核心的研究思路。
中国分布的金丝猴属包括川金丝猴、滇金丝猴、黔金丝猴等不同物种,它们生活在不同海拔、纬度和植被类型的山地森林中。体型、毛色与食性差异既可能与环境有关,也保留了各自谱系的历史;比较这些物种时,应把性别、年龄、测量方法和共同祖先纳入分析。
贝格曼规律与阿伦规律可以提出有关体型、附肢比例和温度的统计预测,但它们不是每个物种都必须遵守的定律。三个物种的一组代表值不足以排除食物、运动方式、性别差异和共同祖先;需要更多种群和个体数据,并用系统发育比较方法检验环境关联。
研究者会结合DNA序列、化石校准、现生分布和古环境资料,估计金丝猴各谱系的分化关系与时间。祖先分布和祖先性状属于带不确定性的模型推断,需要比较不同模型与置信区间;仅凭现生物种的平均体重或毛色,无法确定祖先生活地点和具体外形。
下方观察金丝猴体型与纬度之间的数据关系:
图中的三点比较适合练习提出假设,不能单独支持“纬度升高导致体重增加”的结论。纬度不等于温度,物种均值也会受性别、年龄、样本地点和测量口径影响;三个物种又不是相互独立的重复。更可靠的研究会增加种群和个体样本,加入气温、食物等直接变量,并用系统发育方法控制共同祖先。祖先性状仍需在系统树上用明确模型估计,而不是从现生物种外形直接倒推。
形态背后的生态故事
生物形态记录了遗传、发育、自然选择、漂变和谱系历史的共同结果。某种结构可能影响运动、取食或繁殖,但观察到结构与环境相配并不能自动证明适应;还要提出可检验的功能预测,并与替代解释比较。生态位也不是预先安排的“职位”,而是物种在一定环境和相互作用下实际利用资源与条件的方式。
雉类鸟的腿长和生态适应
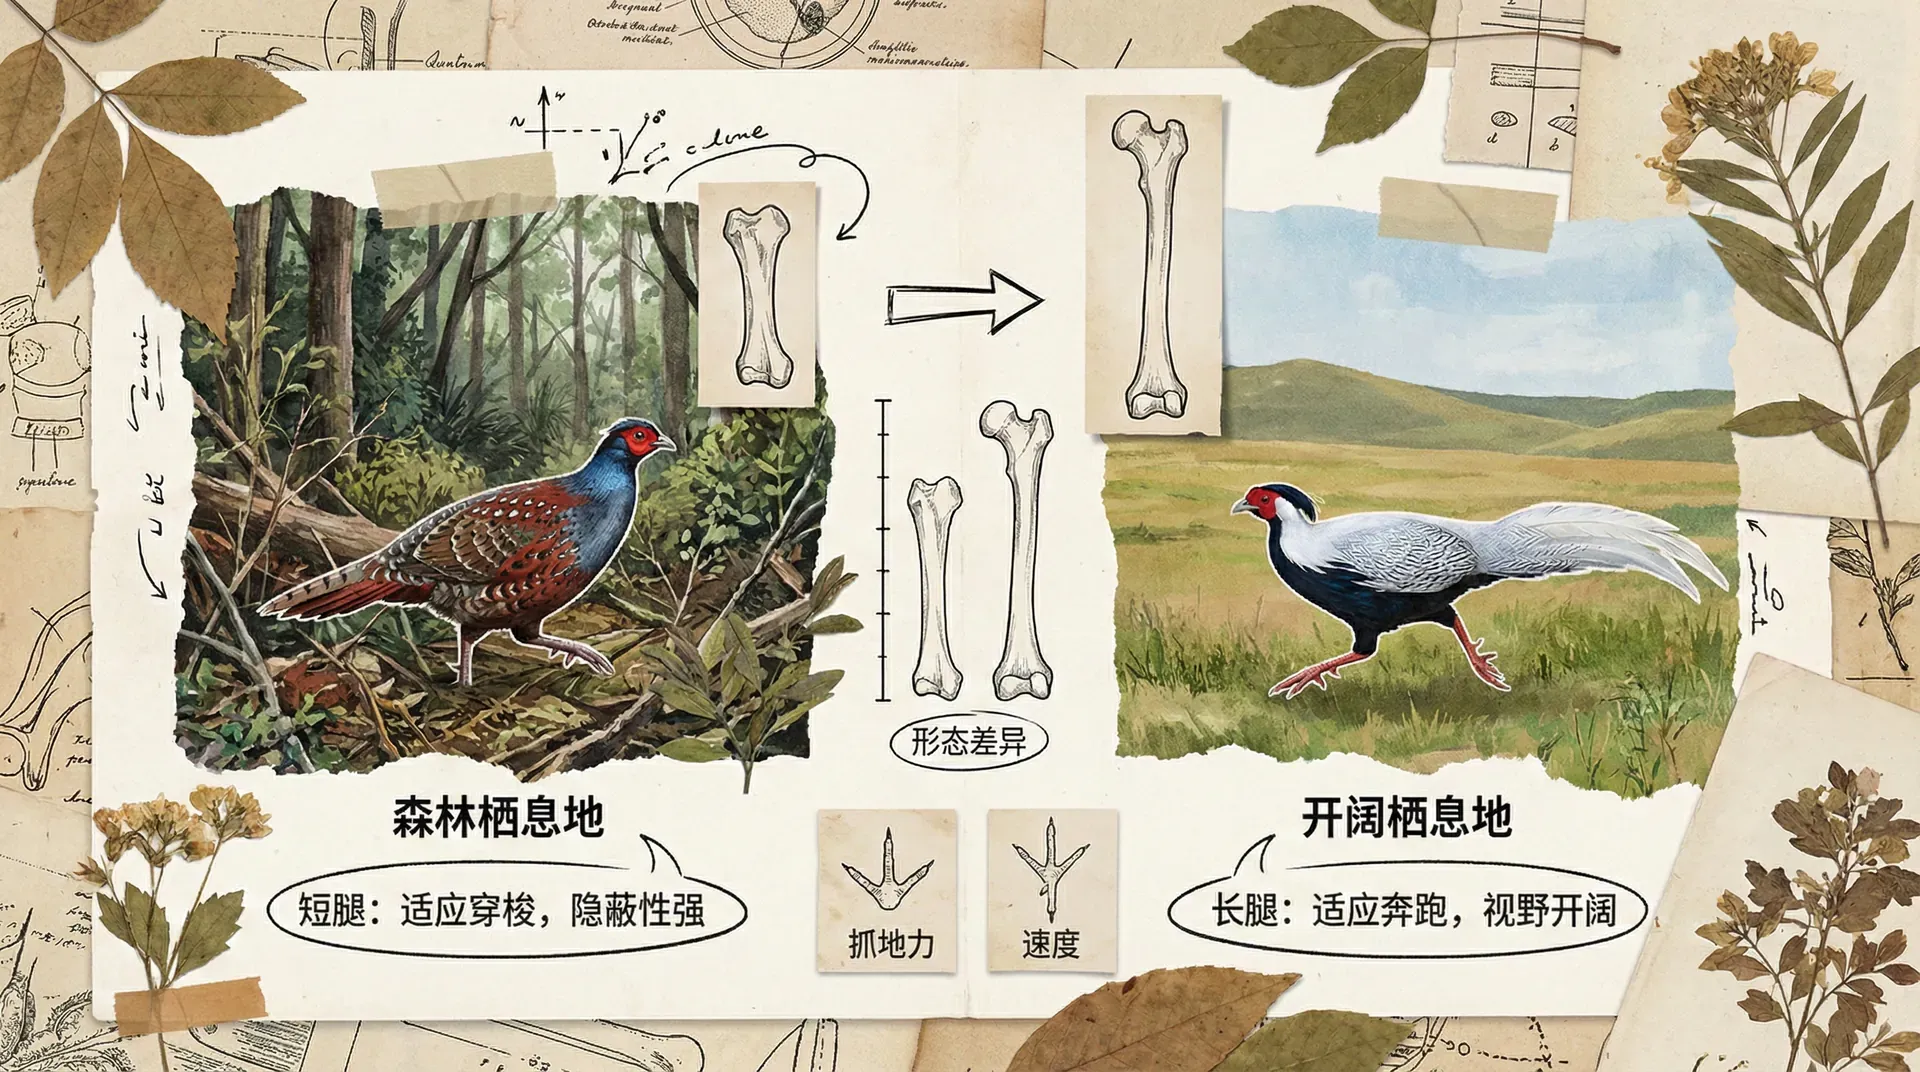
中国山地森林中的雉类在栖息地、活动方式和形态上存在差异,但红腹锦鸡、血雉、白鹇等都可能利用林下、林缘或灌丛等多种微生境,不能简单分成“草地长腿”和“密林短腿”两类。研究腿长与生境的关系,需要以体型校正后的相对腿长为指标,并在多个近缘物种和多个地点重复测量。
下方汇总雉类鸟栖息地与腿型差异:
形态特征有助于识别物种并提出生态假设,但相似形态可能来自共同祖先或趋同演化,单一特征不能直接确定生活环境。
为了更直观地了解环境与形态的关系,我们来看一组数据:

可以看到,图中的腿长与开阔度数据用于展示比较思路,不应视为这些雉类的实测排名。判断腿长是否适应某类生境,需要标准化体型、在多个近缘物种中重复比较,并用系统发育方法控制共同祖先的影响。
更多“外形—生态”案例
实际上,“腿长—生活环境”只是众多形态-功能关系的一例。我们还可以举出如下有趣的实例:
此外,鸟类的翅型和飞羽结构同样与飞行方式紧密相关。例如:栖息林间的松鸦、画眉,拥有较圆短的翅膀,便于在林间穿梭急转;而如金雕、鹗则拥有长而狭的翅膀,适合滑翔、长距离飞行。
形态与生态之间常有统计关联,但很少是一一对应关系。相似结构可能服务不同功能,不同结构也可能实现相似功能;这种比较仍可帮助提出关于现生物种多样化的假设,还极具科学意义——古生物学家在发掘化石时,常通过骨骼比例等形态特征,推断古动物的生态环境、活动方式,甚至可能的取食行为。例如,恐龙肢骨比例可约束运动能力的估计,牙齿磨损和形态可提供食性线索;可靠推断还需结合肌肉附着、足迹、有限元模型和沉积环境等证据。
随着科技进步,现代研究还会将生态学、气候学和分子生物学等多领域数据整合在一起,比如收集几十种鸟类的腿长、翅膀类型、纬度分布、食物来源等,利用统计学和系统发育树等工具,揭示隐藏于表型背后的演化规律。这些例子让我们看到,动物外形背后不仅有生活环境的烙印,更蕴藏着物种演化的壮美故事。
总结
系统发育学为我们提供了一种全新的视角来理解生命世界。通过构建系统发育树,我们能够追溯物种的演化历程;通过研究地理隔离事件,我们能够理解生物多样性的形成机制;通过比较分析,我们能够从现存物种推测祖先的特征;通过形态生态学,我们能够解读生物形态背后的生态意义。
这些方法相互结合,让我们能够像阅读一本书一样,逐渐读懂地球生命演化的历史。虽然很多物种已经灭绝,但它们留下的痕迹——无论是化石、DNA序列,还是现存近缘种的特征——都在向我们诉说着那些逝去的故事。