生物之间的相处之道
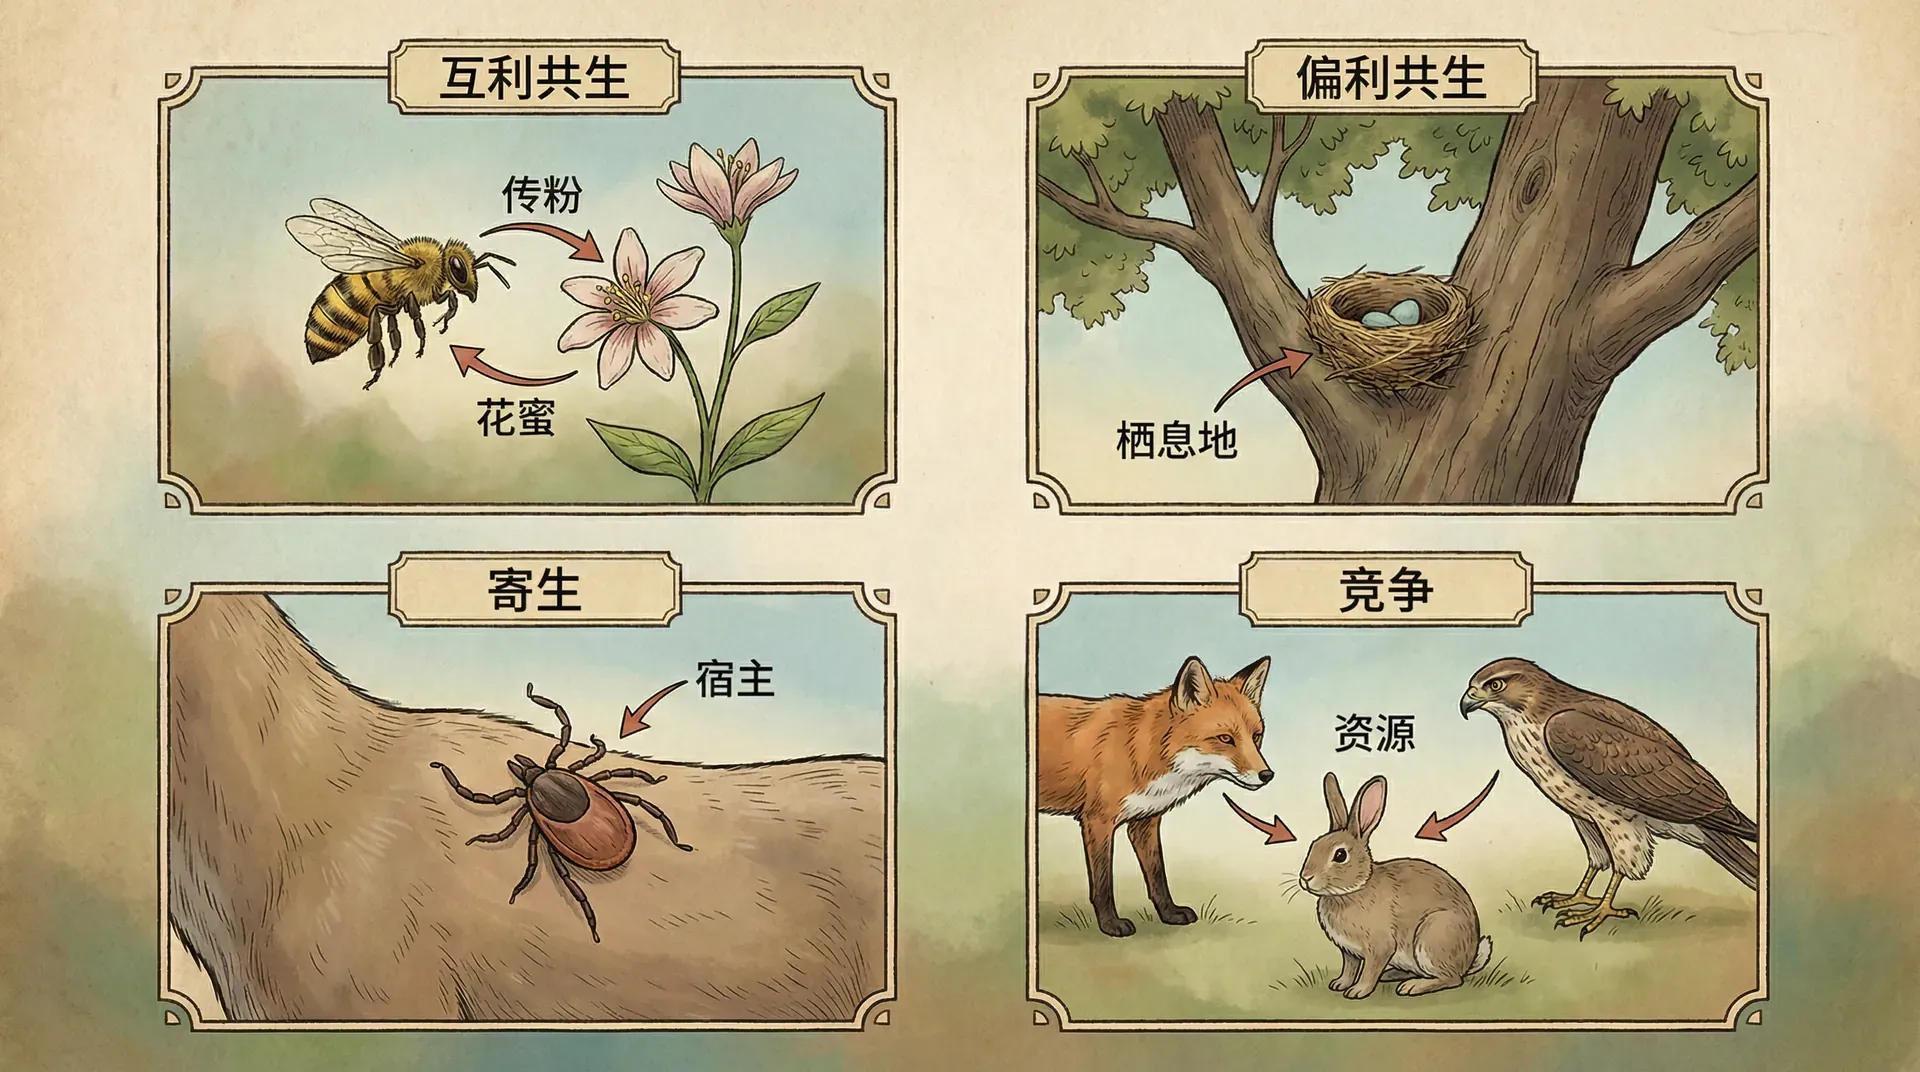
在长江流域的稻田里,你会发现水稻根部长有小瘤状突起,里面住着能将空气中氮气转化为水稻可用氮肥的根瘤菌。水稻为根瘤菌提供有机物和庇护,根瘤菌帮助水稻获取养分,双方互利共生。这种关系在豆科植物、树根与真菌等之间也广泛存在,是生态系统的重要基础。
当然,稻田中还有很多其他关系:害虫啃食水稻叶片,杂草和水稻争阳光和养分,水中线虫寄生其他生物,青蛙捕食害虫又被蛇猎食,还有各种微生物既有竞争也有合作。在同一片稻田里,生物们有时合作共赢,有时你争我夺,也有寄生谋利,关系错综复杂。
这些关系不仅限于稻田,在森林、草原、湖泊甚至家中一花一草之间都能见到。生物间合作、竞争、寄生、掠食等多种模式,共同构成了多样且动态变化的生态系统,这正是我们这里要探讨的主题。
生物之间有哪些相处模式
在一个热闹的菜市场,不同的人有不同的关系:有的是买卖双方,互惠互利;有的是竞争对手,争夺同样的顾客;有的是小偷和受害者,一方得利一方受损。生物世界里的关系模式,其实也是这样分类的。
我们可以用一个标准来区分这些关系:看看互动的双方,各自的生存和繁殖能力是增加了(+)、减少了(-)、还是没什么变化(0)。
在我们的日常生活中,最容易观察到的就是偏利共生关系。城市里的麻雀就是一个典型例子:它们在人类的房檐下筑巢,吃人类丢弃的食物残渣,但对人类的生活几乎没有影响。小区花园里的青苔也是如此,它们长在石头表面,获得了一个落脚的地方,但石头本身既不受益也不受害。
生物之间的关系并不是固定不变的。同一种生物在不同环境下,可能与其他物种建立完全不同的关系。比如,某些真菌在营养充足时是植物的互利伙伴,但在食物匮乏时就会变成寄生者,从植物身上掠夺养分。
寄生生活的代价
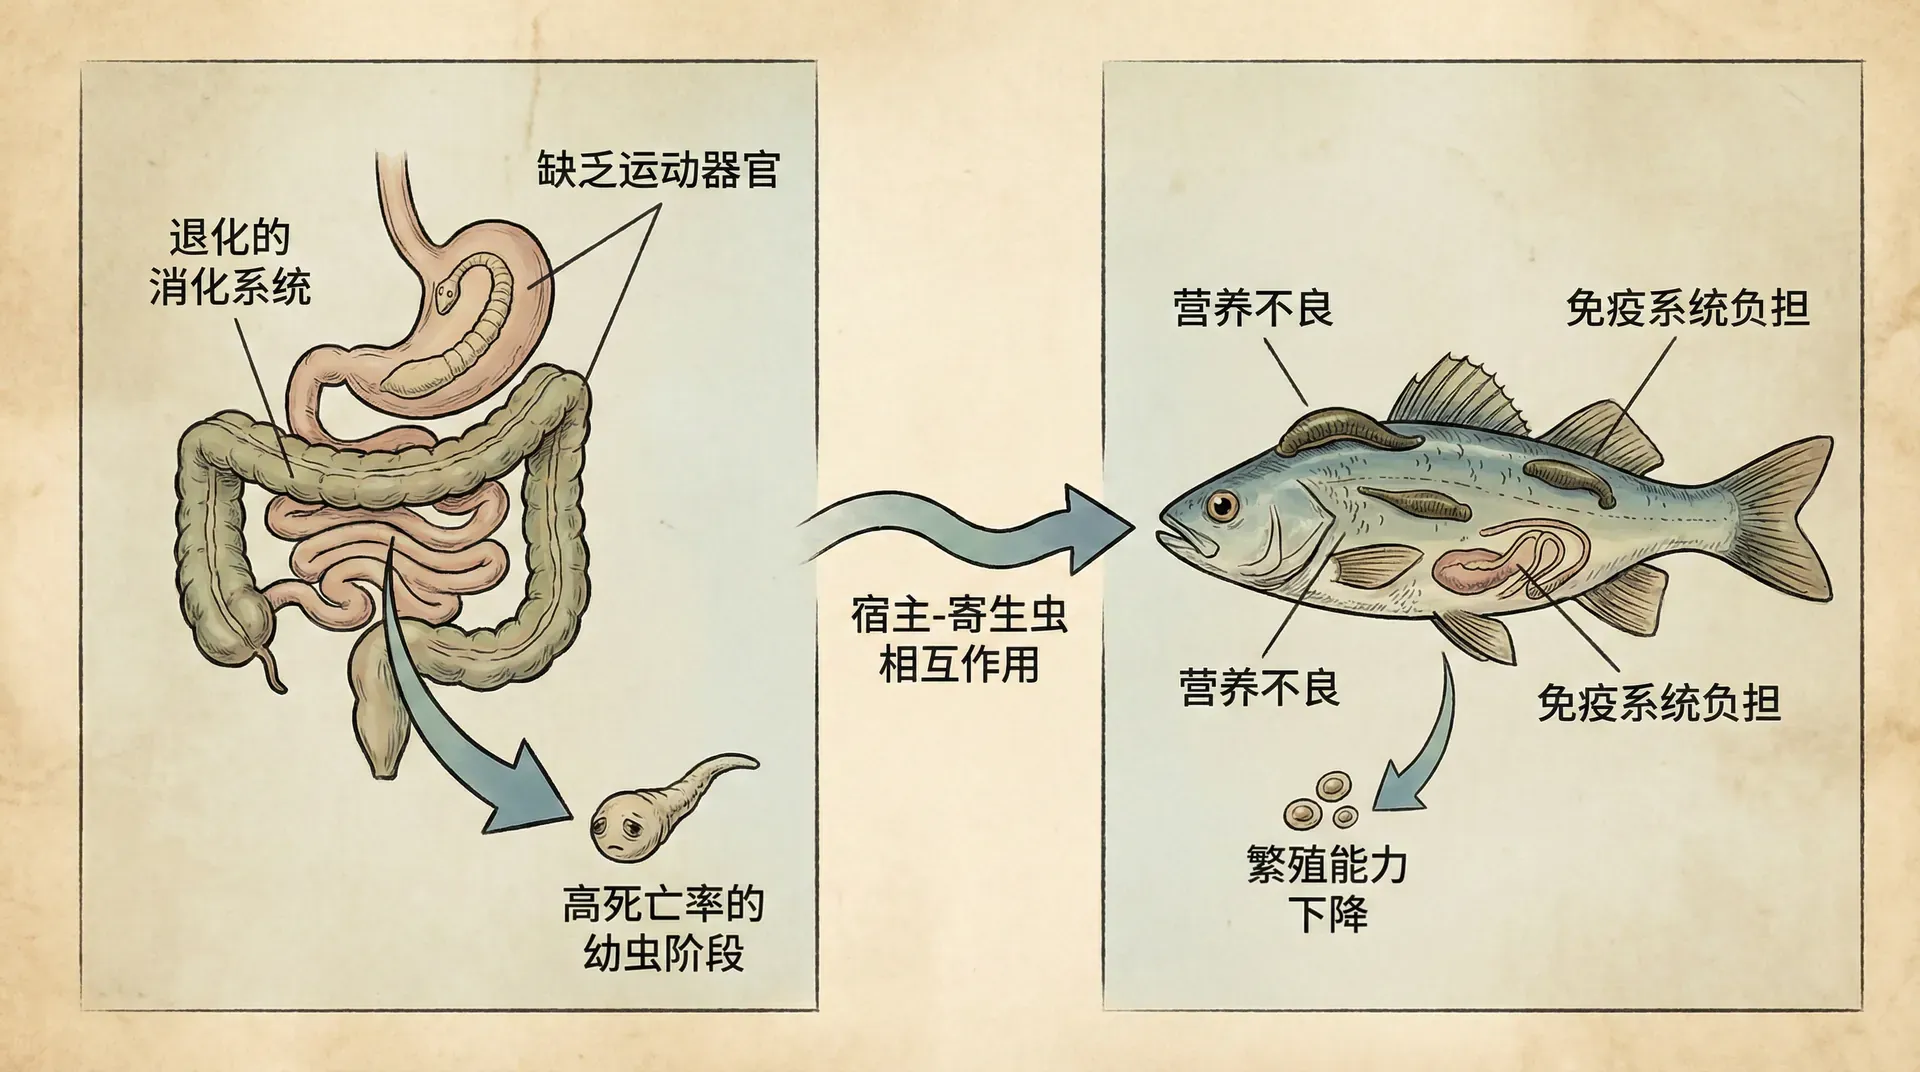
我们来聊一个让人疑惑的问题:寄生虫依靠宿主生活,为何有些寄生虫却会让宿主死亡?这样一来,寄生虫不就自断后路了吗?
长期以来,生物学家认为寄生虫应该倾向于“温和”,以便宿主活得更久,从而让自己有机会繁殖更多后代。但现实远比这一假设复杂。20世纪80年代,科学家们提出新的理论,认为寄生虫的"毒性"(即对宿主造成的损伤程度)其实是多种因素平衡的结果。简单来说,寄生虫既要提升传播效率,又要确保不至于让宿主太快死亡,失去繁殖机会。
想衡量寄生虫的成功,可以看它在宿主群体中的平均传播数——即每个感染个体平均能传染给多少健康个体。这个数字越大,寄生虫就越“成功”。而影响这个数字的关键因素有:
要点分析:
-
寄生体增殖速度
- 增殖能提高传播体数量,也可能更快损伤宿主。净收益取决于传播发生在宿主患病前还是患病后。
-
对宿主的损伤
- 毒力是可测量的宿主损伤,不等于寄生体有意选择的攻击强度;不同指标不能混成一个百分比。
-
有效传播窗口
- 宿主活动、媒介叮咬、环境存活与免疫反应共同决定传播机会。
寄生体增殖可增加传播体数量,也可能缩短宿主活动时间或感染持续期。净效果取决于传播途径、免疫反应和治疗等条件,因此毒力不必稳定在某个“中等”水平。
毒力—传播权衡可以形成三项可检验预测:
-
增殖越快是否产生更多传播体;
-
宿主损伤是否减少接触或感染时长;
-
不同传播方式是否改变两者的相对权重。
-
高毒性:传播快但时机短,宿主快速死亡或康复,机会稍纵即逝
-
低毒性:传播慢但时机长,宿主生存期长但传播范围有限
-
中等毒性:两者平衡,在特定环境下获得最大繁殖收益
毒力演化理论预测,若传播并不依赖宿主保持活动,较高增殖带来的传播收益可能抵消宿主损伤成本;若传播需要宿主移动和接触,过快致病可能降低传播。血吸虫系统还涉及钉螺中间宿主、治疗与卫生条件,不能仅凭人口密度推出毒力高低。
- 对血吸虫,应分别测量人到钉螺、钉螺到人的传播环节,以及治疗和卫生措施的影响。
- 人群密度与毒力若相关,还需排除寄生体种群结构、宿主营养和医疗条件。
传播机会较少时,降低宿主活动的变异可能承担更大成本,但具体方向仍由传播途径决定。这个逻辑是待检验的预测,不能直接当作血吸虫或流感在不同地区的已知规律。
一个身体里的“竞争赛”
寄生虫并非总是独自行动。在同一宿主体内,往往存在不同“品系”甚至不同物种的寄生虫。这时会发生什么?
假如你和几个陌生人被困在粮仓。粮食总量有限,大家可以慢慢分,但也可以疯狂争抢。若有人开始抢,其他人都不得不跟,结果大家都没捞到多少好处。这就是著名的“公地悲剧”。
多重感染对毒力的影响没有统一方向:寄生体可能争夺资源而增殖更快,也可能相互抑制,或因亲缘较近而减少竞争。需要操纵感染组成并测量传播与宿主损伤,才能判断机制。
传播方式怎样影响毒力演化
寄生虫毒性的演化,也牢牢受到“传播方式”的制约,主要有水平传播和垂直传播两大类型:
垂直传播把寄生体的传播成功与宿主繁殖联系得更紧,理论上可选择较低损伤;水平传播允许在宿主繁殖前转移,可能减弱这种约束。具体到无花果小蜂—线虫系统,应比较不同传播路径下宿主繁殖与线虫输出,不能由单个情景概括所有寄生关系。
该实验生动展现了传播方式如何影响寄生虫与宿主关系的演变方向。
合作共赢的演化
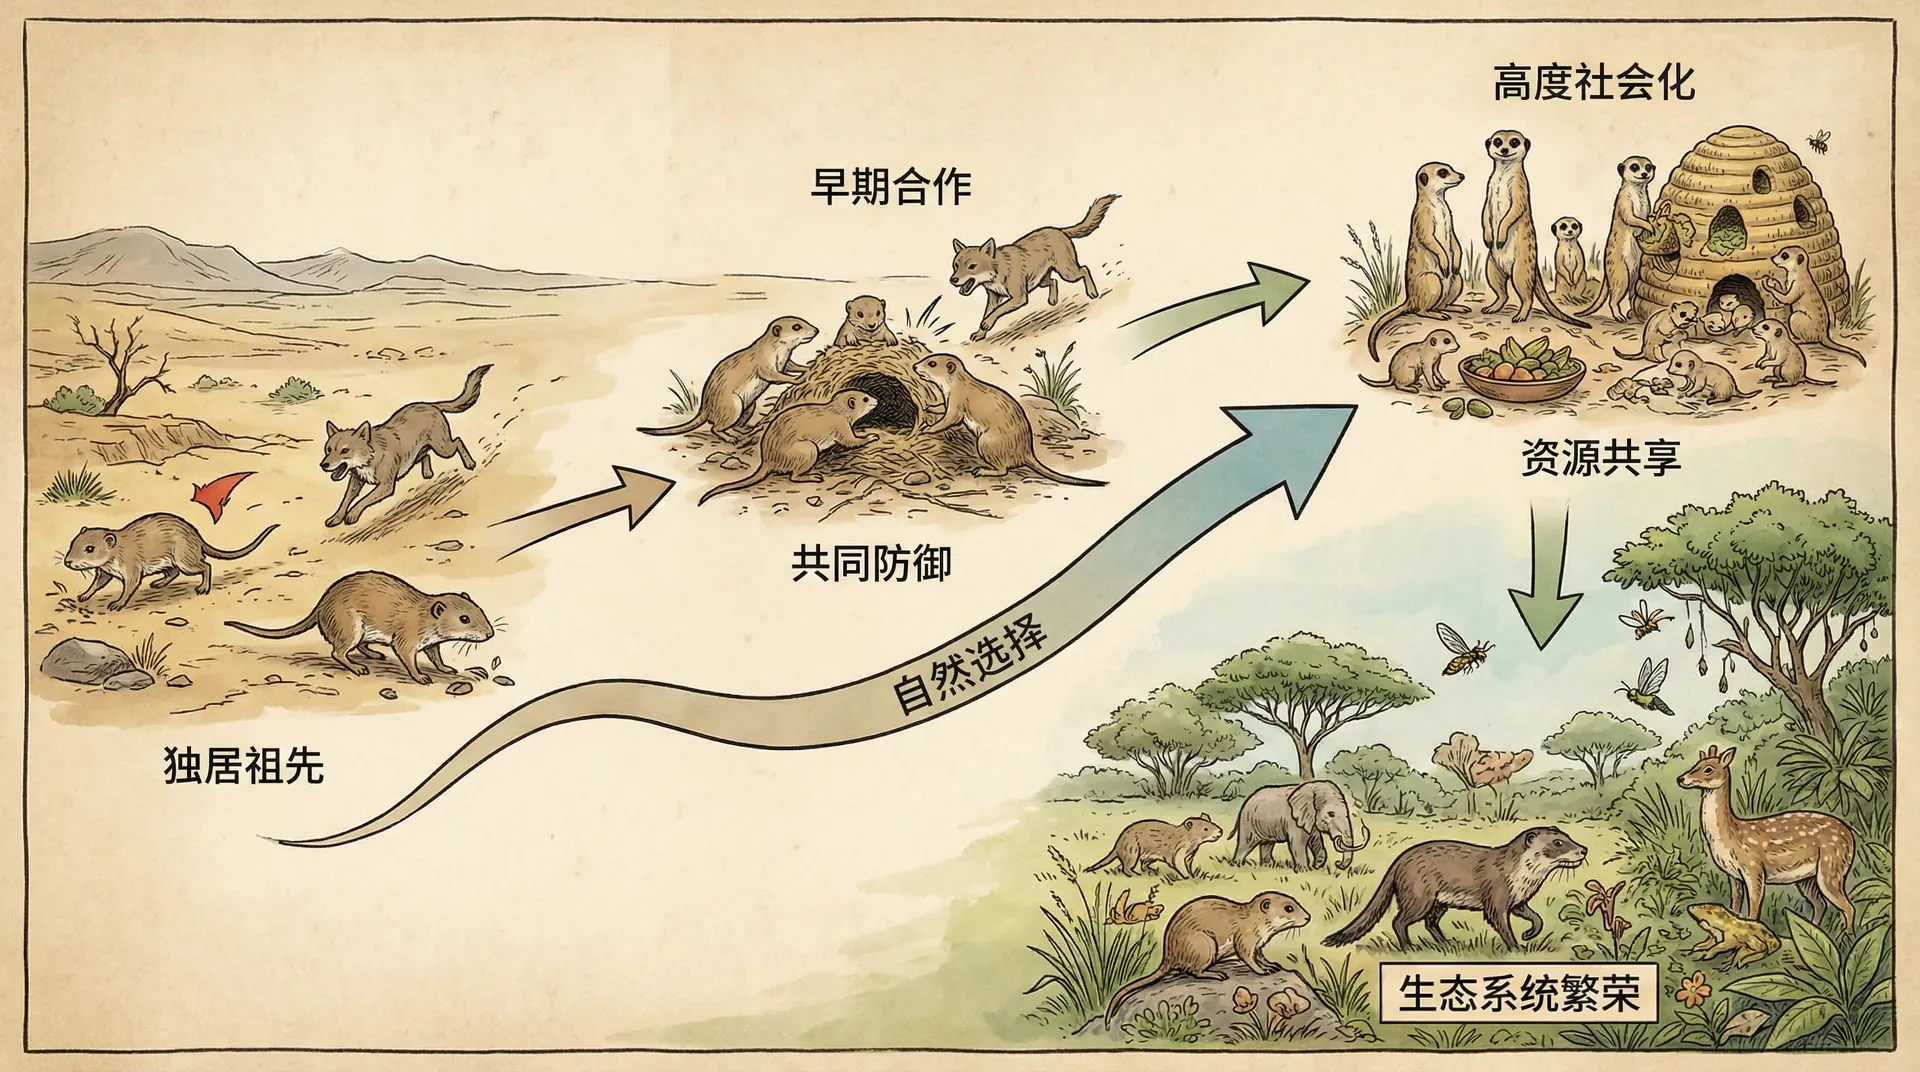
在自然界中,寄生是单方面获利,而互利共生则意味着双方都能受益。这种合作关系非常普遍,从高山到大海、从森林到荒漠,几乎每个生态系统中都有生物“合作”的身影。
我们熟知的例子里,蜜蜂和油菜花的关系堪称典范。蜜蜂采集花蜜、花粉——这为它们提供了能量和蛋白质来源;而油菜花获得了传粉的帮助,可以更好地繁衍后代。在云南的热带雨林中,还有“蚂蚁保镖”保护合欢树,蚂蚁驱赶食叶昆虫,作为回报,植物分泌蜜露给蚂蚁吃。而在我们的肠道里,数以万亿计的细菌帮我们消化纤维素、合成维生素,而我们则提供温暖而稳定的“家园”。
我们可以用如下对比几个常见的互利共生案例:
但为什么在竞争激烈的自然界中,会演化出愿意向“别人”付出资源的生物?合作的关系是怎样逐步形成、变得牢不可破的呢?
合作的起点
理论研究表明,互利共生能够建立主要依赖于两个关键因素:初始收益是否足够高、双方的空间关联度。
1. 初始收益——合作能否“起步”
互利关系能够形成的基本条件,是双方提供的资源或服务提高自身的净繁殖收益。以菌根为例,植物碳供应与真菌提供的磷、氮和水分会随土壤条件改变;同一组合在一种环境中互利,在另一种环境中可能接近寄生。
这里其实存在一个“临界阈值”:
- 当双方投入与回报的比例达到某个门槛,合作关系才能真正启动。
- 如果合作带来的好处不足以抵消各自的付出,这种合作关系就很难持续下去。
- 一旦跨过这个阈值,即使只是很小的初始合作,也有可能被自然选择逐步放大和优化。
在种群中,提供不同投入的遗传变异会有不同繁殖结果:
-
回报高于成本的组合可能增加;
-
只取资源而不回报的组合可能破坏关系;
-
伙伴选择、空间共现和制裁机制会改变收益。
-
不断调整自己的投入方式和规模,
-
追求以更低的代价获得更大的收益,
-
使合作关系变得越来越高效、稳定,最终发展成成熟的互利共生体系。
2. 空间关联度——合作能否“稳定”
如果两个物种常常随机遇见,很容易“擦肩而过”,合作难以长期维持。但如果两者固定配对合作,比如栖息在彼此身上、形成家族传承,则更容易形成稳定互利的关系。
举例来说:
榕树与榕小蜂:许多榕树与特定的一种或少数几种榕小蜂关系紧密,但并非严格“一树一种蜂”。雌蜂进入榕果后传粉并产卵,幼虫利用部分花,而未被利用的花形成种子。
从剥削到共生
有趣的是,互利共生关系未必起点就是“合作”,不少合作关系的历史都从剥削、甚至“敌对”演化而来。
理论模型认为,初始时某一方进入另一方体内掠夺资源,宿主也被迫演化出各种“护身符”——比如加厚细胞壁、分泌毒素,对抗寄生者。然而,这些防御并非免费:加厚细胞壁、制造毒素都要耗费能量。如果防御产生后依然维持,但寄生者却离开,防御反倒成了包袱,让宿主竞争中败下阵来。
剥削关系能否转为互利取决于双方是否产生净收益,以及这种组合能否稳定传递。宿主依赖并不等于双方互利,必须分别测量有无伙伴时两方的繁殖成功。
我们可以列出从剥削到合作的过程主要阶段:
在现实实验中,科学家曾让变形虫吞下某种初为寄生者的细菌,最初它们使变形虫存活率下降。但若干年后,含细菌的变形虫反倒比未感染者活得更好——共生、乃至依存,悄然发生。
合作关系的演化过程告诉我们:现今和谐的“双赢”,往往源自曾经的激烈博弈和复杂历史。理解这一过程,有助于我们欣赏自然界中丰富多样、互利共存的奥秘。
如何防止背叛
互利共生关系虽然对双方都有利,但它面临一个严峻的挑战:背叛者的入侵。如果有个体能享受合作的好处却不付出代价,它就能占便宜,从而在演化中取得优势。久而久之,合作就会瓦解。
囚徒困境用一组假设收益说明:单次、匿名且无法制裁时,个体背叛收益可能高于合作。表中的分数只是关系排序,不是生物实际获得的能量或后代数;重复相遇、亲缘关系、伙伴选择和制裁都会改变收益结构。
从个体理性的角度,无论对方怎么选,你背叛总是更划算:如果对方合作,你背叛得5分胜过合作得3分;如果对方背叛,你背叛得1分胜过合作得0分。所以理性的选择是都背叛,但结果是双方都只得1分,远不如双方都合作各得3分。这就是困境所在。
现实中的很多互利共生关系确实面临这样的威胁。在油菜花田里,有些昆虫会从花朵侧面咬破偷取花蜜,根本不碰花粉,这就是典型的背叛行为。它们得到了食物,但没有为植物提供传粉服务。但为什么这样的背叛没有摧毁整个传粉系统?
降低背叛的吸引力
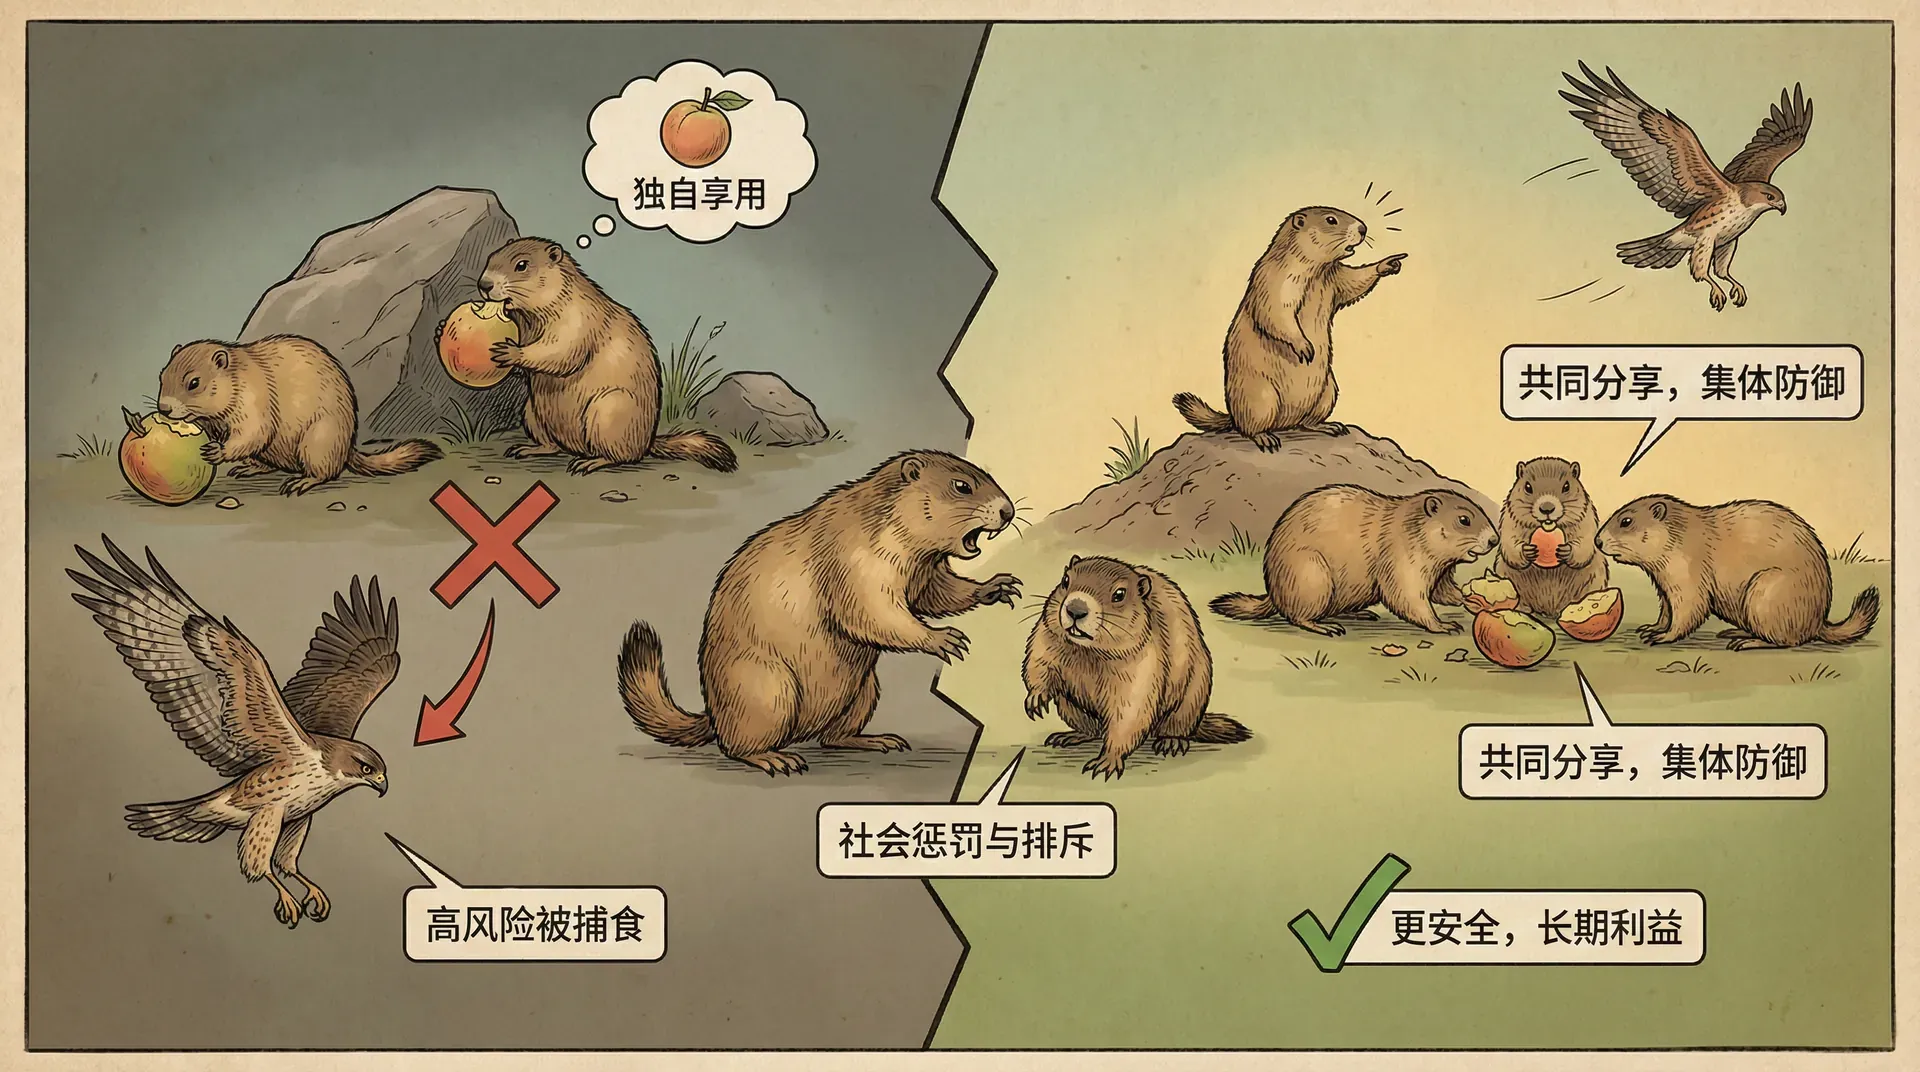
第一个维持合作的机制是:付出的东西本身对自己价值不大。很多互利共生关系中,一方提供的资源对自己来说是过剩的或成本很低的。
植物为传粉者提供的花蜜,主要成分是糖。对于通过光合作用制造糖的植物来说,糖通常不是限制因素,限制植物生长的往往是氮、磷等矿物质。分泌一些糖做花蜜,成本相对较低。同样,植物与菌根真菌的合作中,植物提供碳水化合物(光合作用产物),而获得矿物质和水分,这些正是植物更需要的。
如果提供资源的成本很低,那么即使偶尔遇到背叛者,损失也不大。而只要大部分时候能遇到合作者,整体上还是划算的。这样一来,合作就能维持下去。
制裁与报复
第二个机制是制裁。如果一方能够识别背叛行为并进行惩罚,就能遏制背叛的蔓延。
丝兰蛾在花中产卵并完成传粉,幼虫取食部分种子。部分丝兰会使卵过多的花败育,这使过度产卵的蛾后代损失更大;是否构成制裁,需要证明败育概率随蛾的利用程度变化,并排除授粉不足和资源限制。
豆科植物也有类似的手段。根瘤菌固氮的效率有高有低,有些菌株勤劳,有些偷懒。研究发现,植物能够识别哪些根瘤固氮效率高,哪些低,并相应地调整对这些根瘤的氧气供应。固氮效率低的根瘤得到的氧气少,里面的细菌生长受限。这种「按劳分配」的机制,让偷懒者付出代价,鼓励了勤劳的菌株。
公平分配与隔离
第三类机制是限制共生体在宿主体内的扩增或传播偏差。宿主分区、瓶颈和免疫控制可降低某些品系只占资源的机会,但并不保证每个品系得到完全相同的传递机会。
染色体复制和分离受到细胞周期严格控制,异常复制或分离会降低细胞和个体适合度。基因组内部仍存在转座元件、减数分裂驱动等冲突,因此不能说染色体之间没有竞争。
一些昆虫和共生细菌也采用了类似的机制。以某些吸血昆虫为例,共生细菌被分为两组:
- 一组分布在昆虫的体细胞中,负责:
- 帮助消化血液
- 合成营养物质
- 但不会被传递给下一代
- 另一组被隔离在生殖细胞中:
- 负责传递给后代
- 但不参与日常营养工作
体细胞中的细菌“知道”自己无法遗传,只能通过让宿主活得好、繁殖得多,来间接帮助生殖细胞中的“亲戚”细菌繁衍。这种分工和隔离,有效地遏制了共生细菌之间的内部竞争。
总结
从稻田里的害虫到根瘤里的细菌,从血吸虫的侵扰到蜜蜂的辛勤劳作,生物之间的关系千姿百态。这些关系不是固定不变的,而是在漫长的演化历程中不断调整、不断塑造的。
理解种间关系时,可以始终回到同一测量:伙伴存在时,双方各自的存活或繁殖怎样改变?传播方式、空间结构和制裁会改变答案,同一组合也可能在不同环境中从互利转为寄生。
当我们下次走进田野,观察身边的动植物时,不妨多想一想:它们之间是什么关系?这种关系是如何形成的?未来又会如何演变?这些问题的答案,就藏在我们周围的每一个生态系统中。