扩散与运输
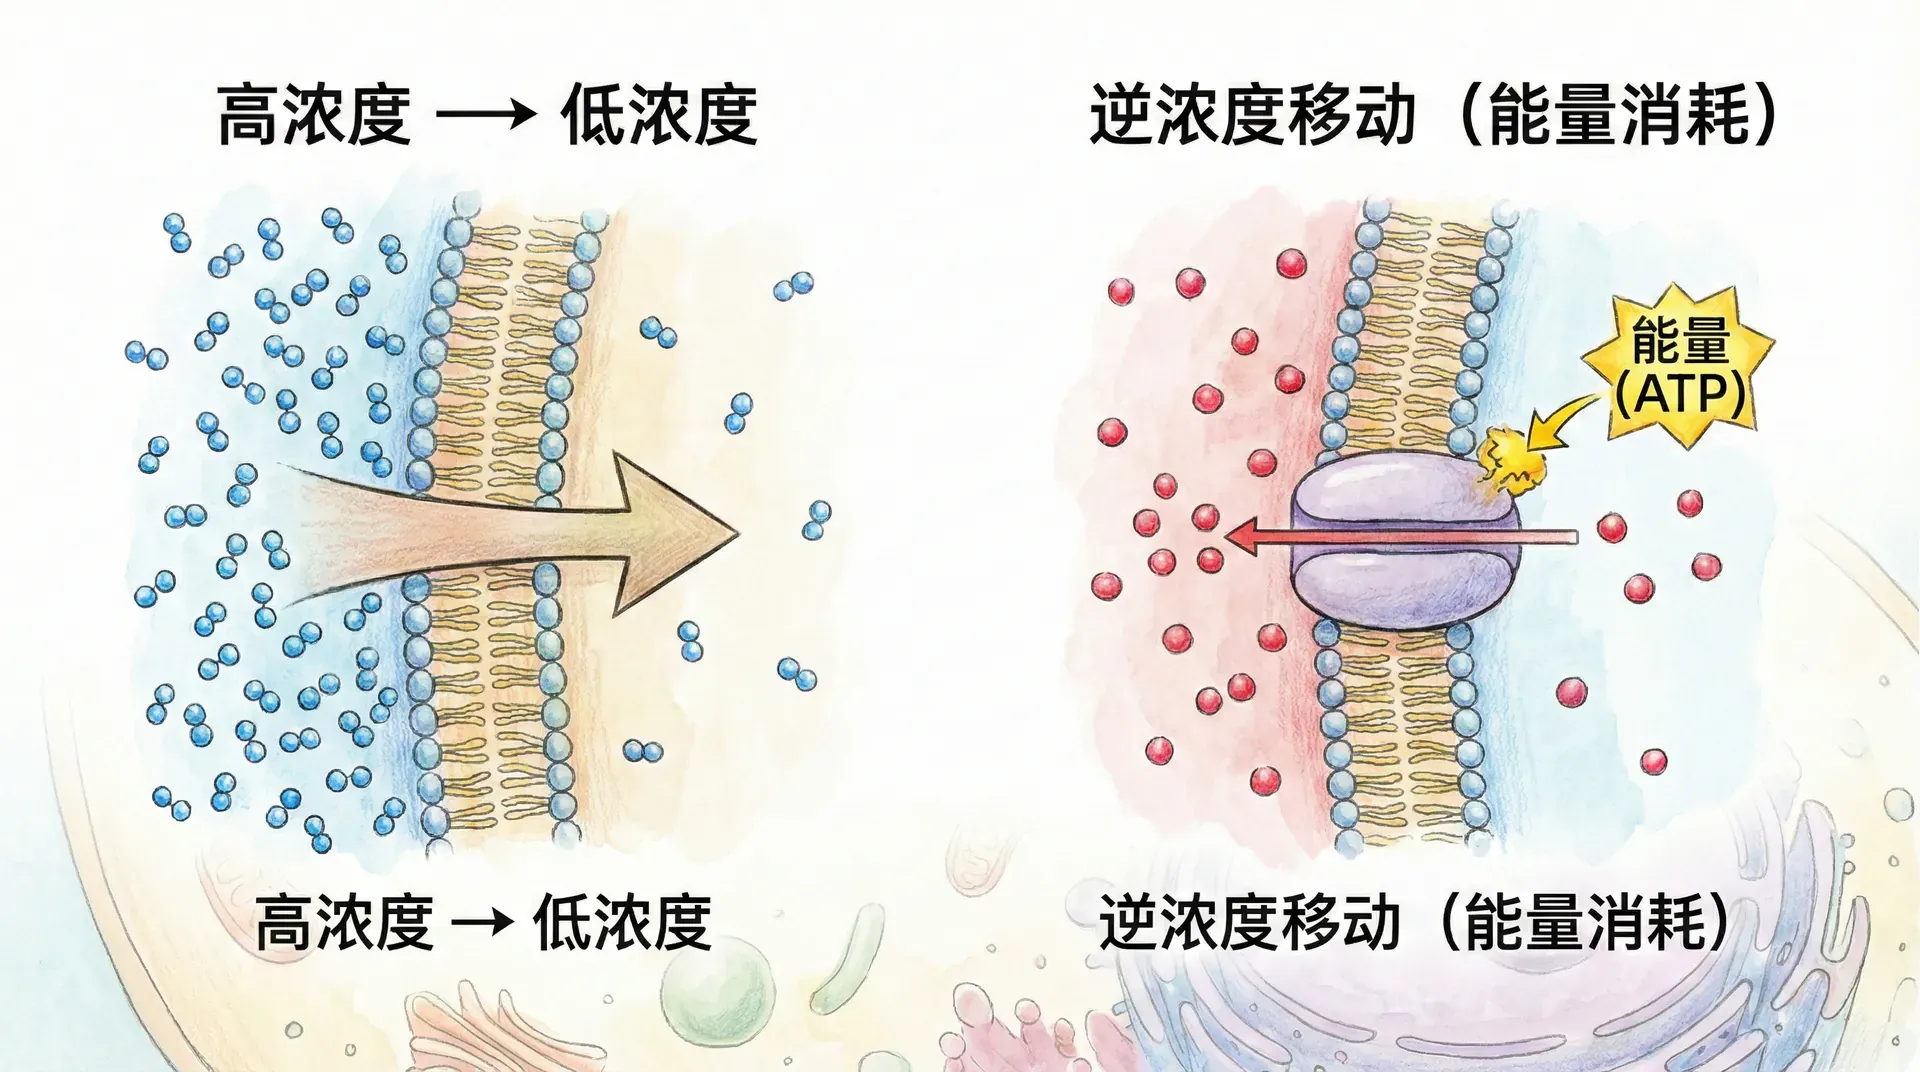
分子热运动推动扩散,细胞还利用通道、转运体、囊泡和分子马达控制物质流向。氧和CO₂可在适当膜与梯度下扩散,神经递质释放后跨突触间隙扩散,蛋白质与RNA则常在扩散、结合和主动运输之间切换。不同尺度使用的机制并不相同。
定量理解扩散能估计一个分子在多长时间内跨越给定距离,也能判断何时需要对流或主动运输。药物递送和组织工程确实受扩散限制,但提高扩散速度并非总是目标;停留时间、屏障选择性和非目标组织暴露同样重要。
随机游走

布朗运动的发现
1827年,英国植物学家布朗在显微镜下观察花粉颗粒时,发现这些微小颗粒在水中做着不规则的运动。这种看似混乱的运动现象后来被称为布朗运动。长久以来,这一现象让科学家困惑不已:难道真的有哪种“看不见的力”在推动这些颗粒?直到爱因斯坦在1905年提出理论解释,人们才认识到这种运动反映了分子热运动的统计性质。随后,法国物理学家让·佩兰通过实验测量颗粒运动,间接验证了原子的存在,为原子论提供了重要证据。
细胞内蛋白持续受到水和其他分子的碰撞,短时间轨迹难以逐步预测,却可以用概率分布描述。轨迹还会受障碍、黏度、瞬时结合和主动流动影响,因此真实细胞质中的运动可能偏离简单布朗扩散。
随机游走的数学描述
我们可以用一个简单而经典的模型来描述分子的随机运动:一维随机游走。设想一个分子在一条直线上走动,每走一步有 1/2 的概率向左,也有 1/2 的概率向右。步长可以设为恒定(如一个单位长度),时间步也假设为恒定间隔。这种模型虽然简单,却揭示了分子运动背后的本质。
图中的两条路径来自同一规则却走向不同位置,说明随机过程的单次结果会变化。随机不等于每条轨迹在数学上“独一无二”,重复位置和路径都可能发生;真正稳定的是大量重复后的分布与均方位移。
- 单步方向不可由模型确定,只能给出概率;
- 不同轨迹可以相交、重合或到达同一终点;
- 大量粒子的统计量比单条路径更可重复。
少量分子参与的基因表达和信号反应可能出现明显随机涨落。细胞可通过增加分子数、时间平均、反馈和区室化降低或利用这些涨落。
随机游走可扩展到二维膜和三维细胞空间,也可加入偏向、不同等待时间和障碍。受限扩散、结合—释放和拥挤环境可能产生异常扩散,此时均方位移不再与时间严格成正比。
位移分布的统计特性
对独立、同分布且方差有限的步长,长时间位移可近似高斯分布。边界、分子异质性、持续运动或长时间停滞都可能造成非高斯分布,因此中心极限定理只适用于满足条件的模型。
一维无漂移自由扩散的概率密度为它假定介质均匀、扩散系数恒定且空间无边界;细胞内应用时要检查这些条件。
一维均方位移是位移平方的期望,并不是“平均位置的平方”。对无漂移正常扩散:
典型扩散距离随增长,所以把距离扩大10倍通常需要约100倍时间。分子并没有逐渐减速;只是随机改变方向使净位移增长慢于实际走过的总路程。
在理想自由扩散中,时间增加使分布变宽,标准差按增长。突触间隙很短,神经递质可快速扩散;细胞质信号则常同时发生降解、缓冲和结合,浓度形状未必保持简单高斯。
扩散定律
扩散是一种普遍的物理现象,从分子到宏观的生物体系都发挥着至关重要的作用。它不仅影响物质的混合和分布,还深刻影响细胞内外物质交换、代谢和信号传递等生物学过程。理解扩散现象的定量规律,是分子生物学、生物物理和生医学等多个领域的基础。
Fick第一定律
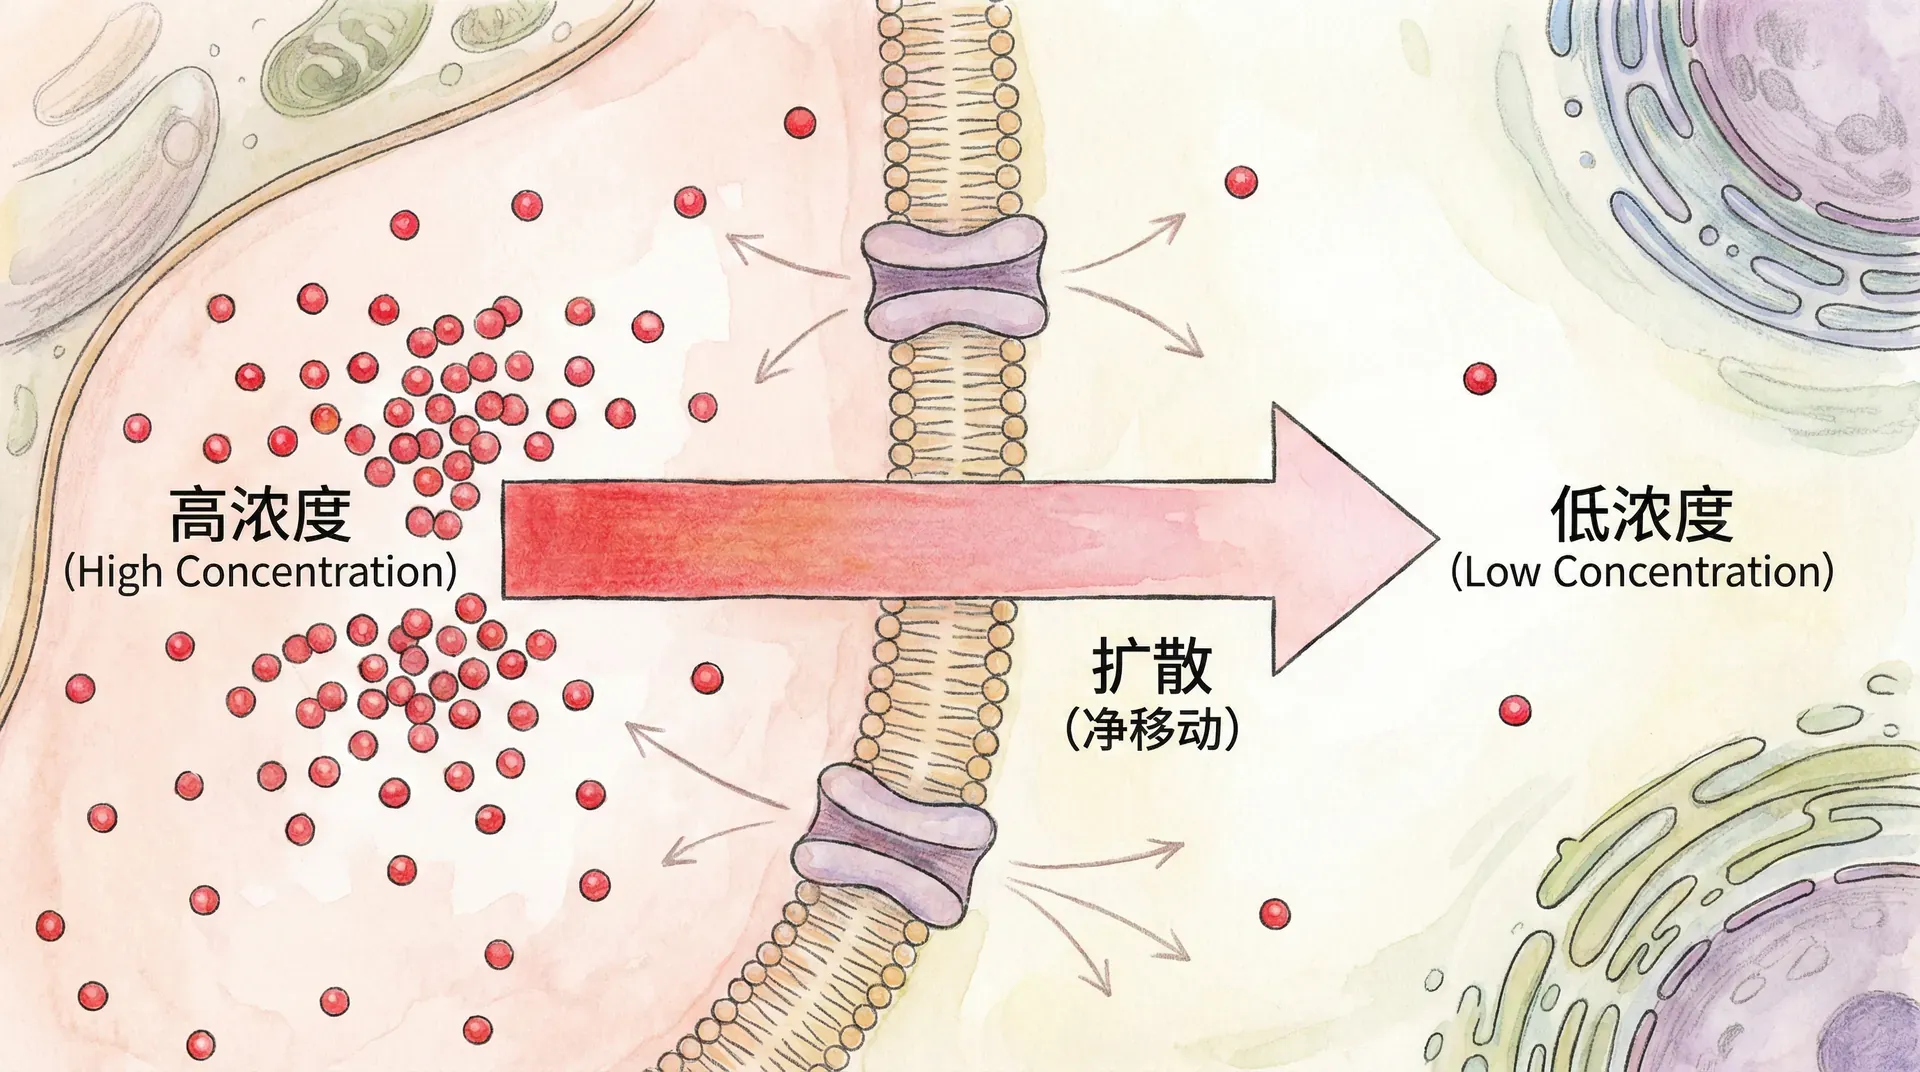
1855年,德国生理学家阿道夫·菲克(Adolf Fick)首次定量描述了扩散现象,提出了著名的Fick第一定律。Fick第一定律揭示了扩散通量(即在单位时间通过单位面积的分子数目)与空间浓度梯度之间的线性关系:
负号表示通量方向与浓度升高方向相反。在均匀介质、没有电场和整体流动时,分子从高浓度区产生向低浓度区的净扩散;带电粒子或非理想混合物更严格地由化学势梯度驱动。
通俗地说,Fick第一定律就像描述热量如何从高温处传导到低温处。例如,在房间一隅点燃一支香,香味分子会由点燃处(高浓度区)向远处扩散,在随后的时间内逐渐“充满”整个房间。香味扩散的速度,正是由空间中的浓度梯度和分子的扩散系数共同决定的。若空气流通缓慢,香味扩散仅靠分子热运动,遵循Fick定律;若开了风扇,则对流成为主导。
浓度梯度越陡,在不变时通量绝对值越大;浓度均匀后净扩散通量为零,但分子仍进行热运动。跨膜或组织运输还会受膜通透性、表面积、反应和血流限制。
Fick第二定律
Fick第二定律进一步揭示了扩散引起的浓度分布随时间的演变:
该式由Fick第一定律与质量守恒得到,说明浓度分布的曲率如何造成局部浓度随时间变化。若随位置或浓度变化,或存在反应、对流和边界通量,方程要加入相应项。
葡萄糖从毛细血管进入组织、信号分子在细胞内扩散和药物在凝胶中释放,都可从扩散方程出发建模。小分子通常扩散较快,但组织尺度的速度还取决于结合、代谢和屏障,不能只由分子量判断。
如上图所示,如果某种分子初始时高度集中在某一位置(比如细胞内某个区域),那么随着时间推移,这些分子将逐渐扩散到周围区域,使得浓度分布变得更均匀。红色曲线是初始分布状态,其他曲线显示不同扩散时间后的分布。从尖锐到平缓,反映了分子的不断扩散和混合。这种扩散动力学对理解神经递质信号的空间扩散、营养分子扩散到细胞组织等皆有现实意义。
扩散系数的意义与影响因素
Stokes—Einstein方程适用于稀溶液中近似球形粒子、连续均匀介质和无滑移边界等条件。细胞内拥挤、非球形分子和特异结合会产生偏离,因此由半径与黏度估算的只是基线。
其中为玻尔兹曼常数,为绝对温度,为溶液粘度,为分子半径。
这个公式蕴含了多个生物学与物理意义:
- 温度: 在其他条件不变且模型适用时,随绝对温度增加;但生物液体黏度也随温度变化,发热不能简单推出所有反应与交换按同一比例加快。
- 尺寸和形状: 较大水动力半径通常降低,细长或柔性分子还具有方向依赖。
- 介质: 黏度、拥挤、网状结构和可逆结合都会降低或改变有效扩散。血流中的物质输送还含对流,不能由扩散系数单独描述。
以下归纳了主要影响因素及其生物学意义:
水中小分子常见约在量级,许多蛋白约为到,但温度、大小和介质会改变数值。用估算距离,比仅比较两个数量级更能判断某个细胞尺度是否需要主动运输。
细胞器和大囊泡在长轴突中主要依靠分子马达,局部小分子和许多蛋白仍可有效扩散。胞吞和胞吐负责跨膜囊泡运输,不能笼统归为“让大分子扩散更快”。
生物系统中的分子运输
生物体内各种分子的空间和时间分布,既依赖随机扩散,也依赖主动运输。了解这些不同的机制,有助于我们解释生命活动的高效性和复杂性。
DNA上的一维搜索与“滑动机制”
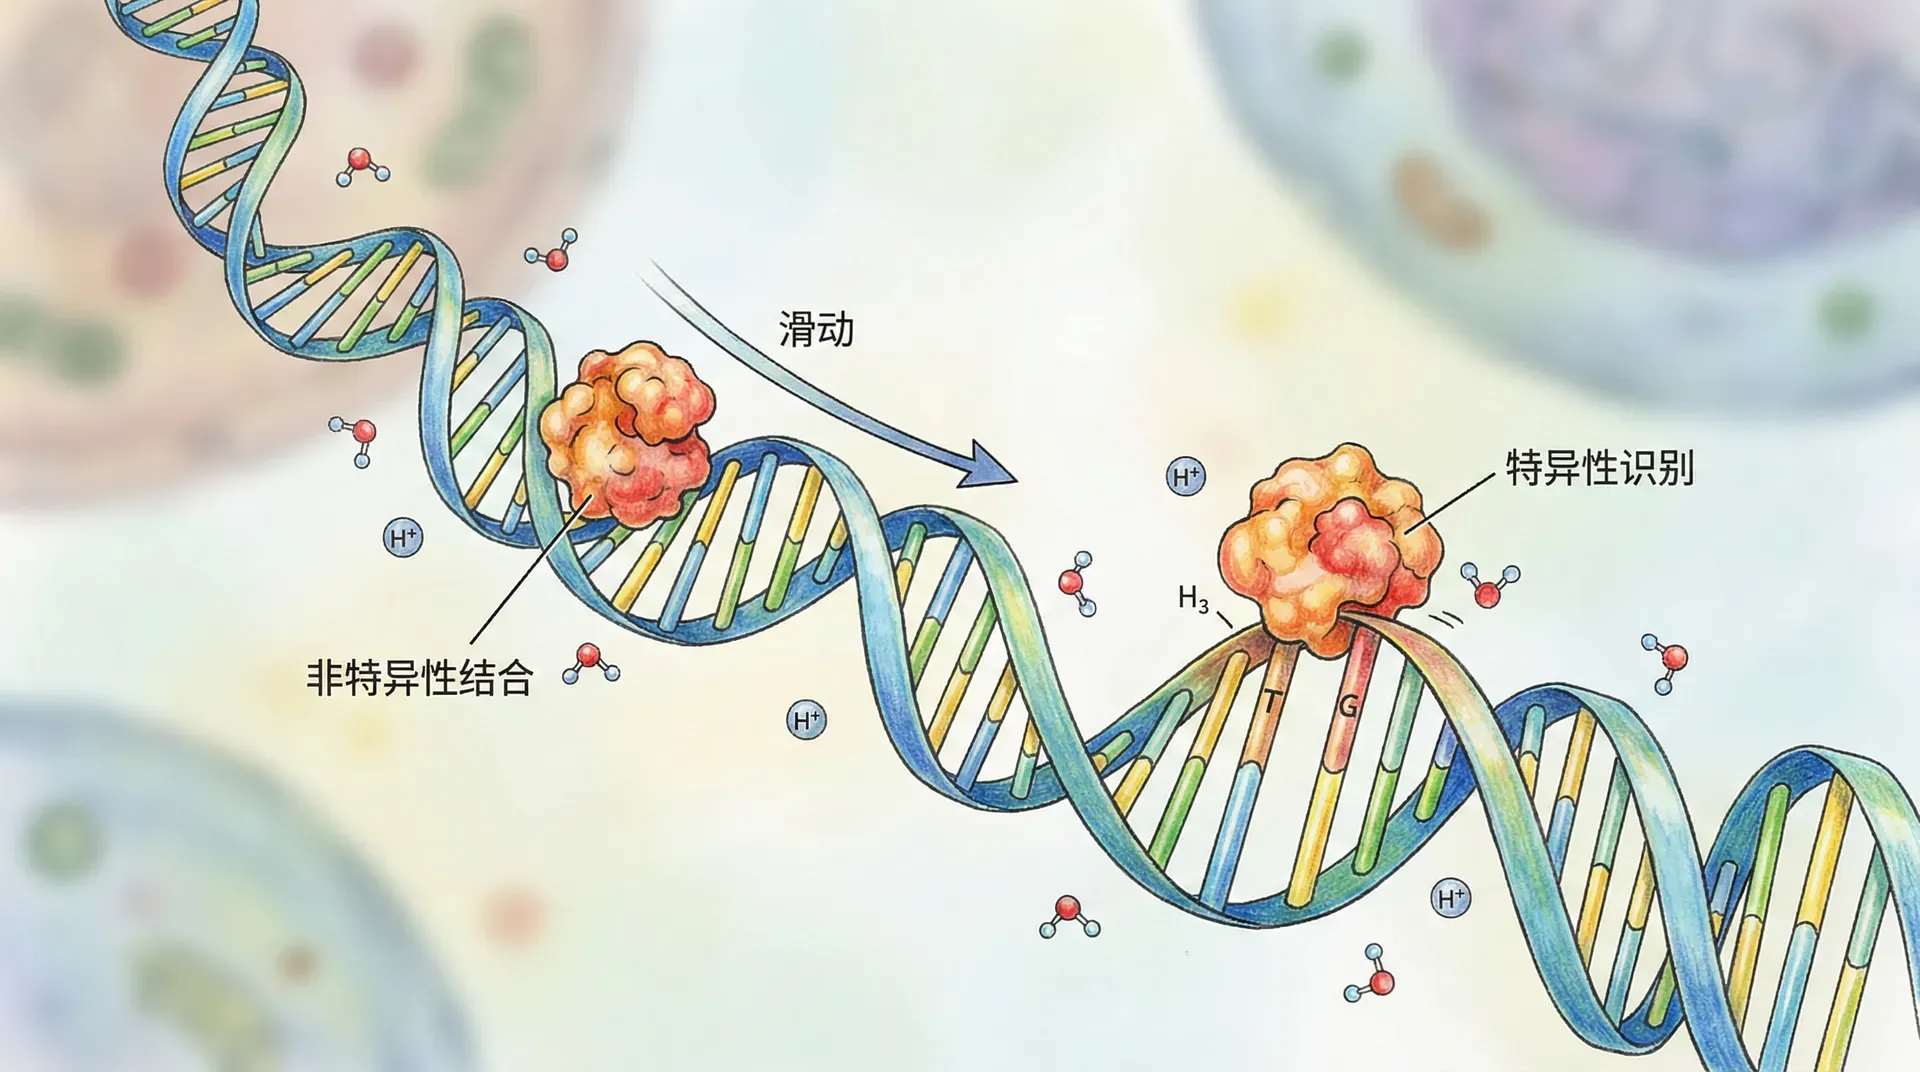
DNA结合蛋白需要在大量非目标序列中找到目标。许多蛋白先通过三维扩散接触DNA,再进行短距离滑动、跳跃或链段间转移,之后离开并重新结合;这类三维与一维过程组合称为促进扩散。
- 蛋白通过三维扩散与DNA发生非特异接触;
- 在短时间内沿DNA进行一维滑动,并检查局部序列与形状;
- 脱离DNA后重新结合到其他位置,反复组合局部扫描与长距离跳转。
一维滑动可以减少反复从体相精确撞中目标的时间,但滑动过久会困在非目标区域。搜索效率取决于非特异结合强度、滑动长度、DNA构象和细胞拥挤,并没有普遍的“提高上百倍”。
图书馆类比可以说明“先到书架、再局部查找”,但分子没有策略或意图。热运动与结合自由能自动产生不同运动阶段,最优比例随环境改变。
乳糖阻遏蛋白是研究促进扩散的经典体系,但早期估算的搜索时间和加速倍数依赖细胞条件、蛋白拷贝数与模型。更可靠的结论是三维碰撞和短程一维搜索共同参与,而不是固定在3秒或两到三个数量级。
单分子成像能够区分结合、滑动和快速扩散状态,并测量停留时间。所谓“跳跃”或“链段转移”对应可检验的运动模式,名称只是描述,仍需统计模型排除定位误差和光漂白。
分子马达

长距离、定向运输常依赖分子马达。驱动蛋白和动力蛋白沿微管运动,肌球蛋白多沿肌动蛋白丝运动;马达通过ATP水解耦合构象循环,并由接头蛋白连接不同货物。
马达具有方向偏好和有限过程性,却会停顿、脱落或与反向马达竞争。运输速度和目的地由轨道极性、马达种类、货物接头和局部调控共同决定,并不是始终快速而准确的传送带。
常规驱动蛋白沿微管的一次主要机械步长约8 nm,与微管晶格重复距离相符。这种几何匹配支持交替步进,但每个ATP循环的耦合效率和停顿概率仍会随负载与条件改变。
在人类长轴突中,囊泡、线粒体和蛋白复合物依赖快、慢轴突运输,时间从小时到数天不等。小分子神经递质通常在轴突末端局部合成或装入囊泡,不能与整颗囊泡自由扩散跨越一米混为一谈。
货物离开马达后可在局部扩散,也可能被膜、骨架或锚定蛋白捕获。扩散与主动运输的交替使细胞在远距离定向移动和局部探索之间切换。
通过上述扩散定律和分子运输机制的理解,我们能够深入认识生物体系自下而上的物理本质。这既有助于科学研究,也直接指导医学、工程等领域中的实际应用。
测定扩散参数
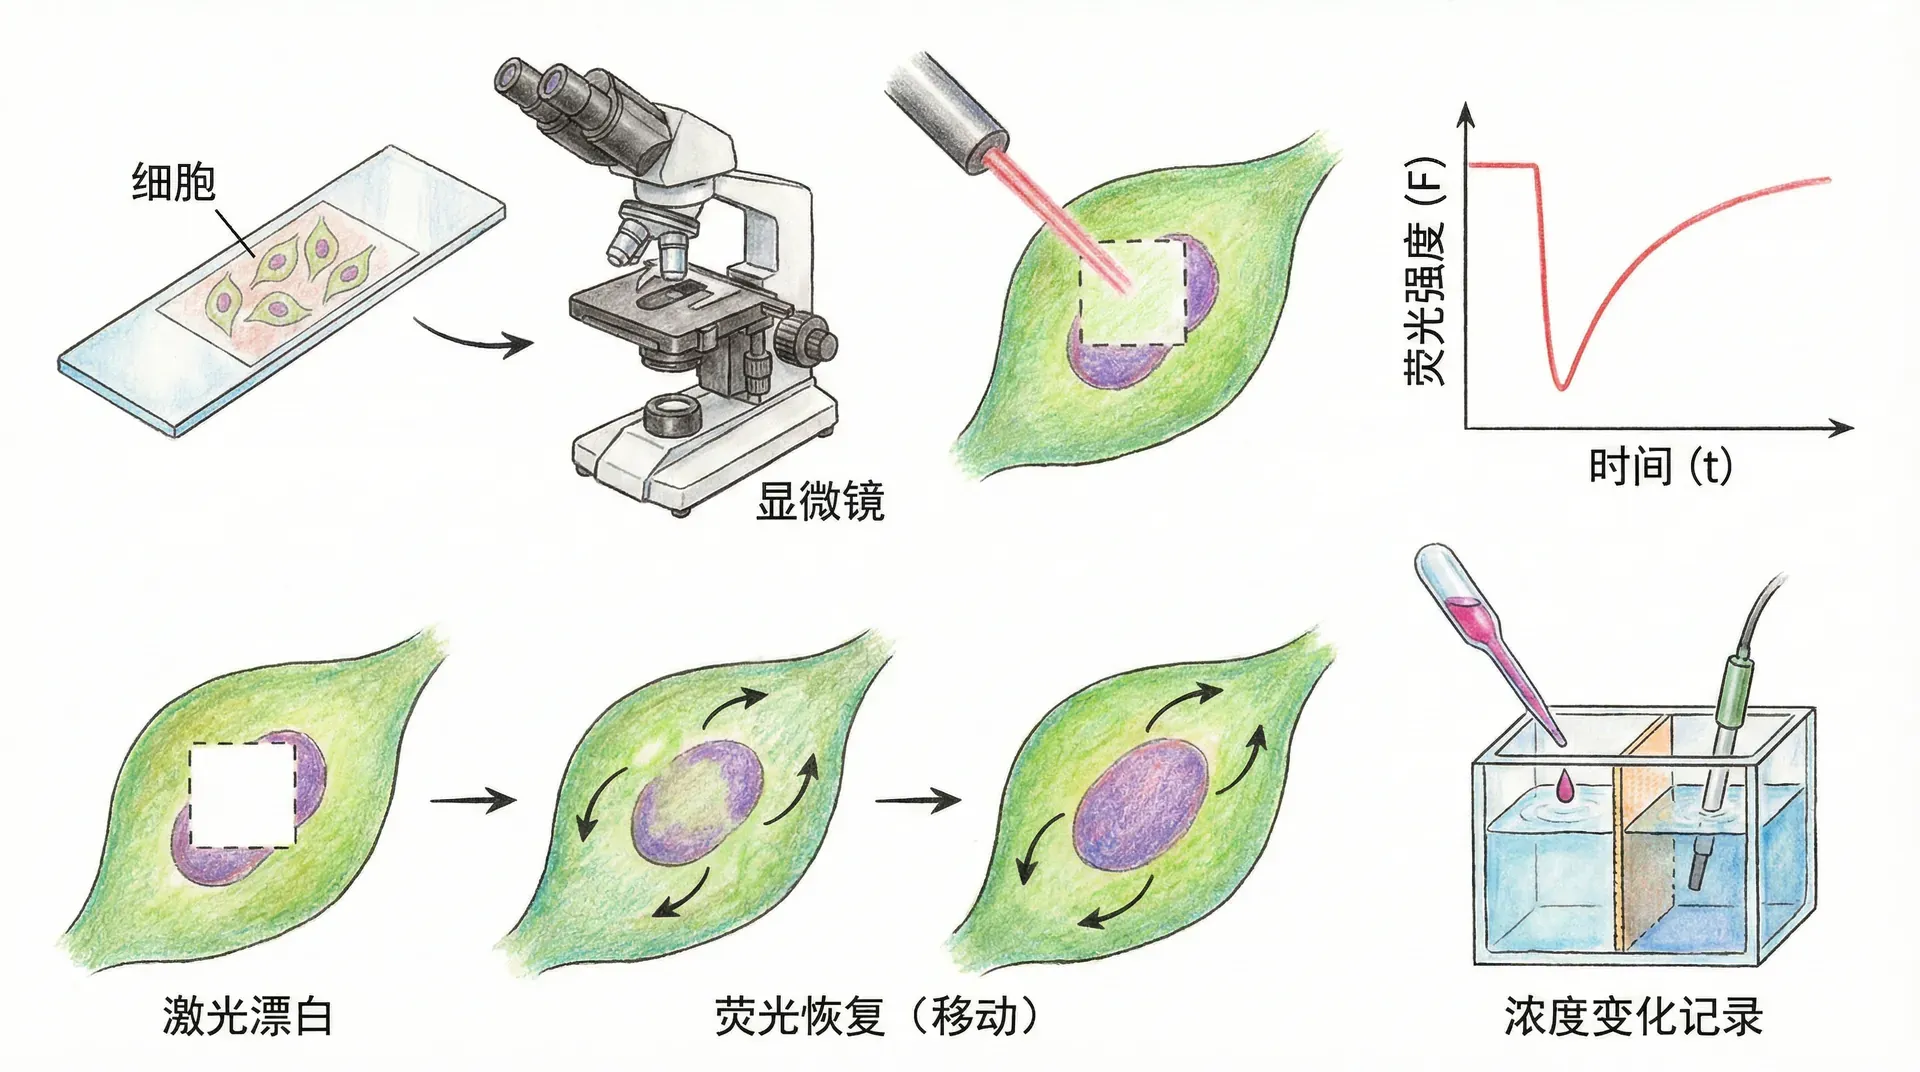
常用扩散测量包括荧光漂白恢复、荧光相关光谱、单分子追踪和脉冲场梯度核磁共振。电泳与离心主要测量电场迁移或沉降,并不直接等同于无外力条件下的扩散系数。
FRAP: 漂白局部荧光后记录信号恢复,可估计有效扩散、可移动比例和交换时间。恢复同时受扩散、结合、细胞形状和漂白区域影响,参数依赖所选模型。
单分子追踪: 定位连续帧中的单个分子并计算步长或均方位移,可区分自由、受限和定向运动。定位误差、曝光时间、轨迹长度与状态切换都可能造成偏差。
其他方法: 荧光相关光谱利用小体积内强度涨落估计浓度和扩散时间;脉冲场梯度核磁共振可测总体自扩散。电泳和超速离心适合分离或测迁移、沉降性质,若要反推扩散还需额外理论和参数。
扩散参数必须连同温度、黏度、pH、盐、分子标记和拟合模型报告。荧光标签可能改变尺寸或结合,活细胞还会移动和改变形状,因此需要固定样品、自由染料和已知扩散物等对照。
总结
扩散把单分子难以预测的碰撞转化为可重复的统计规律,Fick定律描述群体浓度通量,均方位移连接单粒子轨迹与扩散系数。它们都依赖均匀介质、边界和无漂移等假设,真实细胞中的结合、拥挤和主动流动会造成偏离。
促进扩散帮助DNA结合蛋白组合长距离跳转与局部扫描,分子马达则利用ATP沿细胞骨架运输大货物。药物和生物材料设计可以利用这些机制,但还要考虑屏障、反应、清除和组织对流。
分析一个运输问题时,可先估算扩散跨越目标距离所需时间,再判断是否存在浓度梯度、整体流动、膜屏障或主动运输。这样能把“随机运动”与“定向运输”放在同一套可测量的时间和空间尺度上比较。