变构效应
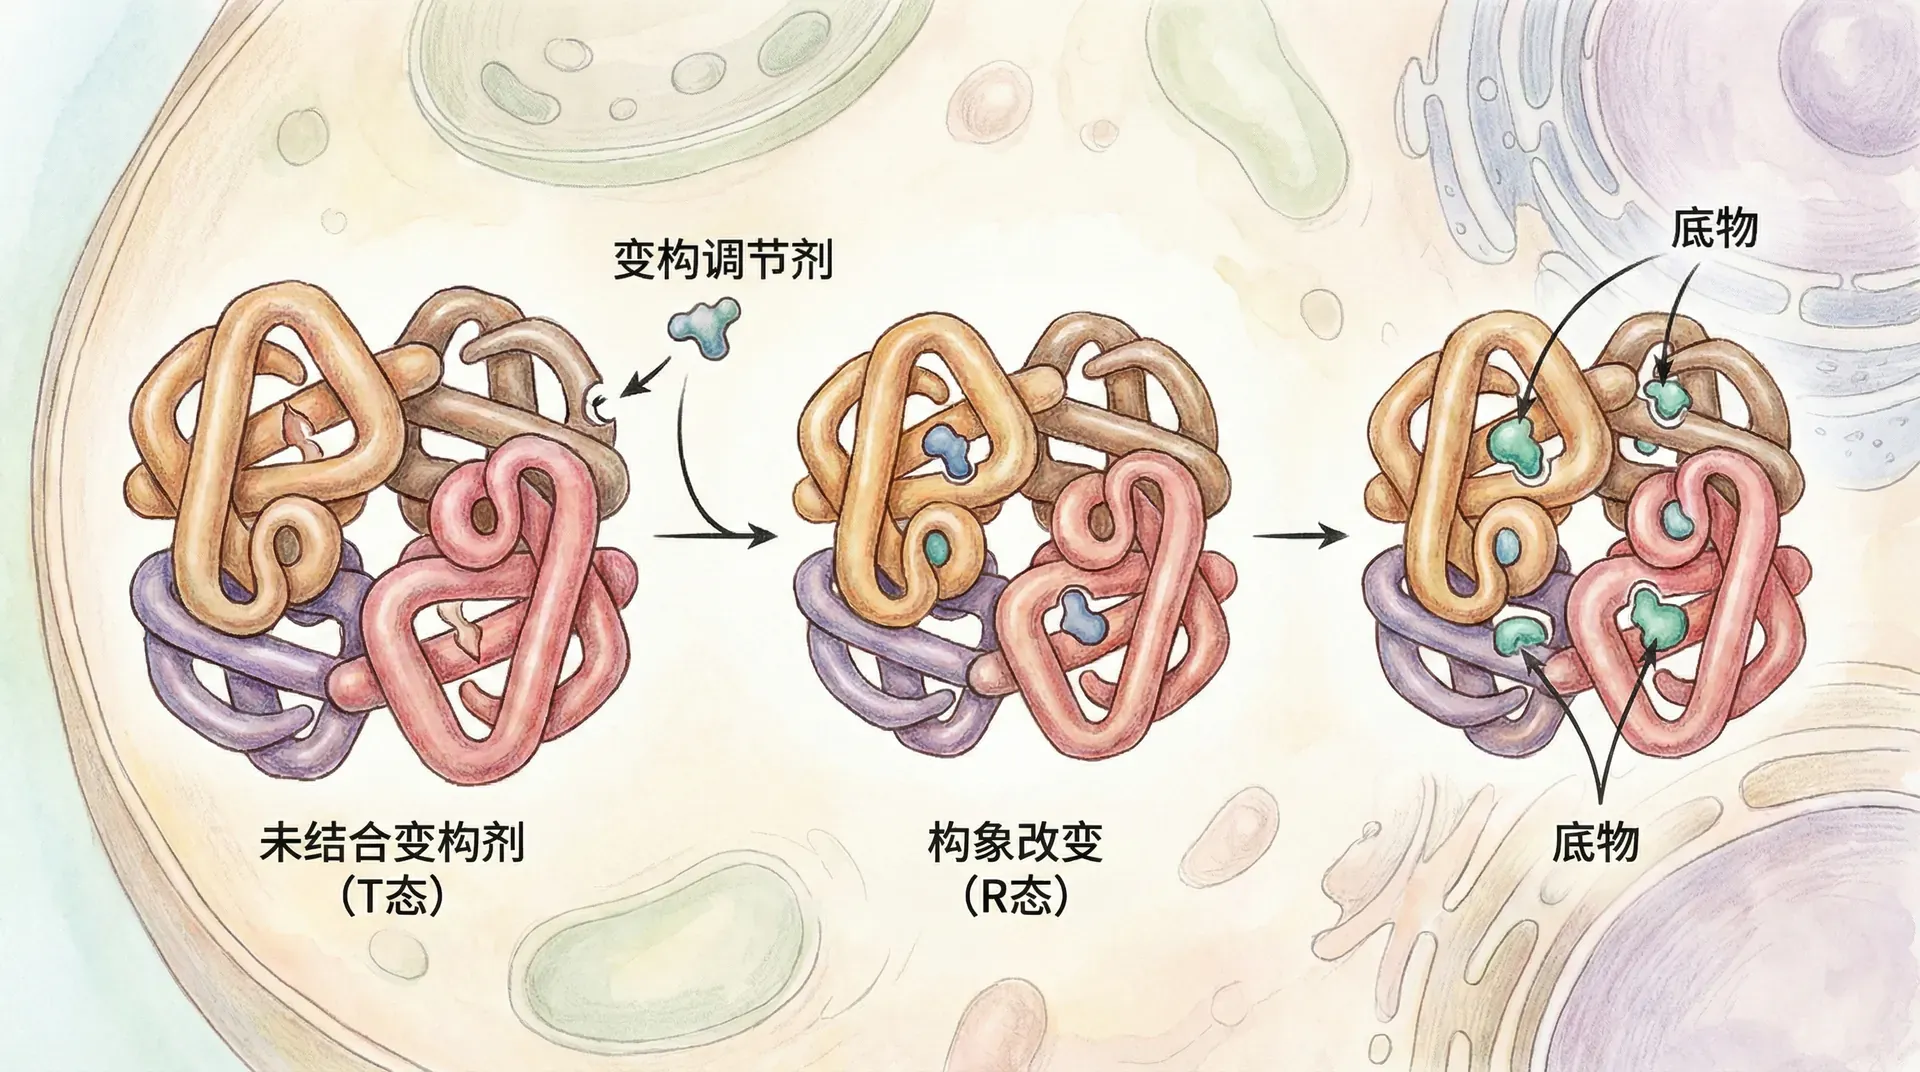
变构指一个位点的结合或化学变化影响同一大分子其他位点的性质。影响可通过构象改变、动态波动或亚基界面传播,使酶活性、配体亲和力或通道开放概率发生变化。温度或pH本身不是变构配体,但它们可以移动构象平衡。变构耦合既可能是正向的,也可能抑制远端功能;同一蛋白在不同配体组合下甚至会改变耦合方向。
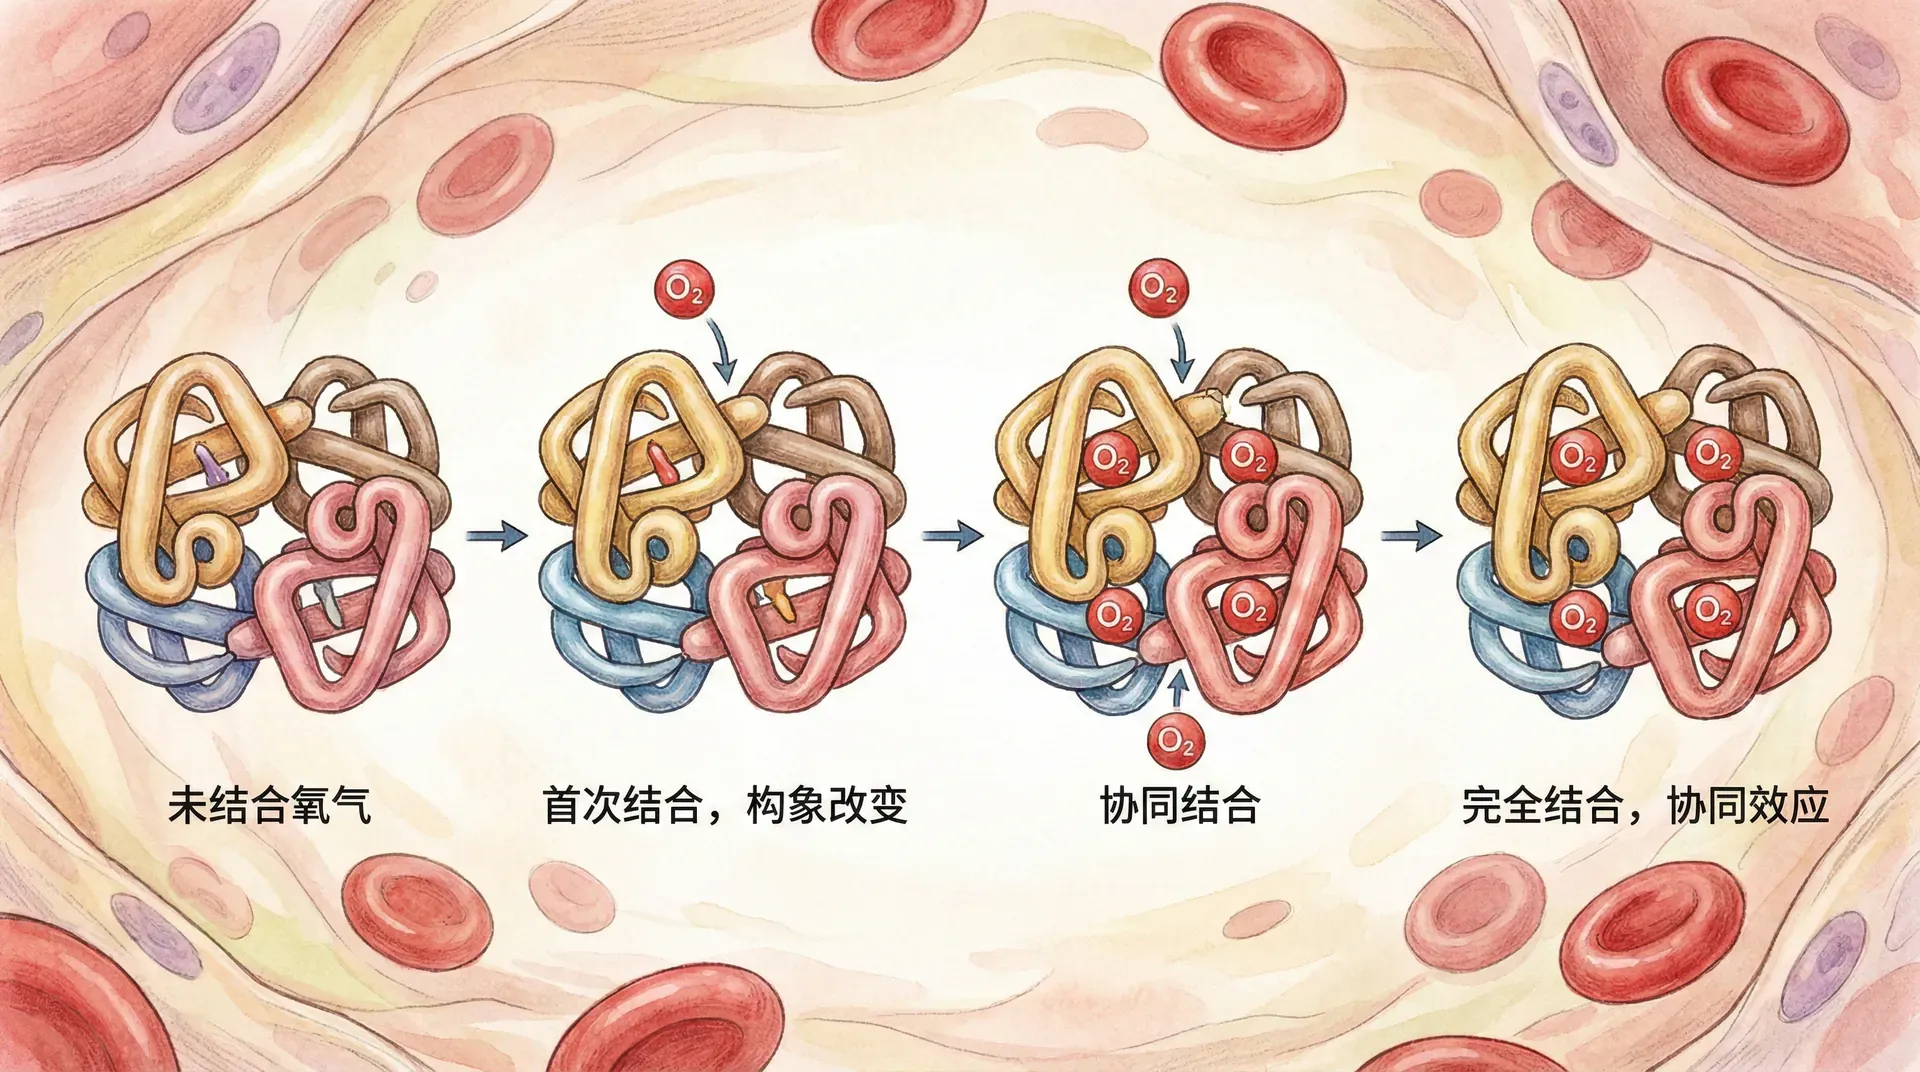
血红蛋白的氧结合是经典例子:氧占据一个亚基后改变四聚体状态分布,使其他位点更容易结合氧。高原适应还涉及通气、红细胞生成和2,3-BPG等多层调节,不能说个体血红蛋白分子会为了适应而自行改变。
变构效应的核心是位点之间存在自由能耦合。观察到构象变化可以提供机制线索,但即使平均结构差异很小,动态分布改变也可能传递变构影响。
酶的反馈调节、受体激活、离子通道门控和蛋白复合体装配都可能含有变构步骤,但不能把所有快速调控都统称为变构。需要证明一个位置的扰动会可重复地改变另一个功能位置。
独立结合与超敏感性的对比

独立结合、协同结合和超敏感响应是相关但不同的概念。独立位点互不改变亲和力;协同性描述位点之间的结合耦合;超敏感性描述输出曲线比简单双曲线更陡,它还可由多步磷酸化、酶饱和或反馈等机制产生。先区分机制词与现象词,才能避免仅凭一条S形曲线就断言存在某种结构通路。
当我们讨论分子结合现象时,最简单的情形就是独立结合。在这种系统里,每个结合位点的行为都是独立的,互不影响。无论一个大分子有多少个结合位点,某个位点是否已结合配体,都不会影响其他位点结合配体的能力。
可把独立位点理解为彼此不影响的座位:一个座位被占据后,其他座位的保持不变。比喻只帮助说明独立性,实际位点是否独立仍需数据验证。
在独立结合系统中,饱和度(θ)与配体浓度([L])之间遵循简单的双曲线/迈克利斯-门腾关系式:
其中 θ 表示所有结合位点的饱和比例,[L] 表示配体浓度,Kd 表示解离常数。下图为独立结合和协同结合的比较,横坐标为相对 Kd 的配体浓度,纵坐标为结合位点的饱和度。
配体浓度增加时,独立单个位点的占据率按双曲线平滑上升。曲线没有真正不连续的“开关点”,但细胞下游若设置阈值,仍可能把平滑占据转换为较陡输出。
超敏感性系统的特点
超敏感响应在相对窄的输入范围内从低输出转为高输出。陡峭程度可用有效Hill系数或10%到90%响应所需的浓度倍数描述,但这些指标只描述曲线,不自动说明分子机制。还应说明输出是结合占据、酶速率还是基因表达,因为下游非线性可能让同一结合过程产生不同形状。
正协同性可以产生S形结合曲线,血红蛋白就是典型例子。一个氧结合使高亲和构象权重增加,后续位点更易占据;这仍是概率平衡的改变,并不是失控的“雪崩”。
对单一独立位点,饱和度从10%升到90%需要配体浓度增加81倍。协同体系所需倍数取决于Hill系数和具体模型,可能显著缩小,却没有适用于所有超敏感系统的3—5倍固定范围。
细胞周期和代谢控制确实需要阈值与反馈,但陡峭响应也可能放大噪声,通常还要配合时间积分、负反馈或不可逆步骤。判断功能意义应看系统输入范围和错误成本。
血红蛋白的协同氧结合
血红蛋白的结构特点
成人主要血红蛋白由两个α和两个β亚基组成,每个亚基含一个血红素并可结合一个O₂。四个位点通过亚基界面耦合,因此占据不是完全独立;肌红蛋白只有一个主要氧结合位点,呈较简单的双曲线。
四聚体协同性使血红蛋白能在肺部较高氧分压下充分结合,并在组织较低氧分压下释放较大比例的氧。实际输氧还取决于血流、血红蛋白浓度、pH、CO₂、温度和2,3-BPG。比较血红蛋白与肌红蛋白曲线时,应使用氧分压而不是溶液中随意设定的“配体浓度”,并注明实验条件。
T态和R态的转换机制
血红蛋白在溶液中形成一组构象,常用低亲和T态与高亲和R态概括主要端点:
T态: 亚基界面的一组接触使低亲和构象权重较高。去氧条件下T态较占优势,但它仍能结合氧,并非完全关闭。
R态: 氧结合使血红素铁进入卟啉平面并牵动近端组氨酸和F螺旋,改变亚基界面,高亲和构象的权重随之增加。R态也不是简单“变松”或空隙一律增大。
T与R状态平衡随氧分压和变构调节物改变。低氧组织促使氧解离,高氧肺泡促使结合;这是化学平衡和循环血流共同产生的结果,不是血红蛋白识别某个器官后定点投放。
佩鲁茨等人的结构研究揭示了血红蛋白氧合前后的亚基界面变化。MWC两态模型由莫诺、怀曼和尚热提出,用统计状态解释协同性;结构证据与理论模型互相支持,但来源不应混为一次发现。
血红蛋白氧饱和曲线呈S形,肌红蛋白则接近双曲线。表示达到50%饱和所需的氧分压,越低通常代表表观亲和力越高。肺和组织的氧分压分别落在曲线不同区域,使装载与释放得以兼顾。
成人血红蛋白的Hill系数在常见条件下约2.8,但会随pH、温度和调节物改变。Hill系数大于1提示正协同性,它描述曲线陡峭程度,不等于结合位点数,也不能完整确定机制。
BPG和pH对血红蛋白的调节

2,3-BPG在红细胞中浓度较高,优先结合去氧血红蛋白中央腔并稳定T态,从而降低氧亲和力。高海拔暴露数小时到数天后2,3-BPG可升高,帮助组织释氧;剧烈运动的即时释氧则更多受局部pH、CO₂和温度影响。胎儿血红蛋白对2,3-BPG亲和力较低,因此在相同环境中对氧亲和力较高,并非胎儿红细胞中的BPG必然较少。
BPG调节: BPG与β亚基形成静电接触,稳定低亲和构象。不同血红蛋白亚型对BPG响应不同,这种差异参与母体与胎儿之间的氧转移。
Bohr效应: CO₂增加和pH降低会通过质子化与氨基甲酸形成等途径稳定T态,促进氧释放。乳酸与酸化相关但不是唯一原因;组织氧分压、代谢和灌流也不总严格同步。血红蛋白同时运输一部分CO₂并缓冲H⁺,因此气体交换和酸碱平衡彼此联系,却不能压缩成一句“越缺氧越酸”。
为了帮助理解,下方总结如下:
温度和Cl⁻等也会改变氧结合曲线。每个因素的效应取决于测量条件,合并时可能相互影响。血红蛋白因此是研究多配体变构耦合的良好体系,但不应被描述成没有代价的完美方案。
变构效应的进化意义
进化压力推动下的分子优化与多样性
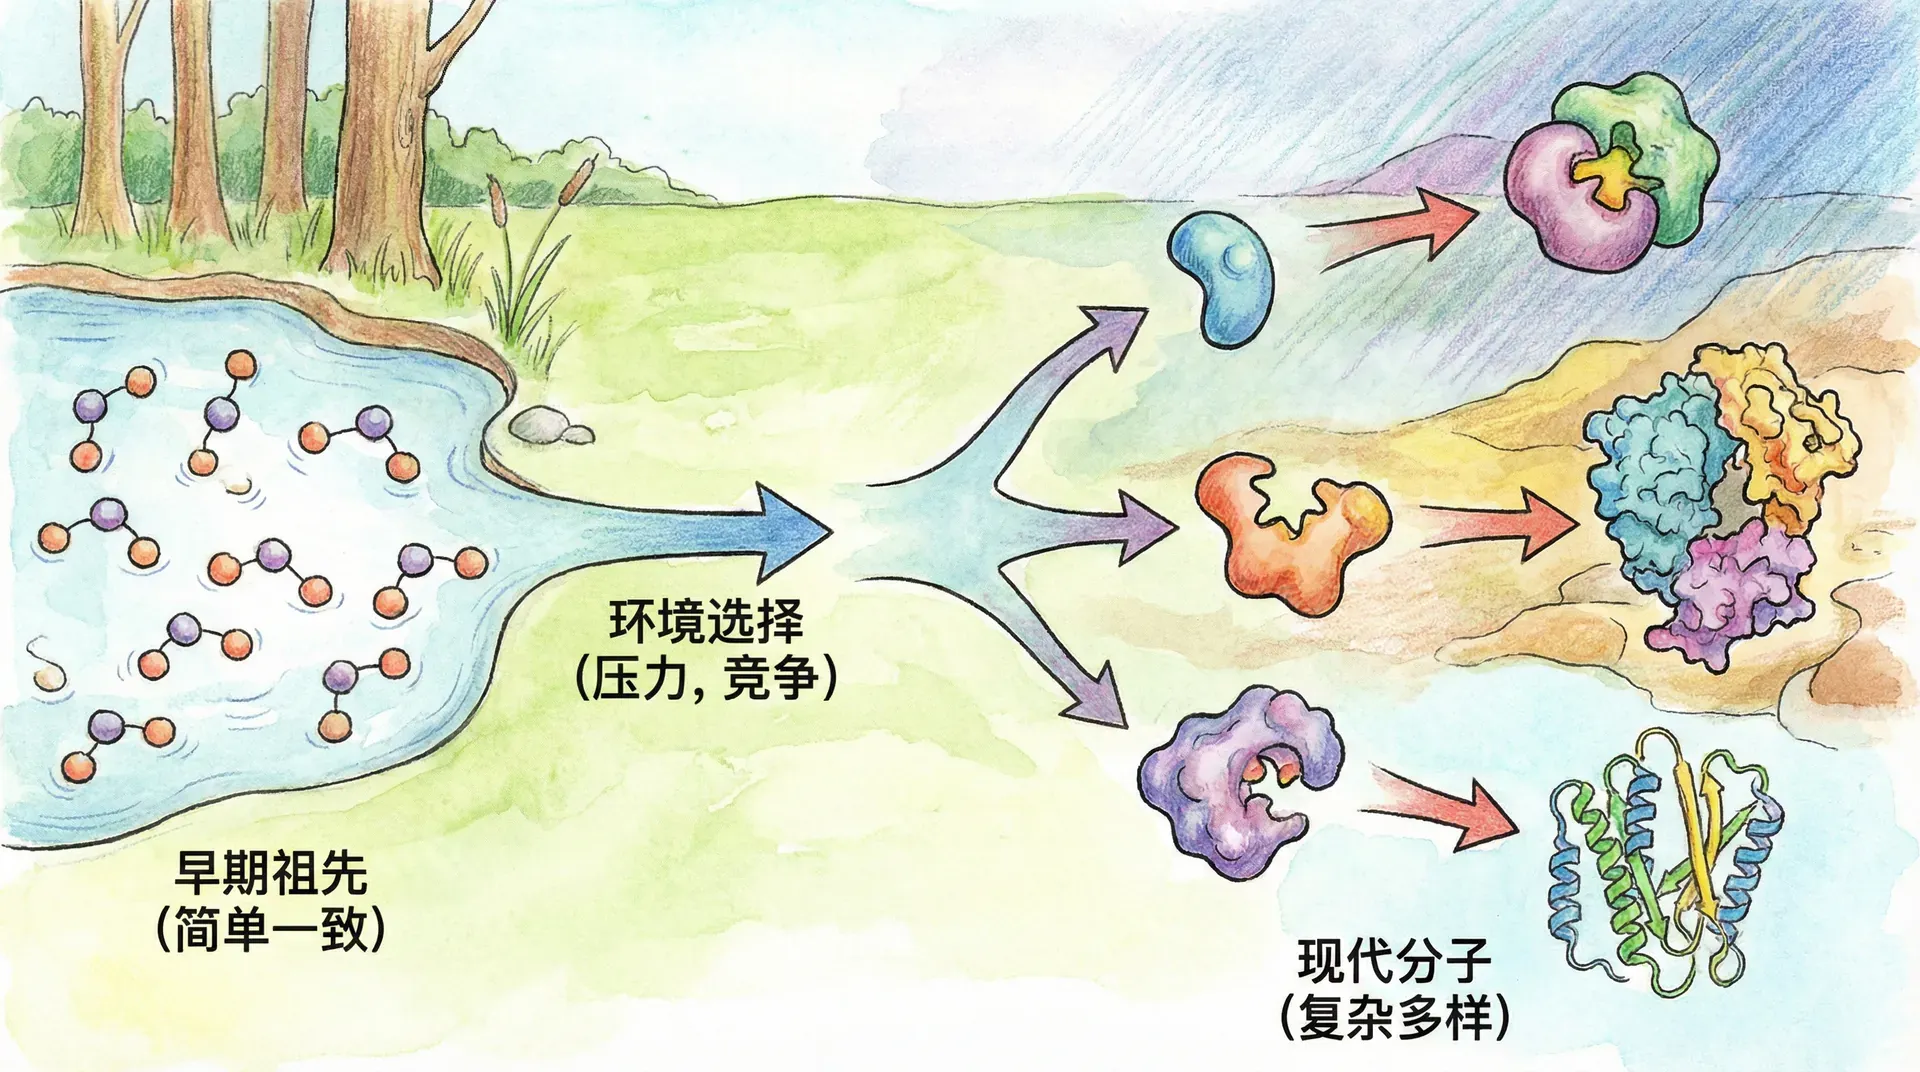
变构位点与耦合网络能被自然选择保留或改变,但并非所有蛋白都需要变构。一个调节机制只有在特定环境中提高繁殖成功率,相关变异才可能在种群中积累;现有结构是历史约束下的可行结果,不是预先朝最优方向设计。比较不同物种时,还要控制亲缘关系,避免把共同祖先留下的特征误判为对相同环境的独立适应。
血红蛋白协同性适合脊椎动物循环系统的氧分压范围,而肌红蛋白的高亲和双曲线适合肌细胞内储存和传递氧。两种蛋白承担不同任务,不能把肌红蛋白视为性能较差的血红蛋白。
总的来看,变构机制让分子具备了:
多个变构位点允许蛋白整合底物、产物、能量状态和修饰信号,但实际输出不一定是“最优”响应。它是各位点自由能耦合、浓度和动力学共同产生的结果。
生命进化过程中,不同生态位的生物发展出独特的变构调节方式,具体包括:
- 深海和极地物种的血红蛋白可在压力、温度和pH响应上出现差异,具体方向随物种生态而变。
- 高原动物的氧运输适应不一定表现为更高血红蛋白亲和力,还可能通过通气、血流、毛细血管或BPG响应调整。
- 极端环境微生物的酶可通过序列和寡聚结构变化保持稳定,同时仍需在催化柔性上作出权衡。
变构机制会扩大一个位点突变对远端功能的影响,也为药物提供区别于活性位点的调节入口。评价工程改造时,应同时测量基础活性、响应曲线、稳定性和非目标效应。
总结
变构是位点间自由能耦合的分子机制,协同性和超敏感性则是可观察的响应特征。三者相关却不等同:变构可不产生陡峭曲线,超敏感性也可由其他网络机制产生。负协同性会让后续位点更难结合,变构抑制剂则可在不占据活性位点的情况下改变输出,说明变构不只等同于激活。
理解这一差别有助于解释血红蛋白输氧、反馈酶和受体调节,也能避免把任何构象变化都当作变构。分析曲线时还应比较无配体基线、最大响应和时间过程,避免只用斜率代表整个系统性能。 机制判断要以可重复证据为准。
- 用多状态模型定量描述配体如何移动构象平衡;
- 用突变、结构和动力学验证位点间耦合路径;
- 比较不同pH、温度和调节物下的响应曲线;
- 在药物或工程应用中同时检验亲和力、选择性和功能输出。
结构生物学、单分子测量和分子动力学计算正在揭示短寿命构象与传播路径。模型的价值在于提出可检验预测,最终仍需实验说明某个状态是否在生理条件下出现并影响功能。时间分辨实验还能区分“先发生构象变化再结合”与“先结合再诱导变化”等路径,避免只凭终点结构安排因果顺序。
药物研究还要确认变构位点在不同亚型中是否保守、调节效应是否可逆,以及细胞中的配体浓度能否达到有效范围。工程改造则需检查增强响应是否降低基础稳定性或扩大噪声。只有结构、能量、动力学与功能证据相互吻合,才能建立可信的变构机制。 对同一蛋白重复测量多个扰动条件,比只展示一组终点结构更能识别真正的耦合。