神经元
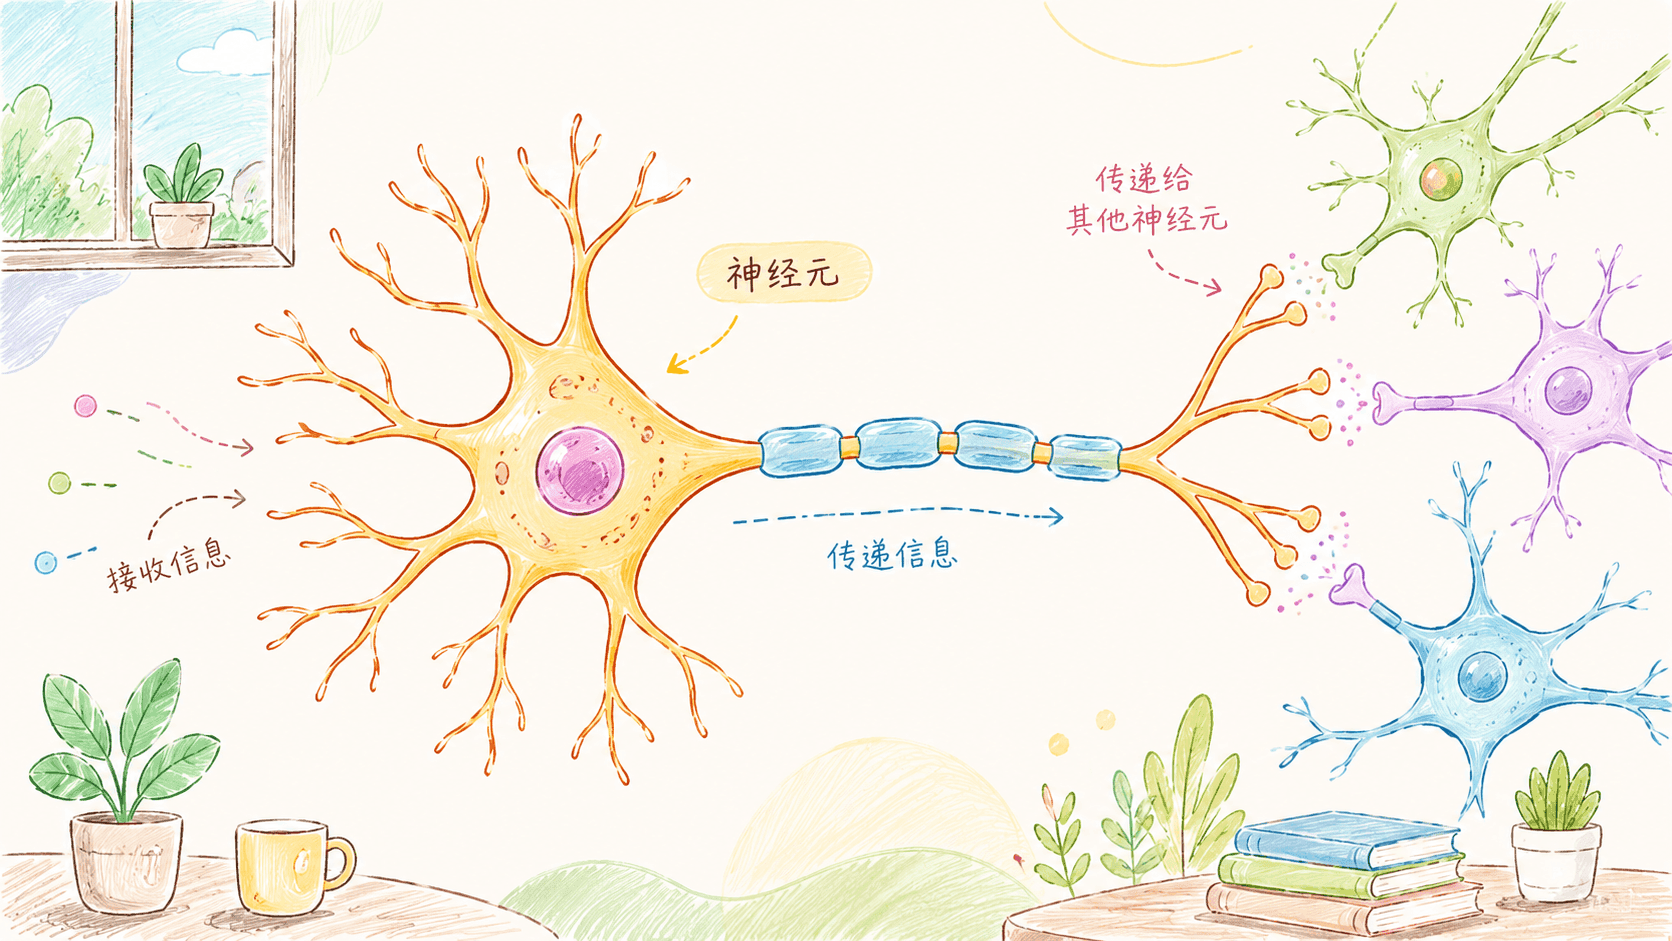
神经元(Neuron)是神经系统不可或缺的基础单元,被誉为“大脑的信息处理器”。每一位人类在出生时,大脑内便拥有数百亿个神经元,这些神经元彼此错综复杂地连接,形成庞大的神经网络。我们的感知、情绪、思考、记忆、决策,乃至每一个身体动作,都离不开神经元之间持续不断的信息传递和协作。
感觉信息可由感受器和感觉神经元转化为神经信号,经过网络处理后参与形成感知和行为。许多神经元沿轴突传导动作电位,并在化学突触释放递质;此外还存在通过缝隙连接传递电流的电突触。不同细胞各有分工,并非每个神经元都直接感知声音、光线或温度。
神经元的信息传递机制解释了许多我们日常生活中的现象:比如为什么重复练习能让某项技能越来越熟练,是因为相关神经回路的连接被反复强化;又比如药物、激素、甚至情绪变化,都是通过影响神经元之间信号传递或神经递质的分泌,进而影响我们的感觉、心情或行为。深入理解神经元的结构与运作,是认识人类大脑、心理及行为机制的基础,也是现代神经科学研究的核心起点。
神经元的基本结构
成年人的全脑约有860亿个神经元,这是估计值,个体和脑区之间存在差异。脑内还有大量胶质细胞和其他细胞,不能把神经元说成只占细胞总数的一小部分。不同类型胶质细胞参与支持代谢、形成髓鞘、维持细胞外环境和调节突触活动,与神经元共同维持神经系统的运作。
神经元和一般身体细胞最大的不同,在于其复杂而高度专化的结构,使其能够敏锐地感知环境、快速传递和处理大量信息。一个典型的神经元主要由以下三大部分组成:细胞体(soma)、树突(dendrites)、轴突(axon),每一部分各司其职、紧密协作,支撑着神经系统的整体功能。
细胞体(Soma)包含细胞核及多种细胞器,承担代谢和蛋白质合成等活动。细胞体与树突也参与整合输入信号。对许多典型神经元而言,当轴突起始段的膜电位变化达到阈值时,就会触发动作电位,而不是由细胞体发出一个有意识的“决定”。
树突(Dendrites)像向外伸展的分支,是许多神经元接收输入的重要部位。树突膜上的受体可响应递质,局部电位变化再参与整合。树突形态、突触数量和受体分布随细胞类型而异,没有每条树突都适用的固定连接数。
轴突(Axon)通常从细胞体附近延伸,可有分支,长度因细胞而异。它将信号传向其他神经元或肌肉、腺体等效应器。部分轴突外有分段的髓鞘,能提高传导效率。轴突终末可通过突触传递信息,并不直接与下一细胞的细胞核相连。
此外,神经元间的连接千变万化:有的神经元树突密集、能够处理复杂信息,有的轴突极长、负责远距离传递指令,有的则参与形成局部微型神经回路。这种结构多样性和高度分化,是大脑具备惊人计算能力和灵活性的根本保障。
0:00/--:--
神经元根据形态和功能可以分为多种类型,常见的有:
- 锥体神经元(pyramidal neuron):通常见于大脑皮层,轴突较长,擅长进行远距离信息传导。
- 星形神经元(stellate neuron):需要注意,“星形神经元”与“星形胶质细胞”是两类性质完全不同的细胞,前者属于神经元,后者属于支持神经系统运作的胶质细胞。
- 篮细胞(basket cell):属于抑制性神经元,在局部神经回路中调节其他神经元的活动。
神经元在结构上的多样性(如树突树冠的分布、轴突的粗细和分支方式)以及丰富的连接模式,使得不同类型的神经信号处理、整合与调控成为可能。
电信号是如何产生的
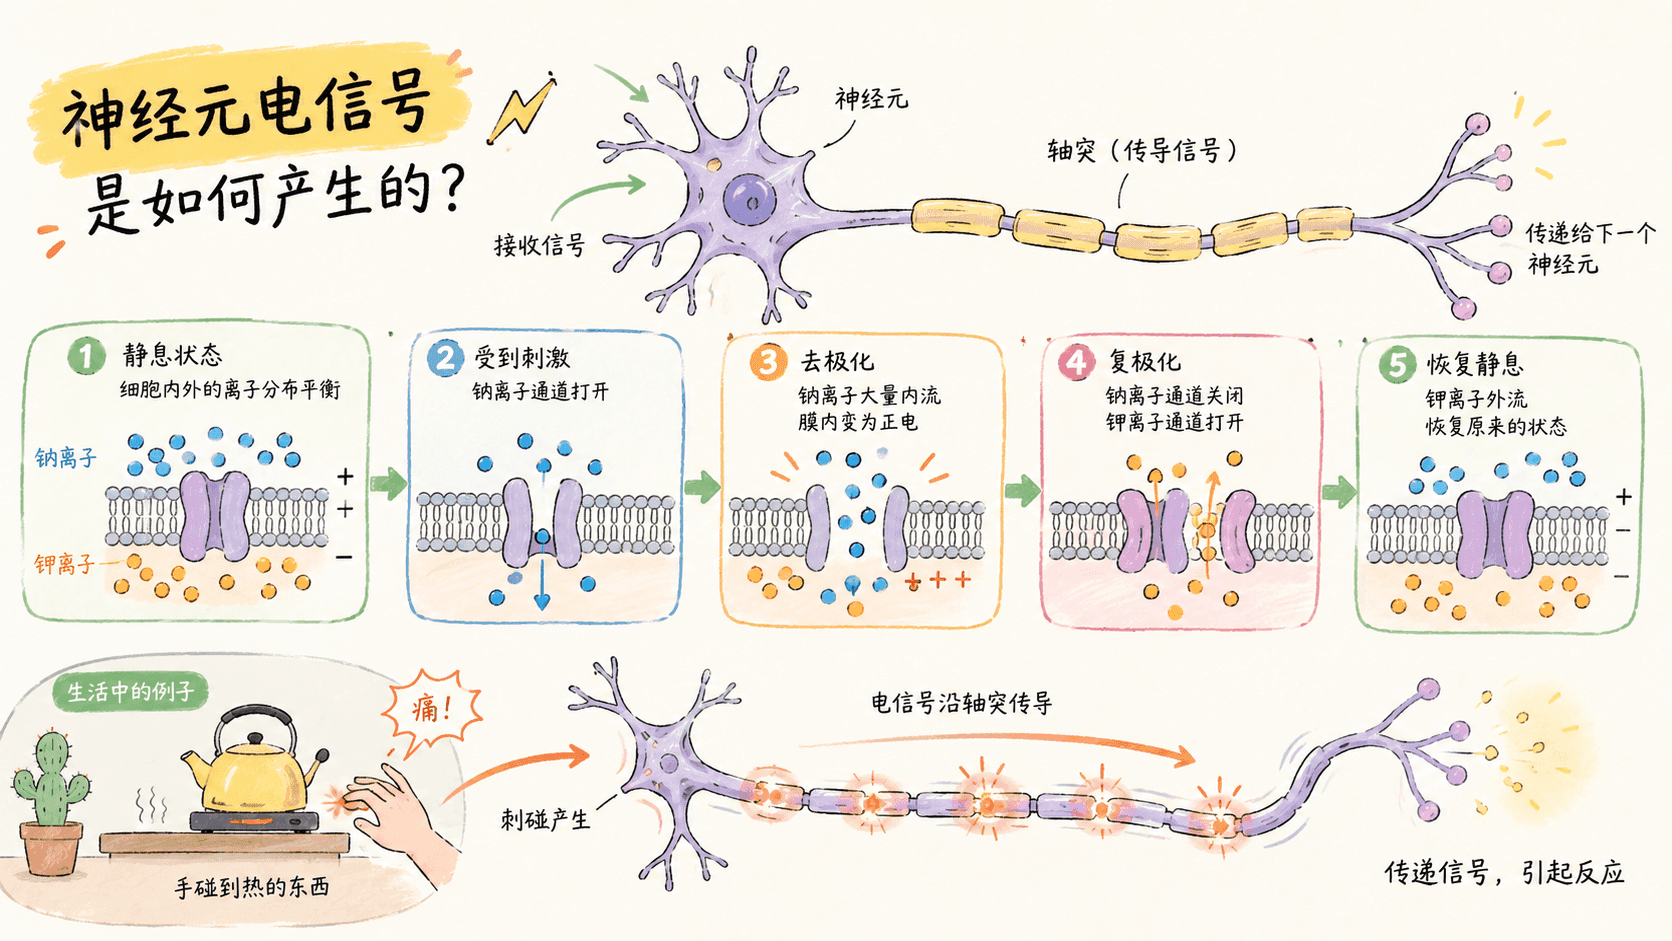
神经元之所以能够进行信息传递,核心就在于一种被称为“动作电位”(Action Potential)的电信号。那么,这个电信号是如何产生和传播的呢?首先,我们需要理解神经元细胞膜内外的“离子浓度差”——这是一切电信号的源头。
静息时,神经元内通常富含钾离子,细胞外富含钠离子。钠钾泵等维持离子浓度差,而膜对不同离子的通透性,尤其对钾离子的通透性,是形成静息电位的重要因素。可用-70毫伏作典型示意,表示细胞内电位低于外侧;实际数值随细胞和状态而变。
当神经元的树突或细胞体受到刺激时,膜电位会发生一系列变化,这一过程可分为以下几个关键步骤:
接收输入:树突或细胞体的膜电位受输入影响,兴奋性和抑制性作用共同参与整合。
达到阈值:在典型神经元中,轴突起始段充分去极化时触发动作电位,-55毫伏只是常用示意值。
快速去极化:电压门控钠通道迅速开放,Na⁺内流使膜电位升高,峰值可用约+30毫伏示意,并不是所有钠通道同时全部打开。
复极化:钠通道失活,钾通道开放、K⁺外流,膜电位回落,并可能短暂低于静息值。
恢复与传导:通道逐渐恢复可激活状态;不应期限制再次放电。局部电流使相邻膜段去极化,让信号沿轴突传播。
在同一轴突及相近条件下,动作电位具有“全或无”的特点:达到阈值时产生完整的电位变化,而不是刺激越强,单次波形就无限变大。刺激强度可以由放电频率等方式编码;放电时序和参与活动的神经元群体也能承载信息。因此,频率编码很重要,却不是神经系统唯一的编码方式。
传导速度与轴突直径、髓鞘及其他条件有关。细的无髓神经纤维通常较慢,某些粗的有髓纤维可达到每秒百米量级,但不能据此给所有有髓和无髓轴突规定一个固定倍数。无髓轴突同样可以传导动作电位。
髓鞘
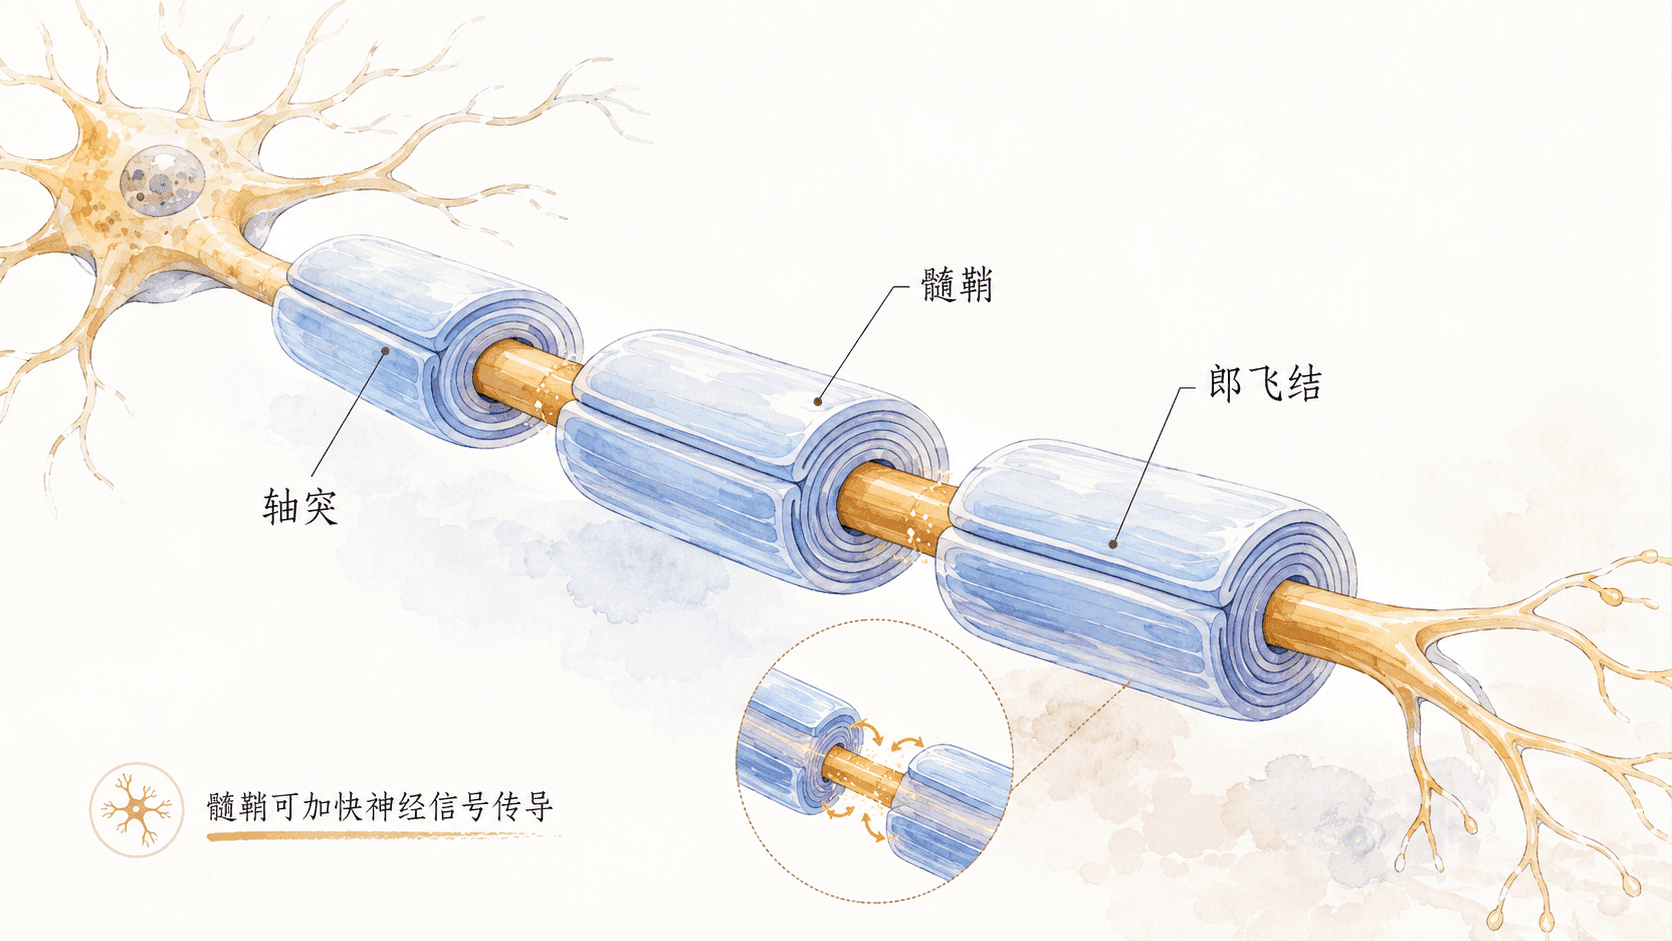
在许多神经元的轴突外部,都会包裹着一层由脂质和蛋白质构成的绝缘鞘,称为“髓鞘”(Myelin Sheath)。髓鞘好比是电线上的绝缘皮层,能有效防止电信号泄露,并提高神经冲动传递的速度。值得注意的是,髓鞘并不是沿轴突连续包裹,而是呈分段结构,每两段髓鞘之间留有一个暴露的空隙,被称为“朗飞结”(Node of Ranvier)。
在有髓轴突上,电流沿髓鞘覆盖的区段传播,动作电位主要在朗飞结处重新产生,看起来像在结间“跳跃”。这种跳跃式传导提高了速度和效率,并不是电信号越过中间空间瞬间移动。
髓鞘的生理意义极为重要,主要包括:
- 中枢神经系统中的髓鞘由少突胶质细胞形成。
- 周围神经系统中的髓鞘由施万细胞形成。
- 髓鞘化在发育期持续推进,不同通路进程不同,成年后也可能继续调整。
- 与前额叶相关的连接发育较久,但不能把25岁设为统一终点,也不能仅用髓鞘化解释青少年的全部行为。
多发性硬化症(MS)是一种累及中枢神经系统的免疫介导疾病,髓鞘和轴突等均可能受损,导致传导减慢或中断。肌肉无力、感觉异常、协调障碍和视力问题等表现,与受累位置及程度有关,不能把病变理解为只损伤绝缘层而绝不影响神经纤维。
下方总结了不同神经纤维髓鞘化状况与传导速度、功能的对应关系:
突触
突触是细胞交流的连接部位。化学突触的两侧膜之间有很窄的突触间隙,递质跨越间隙传递信息;电突触则通过缝隙连接允许电流通过。下面介绍脑内常见的化学突触过程。
动作电位到达轴突终末后,钙离子进入可触发突触囊泡与膜融合,把神经递质释放到间隙。递质与突触后膜上的受体结合,改变细胞活动。结果可能是兴奋、抑制或其他调节,并不保证下一神经元立即产生动作电位。
更精细地说,不同的神经递质与不同的受体结合,会激发截然不同的生理效应,主要包括:
- 谷氨酸(Glutamate):成人脑内主要的兴奋性递质,许多作用有助于突触后细胞去极化。
- GABA(γ-氨基丁酸):成人脑内主要的抑制性递质,通常降低细胞放电的可能性;抑制并不总等同于膜电位进一步变负,具体作用取决于受体及离子条件。
是否产生动作电位,与输入的强弱、位置、时序以及细胞当时的状态有关。兴奋与抑制的整合支持复杂的信息处理,而可塑性还涉及连接效能等随经验发生的变化。
在神经递质完成其信号传递使命后,必须迅速被清除以保证信号的分辨率和神经活动的准确调控。清除机制主要包括:
- 由神经元或胶质细胞通过转运体摄取;
- 被相关酶分解,具体方式因递质而异;
- 扩散离开作用部位。
这些机制确保了神经系统的信号传递既迅速又精确、适时终止,为大脑的复杂活动提供了基础保障。
主要神经递质及其功能
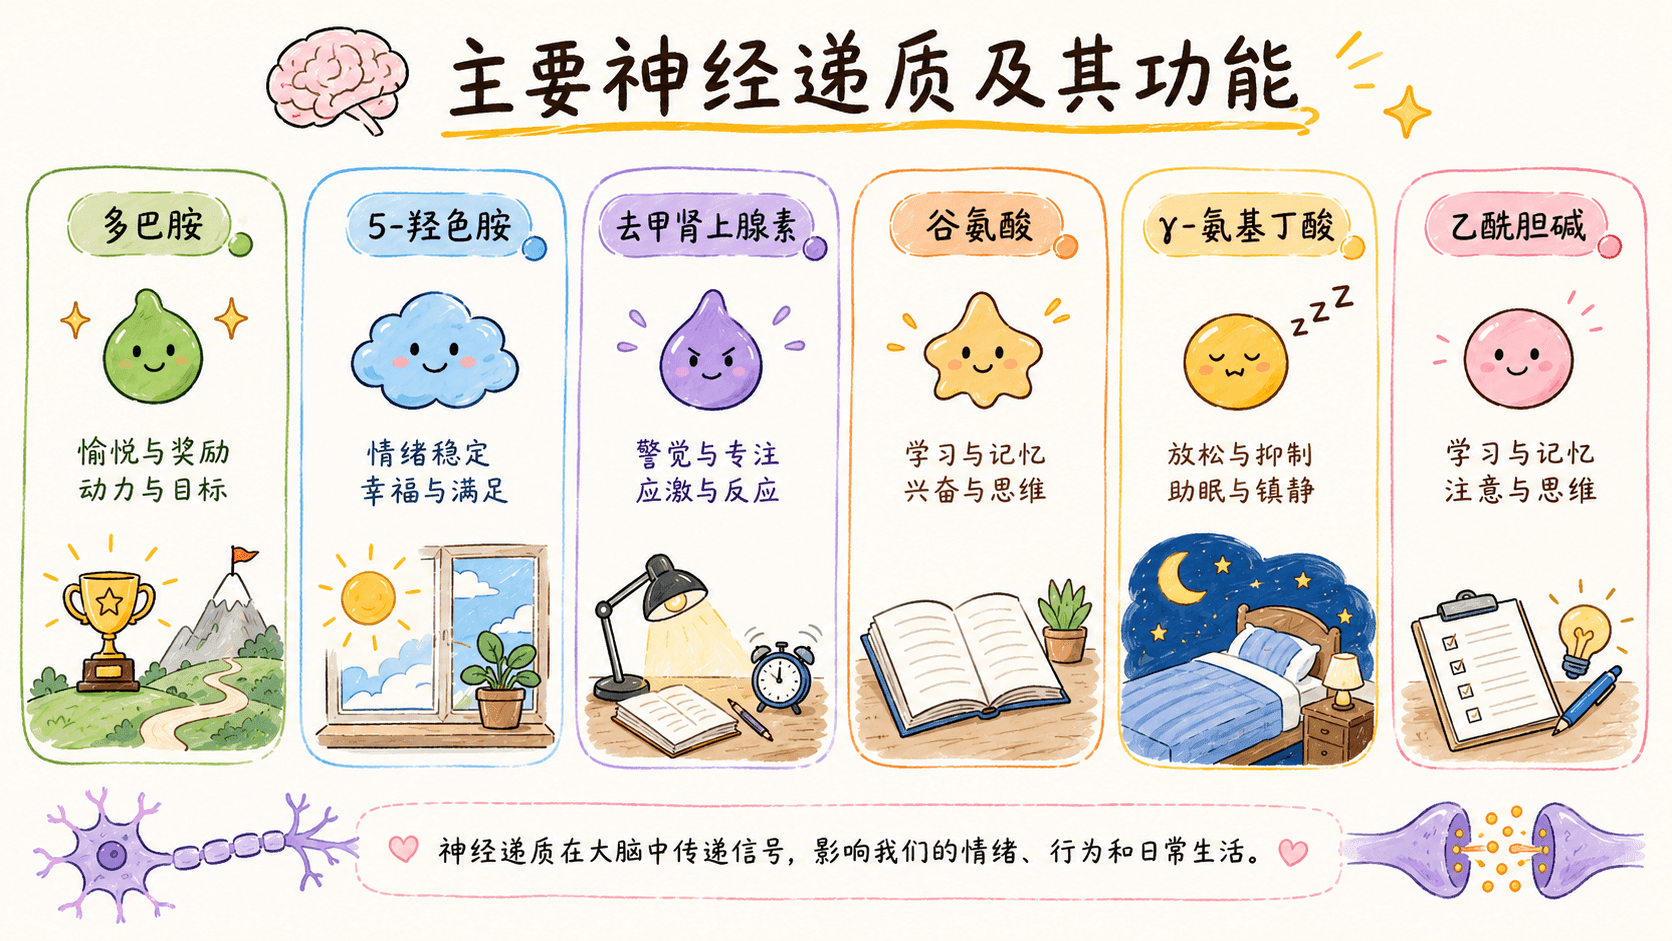
神经系统使用多种化学信使。下面几种递质是理解信号传递、药物作用和疾病机制的常见例子,但没有哪一种能单独决定心理健康。判断其作用需要结合受体、通路和细胞状态。
谷氨酸(Glutamate)是成人脑内主要的兴奋性递质,参与大量快速突触传递。某些突触的长时程增强涉及NMDA和AMPA等受体,但并非所有学习都能归为同一种机制。异常过度的谷氨酸受体激活可参与兴奋性毒性损伤。
GABA(γ-氨基丁酸)通常降低成人脑内神经元放电的可能性,帮助调节网络活动。某些镇静、抗焦虑和抗癫痫药通过增强相关受体作用发挥效果,但不能从焦虑或失眠直接推断“GABA不足”,也不能把药理作用等同于疾病的唯一原因。
多巴胺(Dopamine)参与动机、奖赏学习、动作和认知调节。部分多巴胺神经元的活动反映实际奖励与预期之间的差异,并非每次愉快体验都会统一增加全脑多巴胺。帕金森病的运动症状与黑质—纹状体通路退化密切相关;精神症状涉及特定通路及其他因素,不能简单解释为全脑多巴胺过高。
血清素(Serotonin,5-HT)参与情绪、睡眠、食欲等调节,作用随受体和回路而异。SSRIs抑制血清素再摄取,可帮助部分患者改善抑郁等症状,但抑郁症并不等同于血清素不足,治疗效果也不能证明病因就是缺少这种递质。
乙酰胆碱(Acetylcholine)参与注意、学习和记忆,也在神经肌肉接头传递信号。阿尔茨海默病可累及胆碱能系统,但疾病涉及多种病理变化。胆碱酯酶抑制剂可帮助部分患者缓解症状,并不意味着恢复所有记忆或治愈疾病。
去甲肾上腺素(Norepinephrine)参与觉醒、注意和应激调节,也在周围交感神经活动中发挥作用。其效应与位置和受体有关,不能用一个全身“高低值”解释焦虑、疲劳或注意困难。
认识这些递质时,应同时记住其功能与解释边界:相同的递质可在不同位置发挥不同作用,疾病也很少只有一种化学原因。
0:00/--:--
除上述介绍的主要递质之外,体内还有多种功能各异的神经递质。例如,内啡肽主要在脑内调节对疼痛和快感的感知,与情绪缓解和压力应对有关;组胺则在觉醒、睡眠调节和免疫反应等方面发挥作用,有时也是药物副作用(如嗜睡)的来源。此外,神经肽Y、催产素等分子在进食、社会行为等复杂功能中也各有重要角色,往往作用更加局部和精细。
随着神经科学的发展,不断有新型神经递质和调节物质被发现,这些发现不仅揭示了大脑信号交流的多样性,也帮助我们理解其高度的精细调控。例如,有些递质能调节其他递质的释放,有些则参与长期神经回路的调节。了解这些复杂的生化机制,有助于认识脑健康的多因素基础,也为相关疾病的靶向治疗提供更多可能性。
神经可塑性的分子基础
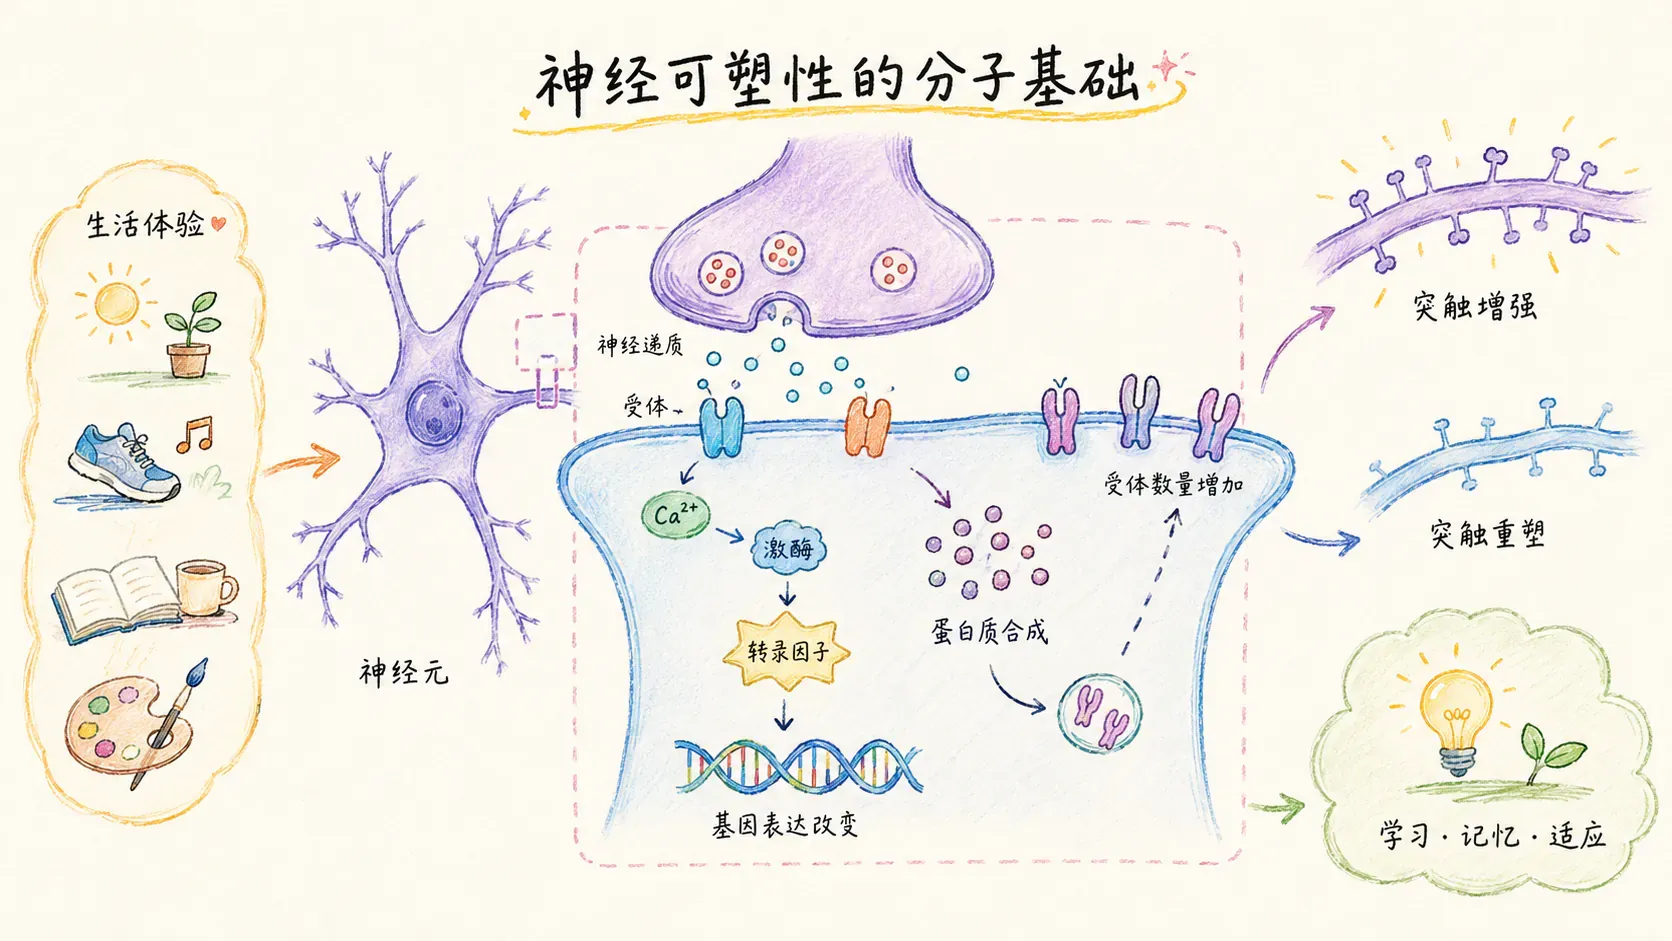
我们所说的“大脑能够改变自己”,其实现机制的核心在于神经可塑性(Neural Plasticity)这一概念。
赫布在1949年提出的学习思想强调相关活动与连接增强的关系。后来常用“一起激活的神经元,连接在一起”来概括这一思想,这句话是便于记忆的转述。
在某些条件下,突触前后活动的关联可以使连接增强。长时程增强(LTP)指突触传递效能持续增加,是研究学习和记忆的重要模型。它的产生依赖活动模式、时序和细胞状态,并非两个神经元只要同时活动就必然增强连接。
LTP帮助研究者理解经验如何影响连接效能,但不是全部学习和记忆的唯一机制。可以从以下角度理解:
- 突触效能可以改变,同样的输入随后可能引起不同强度的反应。
- 某些变化涉及受体数量、功能和突触结构的调整。
- 技能练习会涉及多个回路,熟练程度不能直接换算成某条突触的强度。
- 细胞实验能研究突触变化;常规人脑MRI观察的是较大尺度信号,不能直接看见钢琴家的单个突触变粗。
突触传递效能也可能持续减弱,称为长时程抑制(LTD)。这与突触修剪所指的连接数量减少不同。发育和经验都可能影响连接的保留,但不能把所有遗忘解释为“不用的突触被删除”,也不能把努力程度直接换算成结构变化。
实际上,神经可塑性的分子机制非常复杂,涉及多种受体(诸如NMDA受体、AMPA受体),信号通路,以及突触结构蛋白的变化等内容。不仅仅是突触强度的增强,突触的数量、形态和分布也会因经验和环境刺激而发生可逆性变化。这种高度动态的可塑性,为我们终身学习和适应新环境提供了可能。
学习时,可以把集中突击改成分次复习,合上书尝试复述,再核对遗漏。主动回忆和间隔练习有助于长期保持,但间隔应随材料难度和掌握情况调整。它们的学习效果不能直接当作个体LTP已经增强的测量结果。
练习题
第一题
知识点:神经元的基本结构
以下关于典型神经元结构的描述,哪一项是正确的?
A. 树突负责向其他神经元传出信号,轴突负责接收信号
B. 细胞体是信号传出的出口,轴突是信号整合的中心
C. 树突负责接收来自其他神经元的信号,轴突负责将信号向远端传递
D. 轴突终末直接与下一个神经元的细胞核相连,形成直接电气连接
第二题
知识点:动作电位与“全或无定律”
以下关于动作电位的描述,哪一项是正确的?
A. 动作电位的幅度随刺激强度的增加而增大,强刺激产生更大的电位变化
B. 神经元通过调整单次动作电位的幅度来区分信号强弱
C. 相近条件下动作电位具有全或无特性,放电频率是编码信息的一种方式
D. 动作电位只能沿轴突单向传导,如果没有髓鞘则无法传导
第三题
知识点:髓鞘的功能与多发性硬化症
多发性硬化症中,哪种病理变化会直接干扰神经信号传导?
A. 大脑神经元细胞体大量死亡,导致信号无法产生
B. 中枢神经系统的髓鞘及轴突等受免疫相关损伤,使传导减慢或中断
C. 突触间隙中的神经递质被完全耗竭,信号无法跨越突触传递
D. 脑脊液循环障碍,导致大脑营养供应不足
第四题
知识点:突触传递与神经递质
以下关于典型化学突触传递的描述,顺序正确的是?
A. 神经递质释放 → 动作电位到达轴突终末 → 突触囊泡与膜融合 → 受体结合
B. 动作电位到达终末 → 钙内流触发囊泡融合 → 递质释放 → 与受体结合影响突触后活动
C. 树突受体结合神经递质 → 突触囊泡释放 → 动作电位产生 → 信号传向下一神经元
D. 动作电位到达树突 → 直接跨越突触间隙 → 在下一神经元产生新动作电位
第五题
知识点:赫布定律与神经可塑性
若目标是较长时间记住所学内容,以下哪种安排更合理?
A. 把同一段内容连续阅读20遍,每次间隔不超过5分钟
B. 阅读学习内容后立即合上书本,用自己的话尝试复述,并在1天后、1周后各复习一次
C. 将所有学习任务集中在考试前一晚完成,保证单次学习时间足够长
D. 只在感兴趣时学习,不感兴趣时不强迫,以免产生负面联想