神经元如何高速传递信息
小林听见身后自行车铃响,侧身让开;几乎同时,她还要稳住手里的咖啡。这个看似平常的瞬间,把神经系统的难题暴露得很清楚:感受器、脊髓和大脑要在极短时间内交换信息,既不能漏掉危险,也不能让每一点风吹草动都触发动作。本章沿着这一次“听见—判断—避让”的连续场景,追踪一条信息怎样赶路、怎样交接、怎样被整合,最后又怎样被清除并准备下一轮。
这里的“高速”不是单一速度纪录。轴突负责把动作电位送到远处;突触负责把电信号转成可被下一个细胞识别的化学信号;而神经元还要把来自多处、彼此矛盾的输入整合成一次恰当的输出。快、准、可调,三者缺一不可。
一次避让里的信息接力
当铃声进入耳朵,听觉通路把变化转成神经冲动;当小林准备侧身,运动系统又要把指令送到肌肉。长距离路段上,动作电位沿轴突传播;两细胞相遇处,则要在突触完成一次“交接”。因此,神经系统并不是把一根电线拉到终点,而是把许多可靠的短程和长程环节串成网络。
可以把它理解为接力赛:跑道上的选手要尽量快,交棒区却要足够清楚,保证棒交给正确的人。只追求跑道速度而忽略交棒,信息会误入歧途;只追求交棒精细而让跑道太慢,避让动作便可能来不及发生。
动作电位在同一条轴突上以“全或无”的形式再生传播;突触后的电位则通常是大小可变的局部信号。前者适合远距离保真传送,后者适合在细胞附近比较、加权和筛选输入。
轴突上的快速通道
小林的运动指令并非在整根轴突膜上处处重新点燃。许多较粗、被髓鞘包裹的轴突把离子交换集中在相邻髓鞘之间的兰飞结;电流在髓鞘下快速扩散,到下一个结点再把动作电位“补满”。这叫跳跃式传导。髓鞘的作用不是替神经元凭空制造能量,而是减少电流漏失,并把高成本的离子交换限制在较小的膜区域。
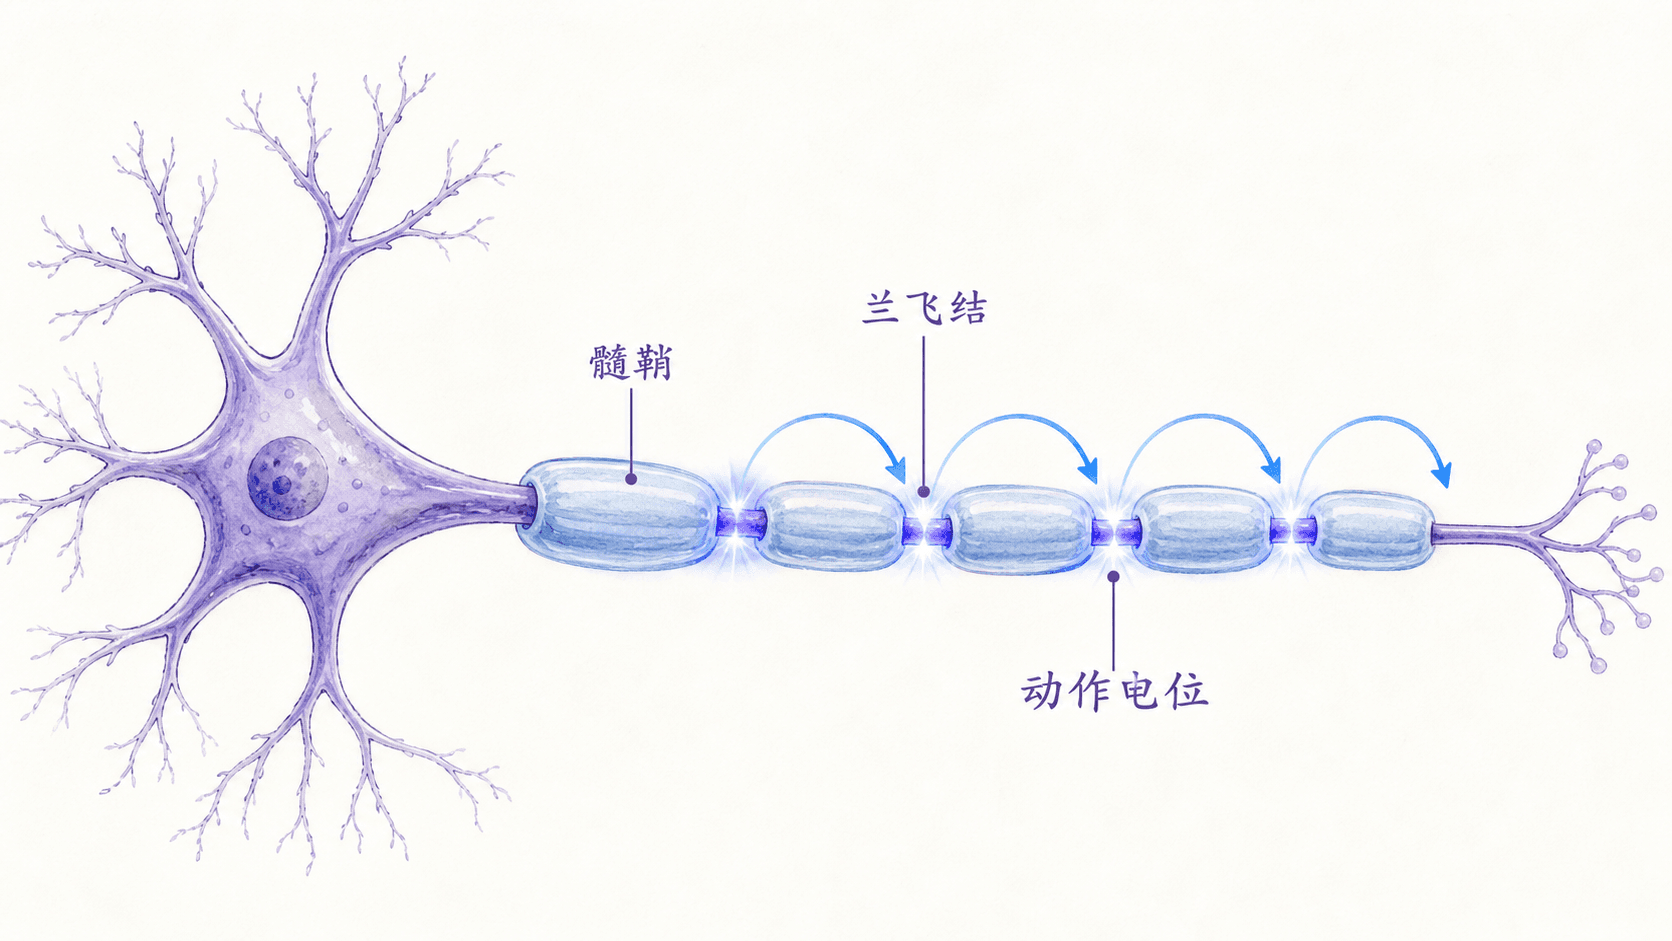
轴突直径同样重要:在其他条件相近时,更粗的轴突内部电阻更低,局部电流更容易推到前方。身体不能无限增粗所有神经纤维,于是“适当直径 + 髓鞘”的组合成为兼顾速度、空间和能耗的方案。并非每条轴突都必须有髓鞘;速度需求、线路长度和功能成本共同决定了设计。
下面的概念实验允许你改变几项线路条件。它不用于预测某个人或某条真实神经的具体传导速度,目的是看清哪些结构会让信号更容易抵达下一个结点。
突触把电信号交给下一个细胞
动作电位抵达轴突末梢后,并不会直接穿过细胞间隙。末梢膜去极化先打开电压门控钙通道;钙离子进入末梢,触发已经停靠的突触囊泡与膜融合;囊泡内的神经递质被释放到突触间隙,并和突触后膜上的受体结合。受体把这段化学信息重新翻译成离子流或细胞内信号。
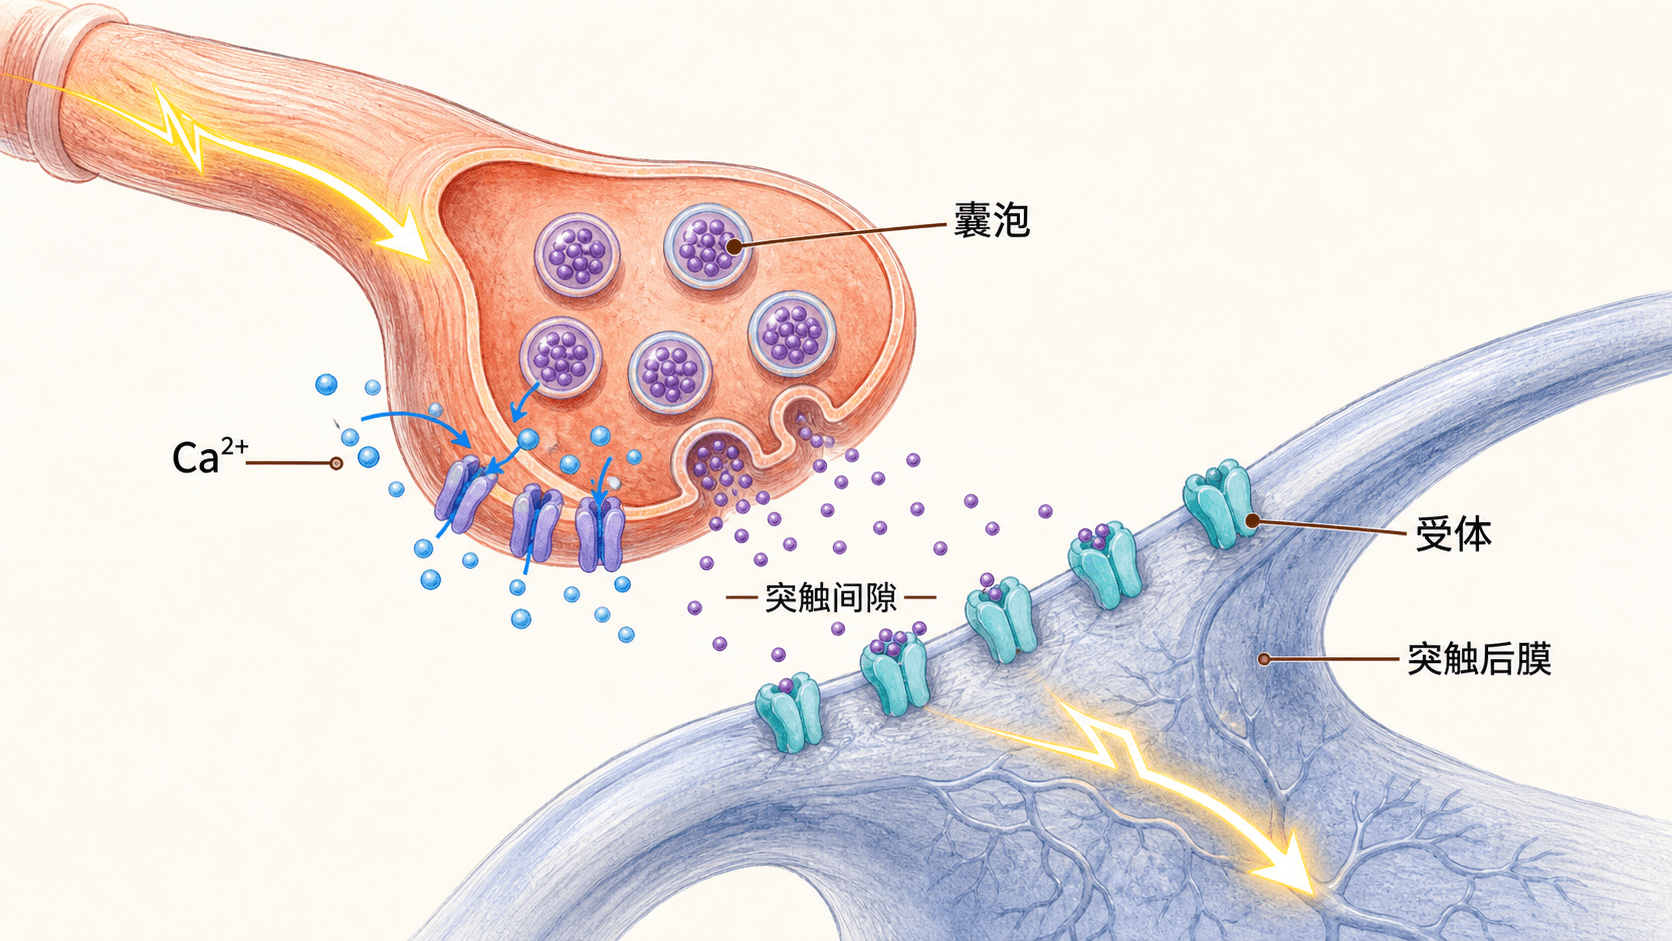
化学突触的“交接”会带来短暂延迟,通常在毫秒量级;这不是缺点,而是给了网络选择受体、放大或压低信号、以及改变连接强度的空间。少数电突触通过缝隙连接让离子电流直接在细胞间通过,延迟更短,适合需要高度同步的某些回路;但在哺乳动物神经系统中,化学突触更常见,也更容易实现灵活调节。
把顺序排对,再看每一步缺失时会发生什么。注意钙离子是“释放开关”,不是递质本身;受体响应发生在递质到达之后。
神经元不是被动接收器
侧身避让不能由一只突触独自决定。一个神经元常同时接收很多输入:有些让膜电位更接近放电阈值,另一些让它远离阈值。输入到达的时间、位置以及强弱都会影响结果。短时间内连续到达的同类输入可以形成时间求和;来自不同突触、在相近时刻汇集的输入可以形成空间求和。
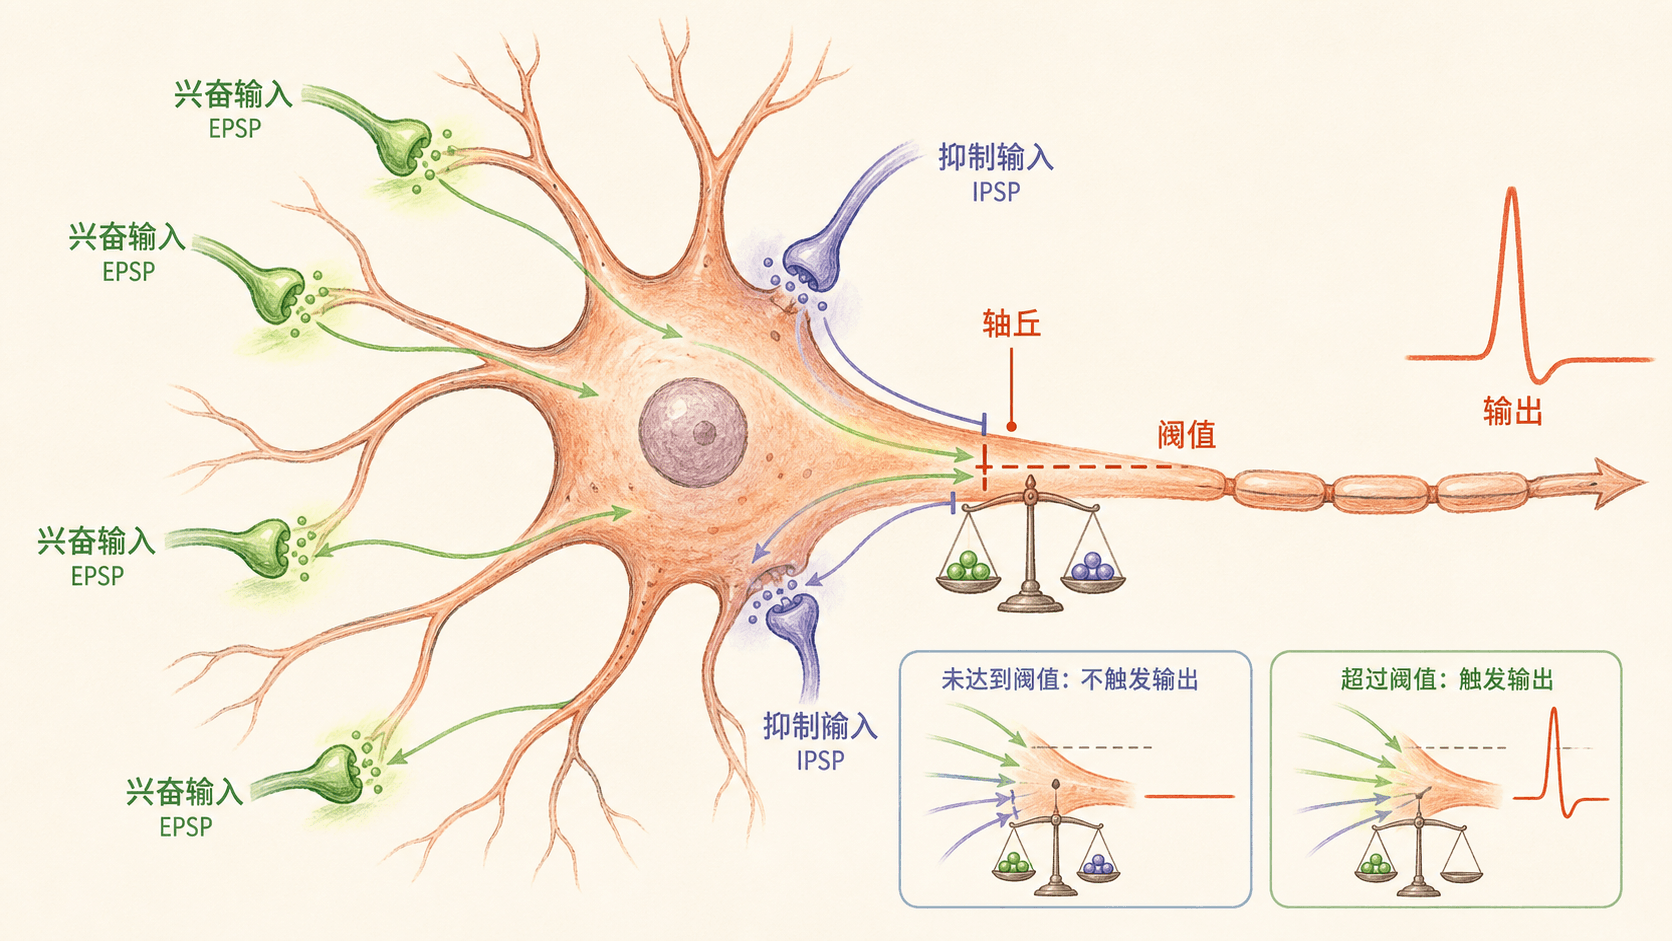
关键并非把所有信号机械相加。越靠近轴丘和初始段的输入,往往越有机会影响动作电位启动;抑制性输入既可能让膜电位更负,也可能通过增加膜导通性“分流”兴奋电流。于是,同样数量的兴奋输入,放在不同位置、安排在不同时间,结局可以不同。
以小林为例,铃声和前方车辆的视觉变化都在推高“需要避让”的证据;但她脚下地面湿滑、手中咖啡很满所对应的其他感觉与运动反馈,会改变最终动作的力度和时机。真实大脑远比模型复杂,但“多来源输入先整合、跨阈值才输出”的逻辑,是理解神经元决策的起点。
兴奋不等于“好”,抑制也不等于“坏”。它们描述的是对目标神经元放电概率的即时影响。精准动作、稳定感知和防止异常同步活动,都依赖两者随场景动态平衡。
试着用不同时间点组合输入,观察相同的兴奋数量为何可能得到不同结局。这个互动采用的是教学用概念模型,曲线用来表达趋势,不代表临床检测结果。
受体决定响应的节奏
同一种递质到达不同受体,后果可能不同。离子型受体本身就是配体门控离子通道:递质结合后,离子通道迅速开闭,适合需要毫秒级更新的快速信号。代谢型受体通常借助 G 蛋白和第二信使影响离子通道、酶活性或细胞状态,启动较慢,但作用范围更广、持续时间也可能更长。
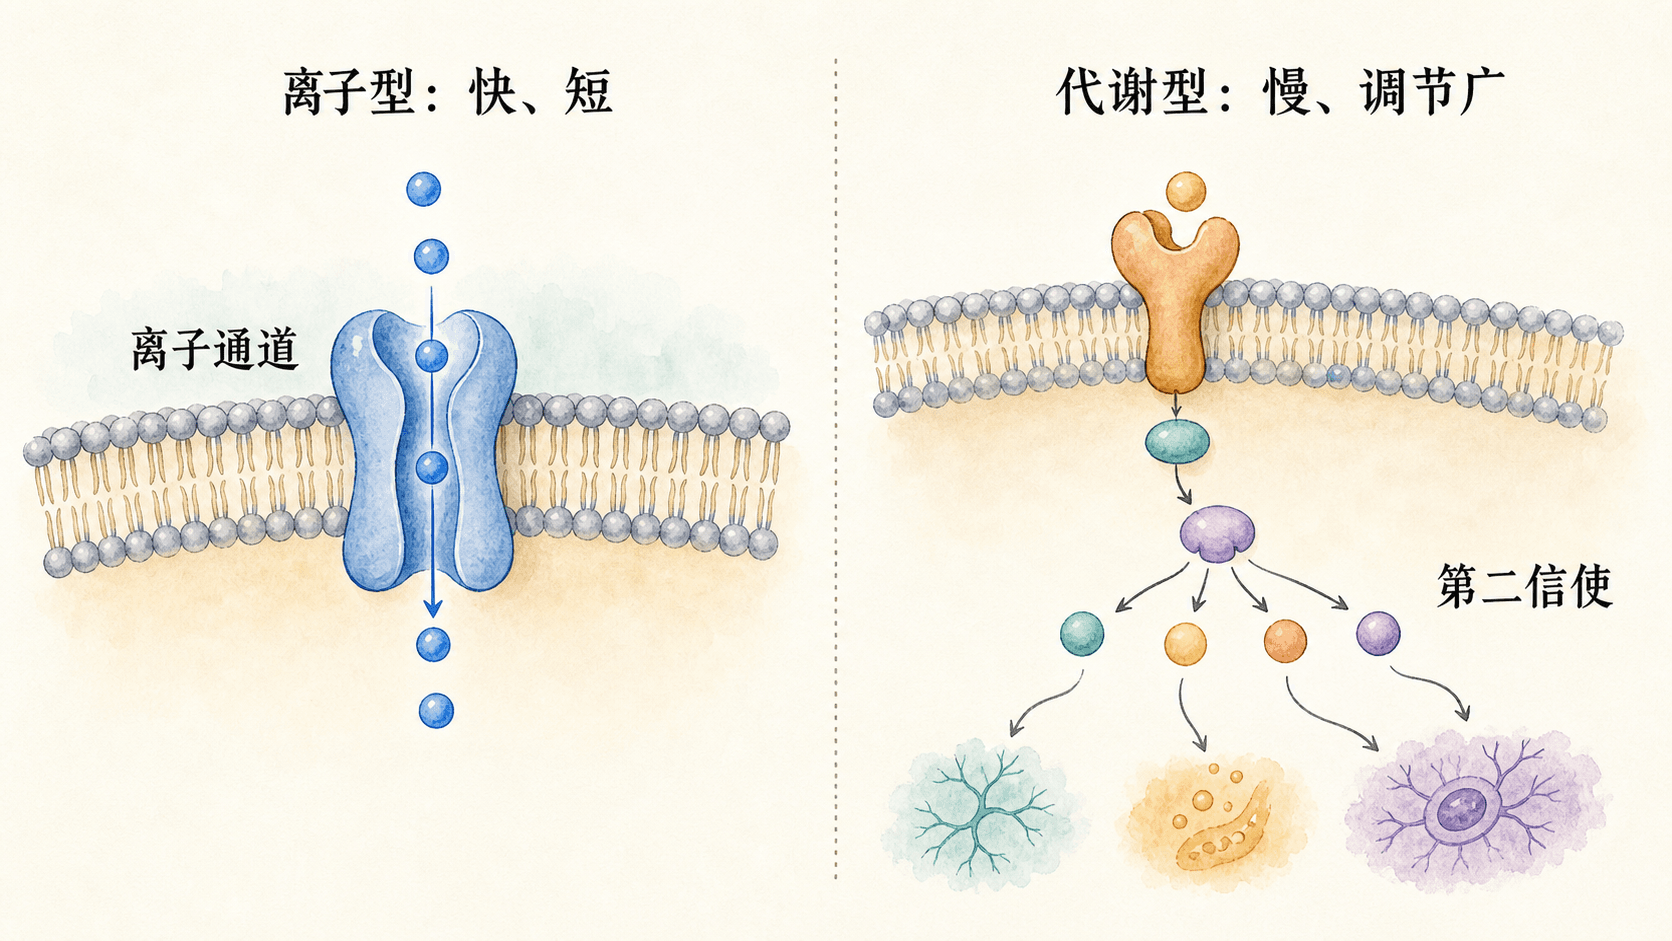
这并不是“快的一定重要、慢的一定次要”的等级关系。就像小林避让时,瞬时的听觉和肌肉控制需要快速通道;而疲劳、警觉程度、疼痛和注意力对整个回路的影响,则常常需要更缓慢、更广泛的调节。一个回路把两类受体配合起来,才能既有即时反应,又能根据情境调整增益。
信号结束也是信息的一部分
如果递质释放后一直留在突触间隙,小林的“让开”指令会像卡住的按键一样持续。信号必须有明确的终点:有些递质被突触前转运体重新摄取,有些被邻近胶质细胞带走,有些被酶分解。囊泡膜也会被回收,重新装填递质,准备下一次释放。
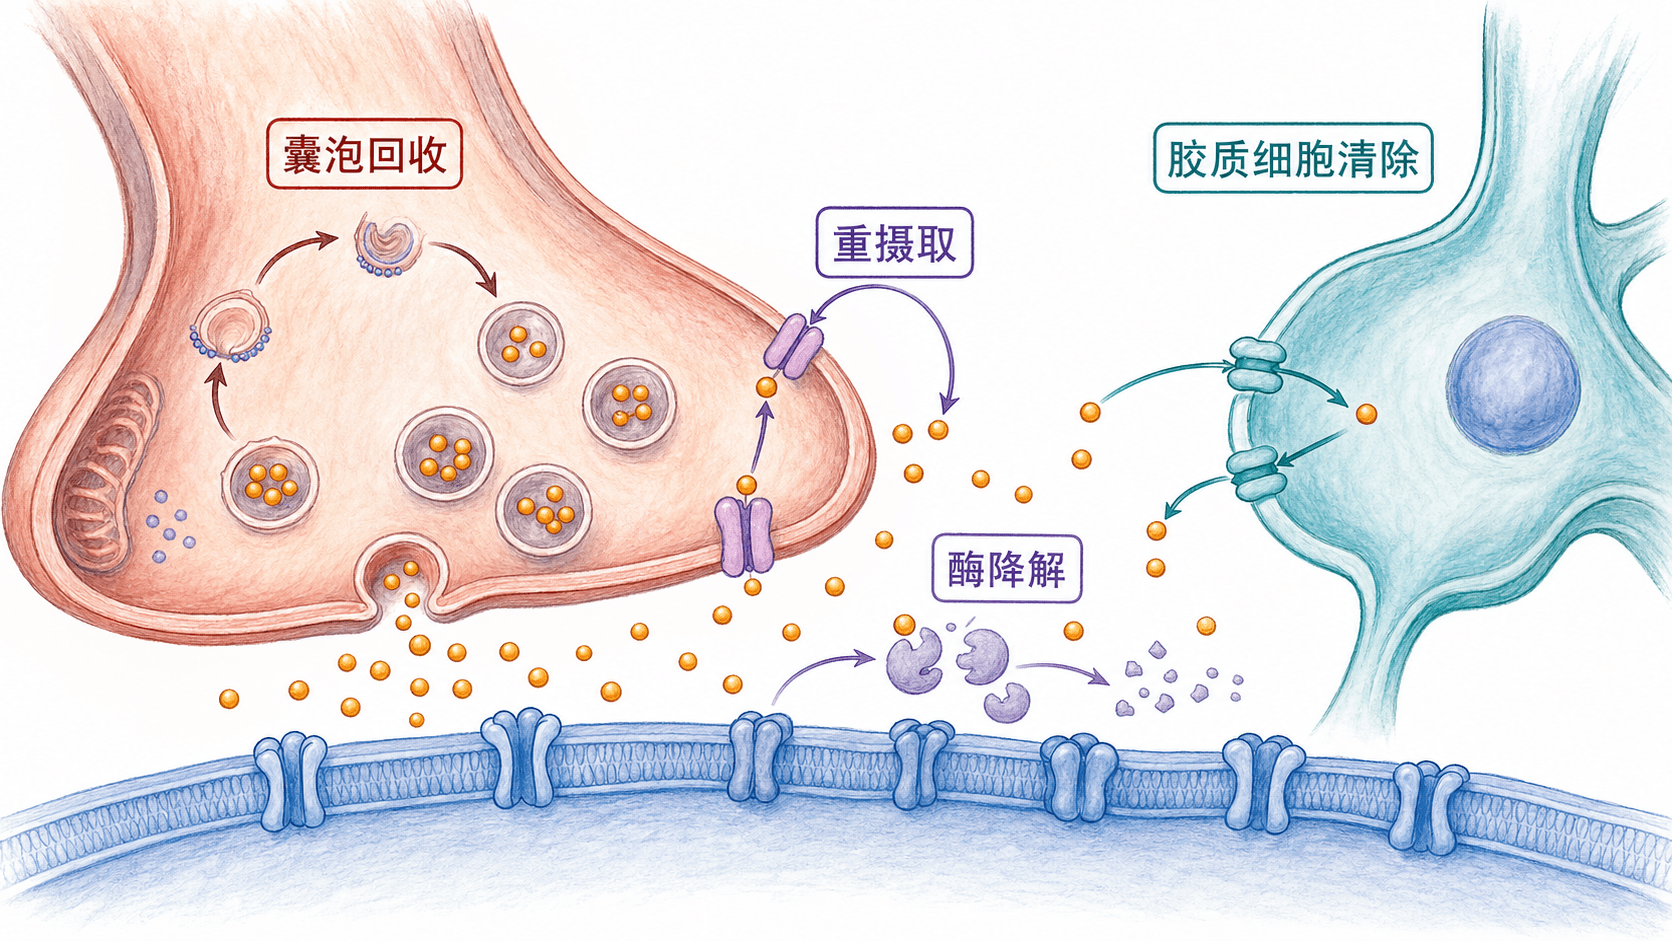
终止机制并非只负责“收尾”,它直接影响信号持续多久、邻近受体能接收到多少递质,以及下一次传递能否稳定发生。药物研究中常见的靶点也在这些步骤上,例如改变受体结合、递质释放或转运体工作。理解这一点有助于看懂药物为何会改变感受或行为,但任何药物使用与停用都应由合格的医疗专业人员评估。
神经元高速通信的可靠性来自完整闭环:动作电位沿轴突传播,钙离子触发囊泡释放,受体把信息转成细胞反应,多路输入在阈值附近整合,清除与回收让系统及时复位。把“结束”纳入模型,才能解释神经系统为什么既能连续工作,又不至于让每个信号无限延长。
用这个框架分析真实问题
回到开头的场景:小林的避让并不是由某个“发现危险”的单一细胞完成,而是无数次局部接力的结果。遇到下面的问题时,可以按相同框架追问:信息在哪一段传播慢了?在何处交接失败?兴奋与抑制是否失衡?受体的响应节奏是否被改变?还是清除与回收出了问题?
先区分问题发生在同一神经元内部,还是发生在神经元之间。前者优先考虑轴突直径、髓鞘和离子通道;后者优先考虑囊泡、钙离子、递质和受体。
再问它影响的是速度、强度还是持续时间。速度常与传导和突触延迟有关,强度常与输入整合和受体数量有关,持续时间则常要查看清除、重摄取和调质机制。
最后把现象放回回路。单个突触的变化未必决定行为,只有它改变了哪些细胞能在什么时刻跨过阈值,才会真正影响感知和动作。
自测: 为什么说髓鞘能提高传导效率,却不等于让动作电位在髓鞘下“消失”?
1
动作电位到达化学突触前末梢后,最直接触发囊泡融合的事件是什么?
2
只要兴奋性输入的数量不变,神经元是否放电就不会受输入时间和位置影响。