神经细胞如何传递信息
手指碰到烫杯后迅速缩回,表面看只是一个动作,背后却是一条极短时间内完成的“接力路线”:皮肤把热刺激换成电信号,信号沿神经纤维传入脊髓,在突触处交给下一批细胞,再经运动神经元驱动肌肉收缩。本章就沿着这一次缩手,理解神经系统如何把感觉变成行动。
神经元并不是像金属导线那样把一股电流原封不动送到底。它在轴突上反复再生电信号;在多数典型化学突触处,电信号会转换为化学信号,再影响下一细胞的电状态。这种“电—化学—电”的转换让信息可以被选择、整合和调节;此外还存在直接传递电流的电突触。
从缩手反射找到信号路线
先把一次真实的经历定格:小林端起热水杯,指尖感到灼热,手很快松开杯子。皮肤中的感觉末梢先把温度和疼痛相关的刺激转成局部电变化;感觉神经元把达到阈值的信号送入脊髓;中间神经元参与连接和整合;运动神经元再让前臂肌肉收缩。大脑也会收到信息并产生清晰的疼痛体验,但快速缩手不必等待有意识的判断完成。
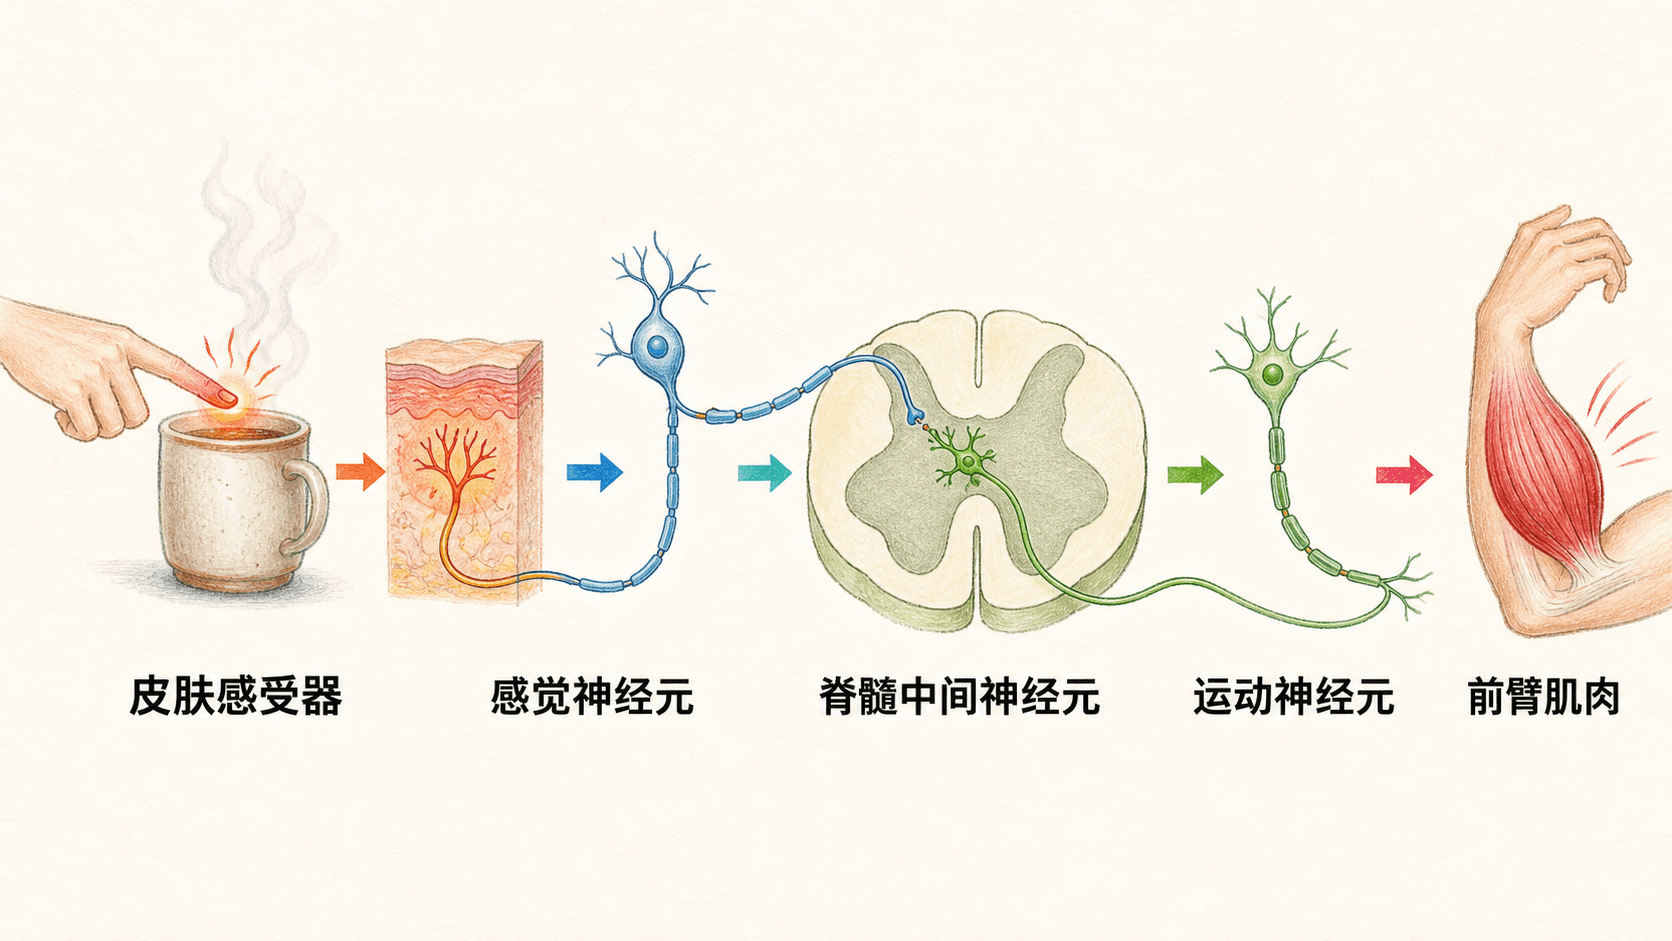
这条路线帮助我们区分两个常被混在一起的问题:信号如何在一个细胞内走远,以及它如何跨过细胞之间的缝隙。前者主要依靠动作电位在轴突上的传播,后者主要依靠突触处的递质释放。两者缺一不可。
神经元先搭好可用的通路
神经元的形状适合分工:树突像接收面,接住来自其他细胞的输入;胞体负责整合代谢与输入;轴突是远距离传输的主干;末梢则与下一细胞形成突触。真正让它们能工作的是一层选择性细胞膜:它让少数离子能在合适的时刻通过,也把绝大多数离子挡在外面。
在安静时,神经元内部相对外部通常为负,常见量级约为 −70 毫伏,但不同细胞并不完全相同。这个静息电位并非由“细胞里有很多负蛋白”单独造成,而是由离子浓度差与膜对各种离子的不同通透性共同决定;静息时钾离子的通透性通常较高,因此钾的平衡趋势尤为重要。钠钾泵长期维持细胞外钠多、细胞内钾多的浓度梯度,每轮消耗 ATP,运出 3 个钠离子并运入 2 个钾离子。它像长期维护员,为快速信号保留条件,而不是每个动作电位刚结束就瞬间“把一切泵回原位”。
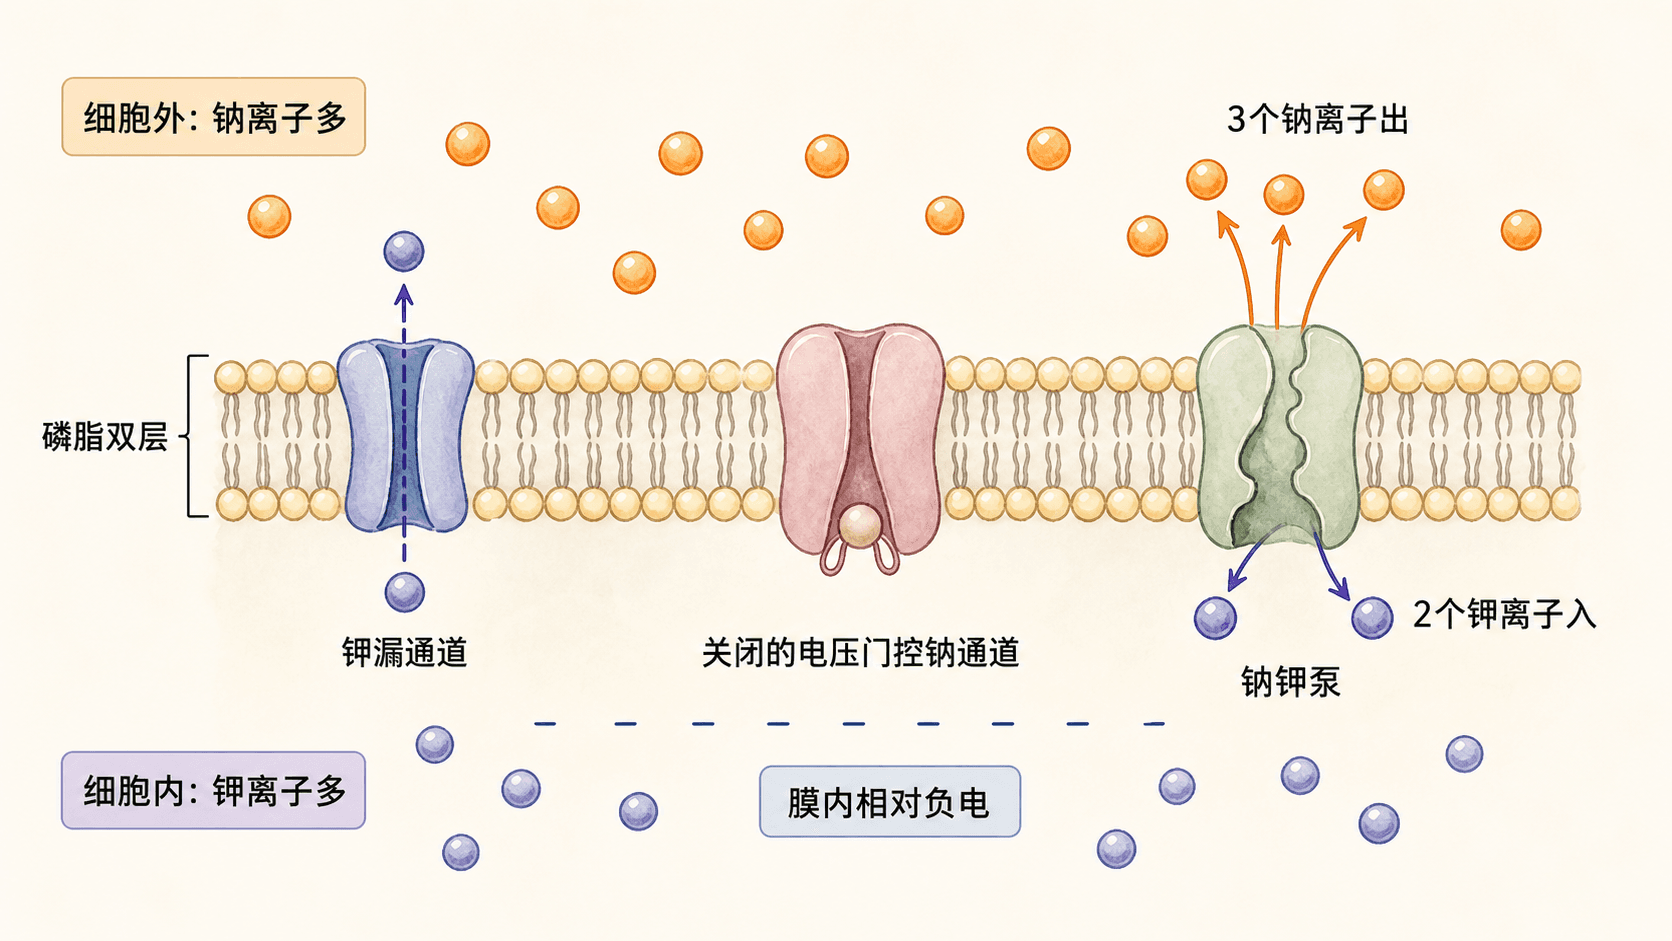
把膜想成一扇带多种门的边界会更准确:浓度梯度推动离子从多处往少处扩散,电梯度又让异性电荷相吸、同性电荷相斥。两股力量合称电化学梯度。钠通道一旦开放,钠离子通常强烈趋向进入细胞;钾通道开放时,钾离子通常趋向外流。究竟有多少离子移动,取决于哪类门在何时打开,而不是离子“想不想移动”。
不要把静息电位理解成神经元“没有活动”。它是一个持续维持的工作状态:通道在选择性漏流,泵在长期维持梯度,细胞一直消耗能量来保持随时可响应的条件。
为了把这种关系从名词变成判断,可以先调节两类通道,再观察模型中电位如何变化。这个互动是概念模型:真实膜电位还会受氯离子、钙离子、膜电容与细胞几何结构,以及许多通道类型影响。
阈值把许多输入变成一个脉冲
回到小林的指尖。热刺激引起的局部电位并不是非黑即白:刺激更强或更多输入同时到达时,局部去极化可以更大。可是在触发区,输入必须把膜电位推到阈值附近,足够多的电压门控钠通道才会快速打开,形成正反馈式的去极化;对典型多极神经元而言,这一触发区常在轴突起始段。达到阈值后产生的动作电位近似全或无:同一根轴突中单次脉冲的幅度基本不靠“加大音量”传递强弱。
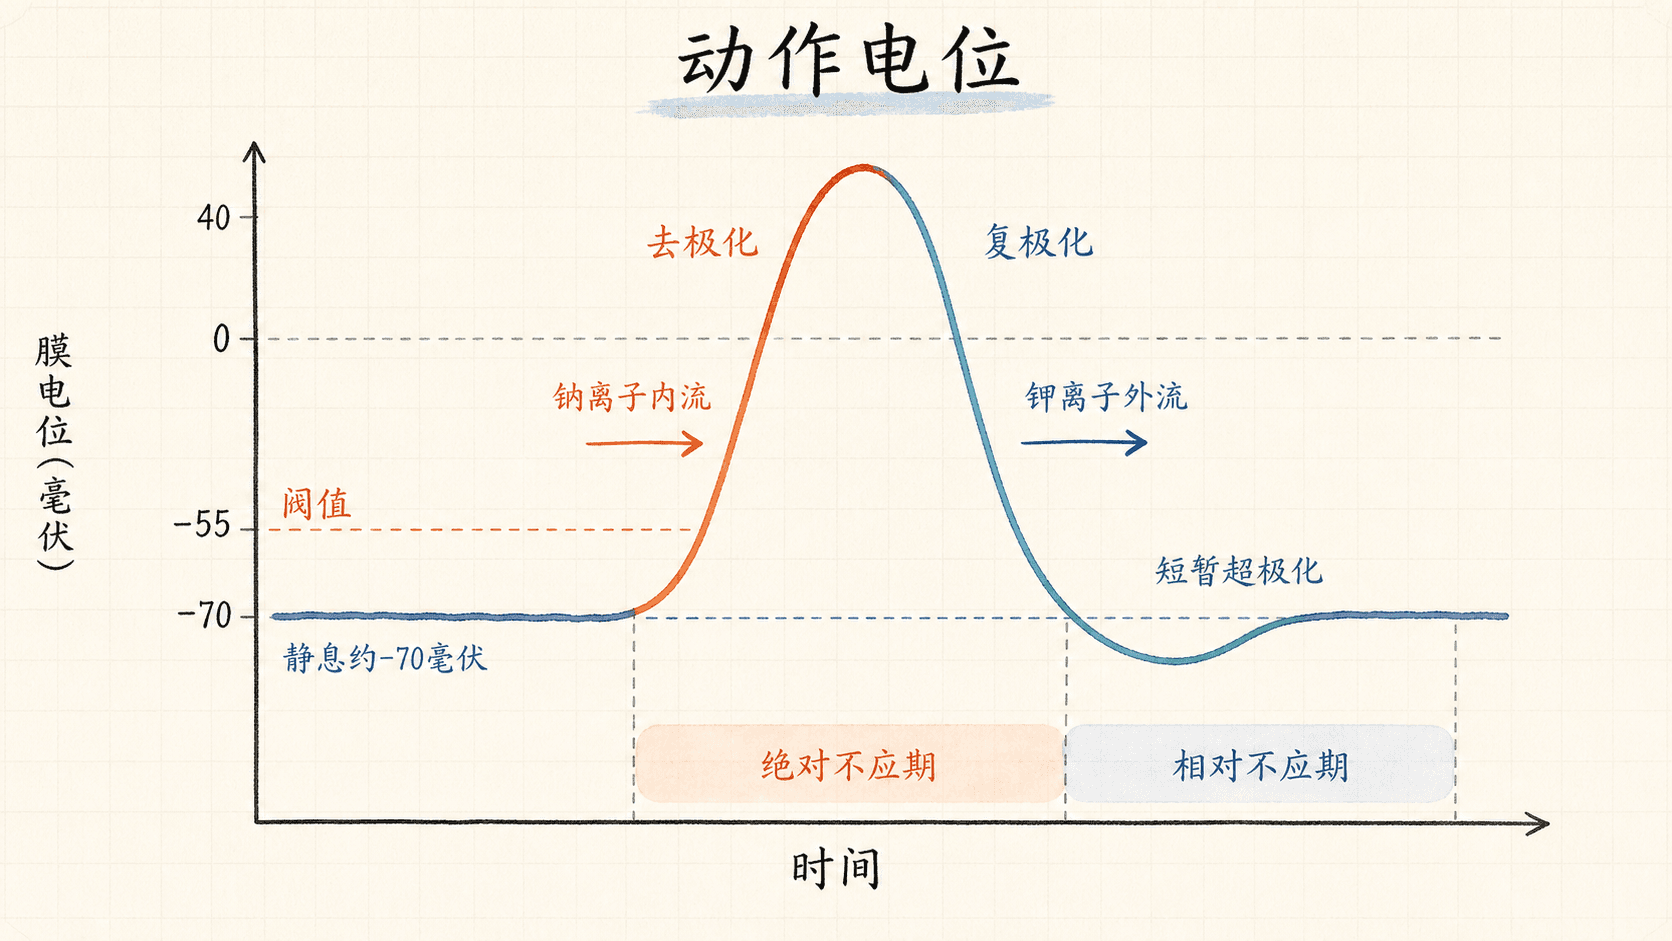
动作电位可按下面的因果链理解:
静息时,膜内相对较负,电压门控钠通道大多处于可被激活但未开放的状态;局部输入在此基础上相加或相互抵消。
当去极化跨过阈值,钠通道迅速开放,钠离子内流使膜电位更正,更多钠通道被打开,于是出现陡峭上升支。
钠通道随后失活,延迟开放的钾通道使钾离子外流,膜电位回落,构成复极化。
部分钾通道暂时仍开着,膜电位会短暂比静息值更负,形成后超极化;随后通道状态恢复,长期离子梯度仍由泵和其他转运过程维持。
动作电位后的绝对不应期内,许多钠通道处于失活状态,再强刺激也难以立刻触发下一次脉冲;相对不应期内需要更强输入。这既限制了同一轴突的最高发放频率,也使刚刚兴奋过的区域不容易被反向重新点燃。因而,强刺激常通过更高的发放频率、更多被募集的神经元和时序模式来编码,而不是通过把单个动作电位变得更高。
下面的排序挑战可用来检查你是否能把“离子门的状态”与“曲线阶段”对应起来。
完成排序后,用曲线反问自己:上升支来自哪一种离子的主要流向?回落又主要依赖哪一类通道?只有把曲线、离子流与通道状态同时对应起来,才算真正掌握了“全或无”之后发生的分子过程。
1
刺激增强后,同一根轴突最常见的编码变化是什么?
轴突让脉冲可靠地走远
如果信号只是被动地沿膜扩散,距离越远就越弱,指尖的信息很难稳定到达脊髓。动作电位解决这一问题的办法是“沿路再生”:某一小段膜上的钠内流会让邻近膜去极化到阈值,邻近膜再产生新的动作电位,所以信号可沿轴突传播而不因距离简单衰减。刚经过的膜处于不应期,便降低了信号向后传播的可能性。
但可靠还不等于快速。无髓轴突需要在相邻膜段连续再生信号;髓鞘包裹的轴突则把电信号的活跃再生主要集中在郎飞结,膜内电流更快地到达下一个结,这叫跳跃式传导。髓鞘由中枢神经系统的少突胶质细胞或周围神经系统的施万细胞形成,既提高速度,也把需要大量离子交换的区域集中到较小范围。
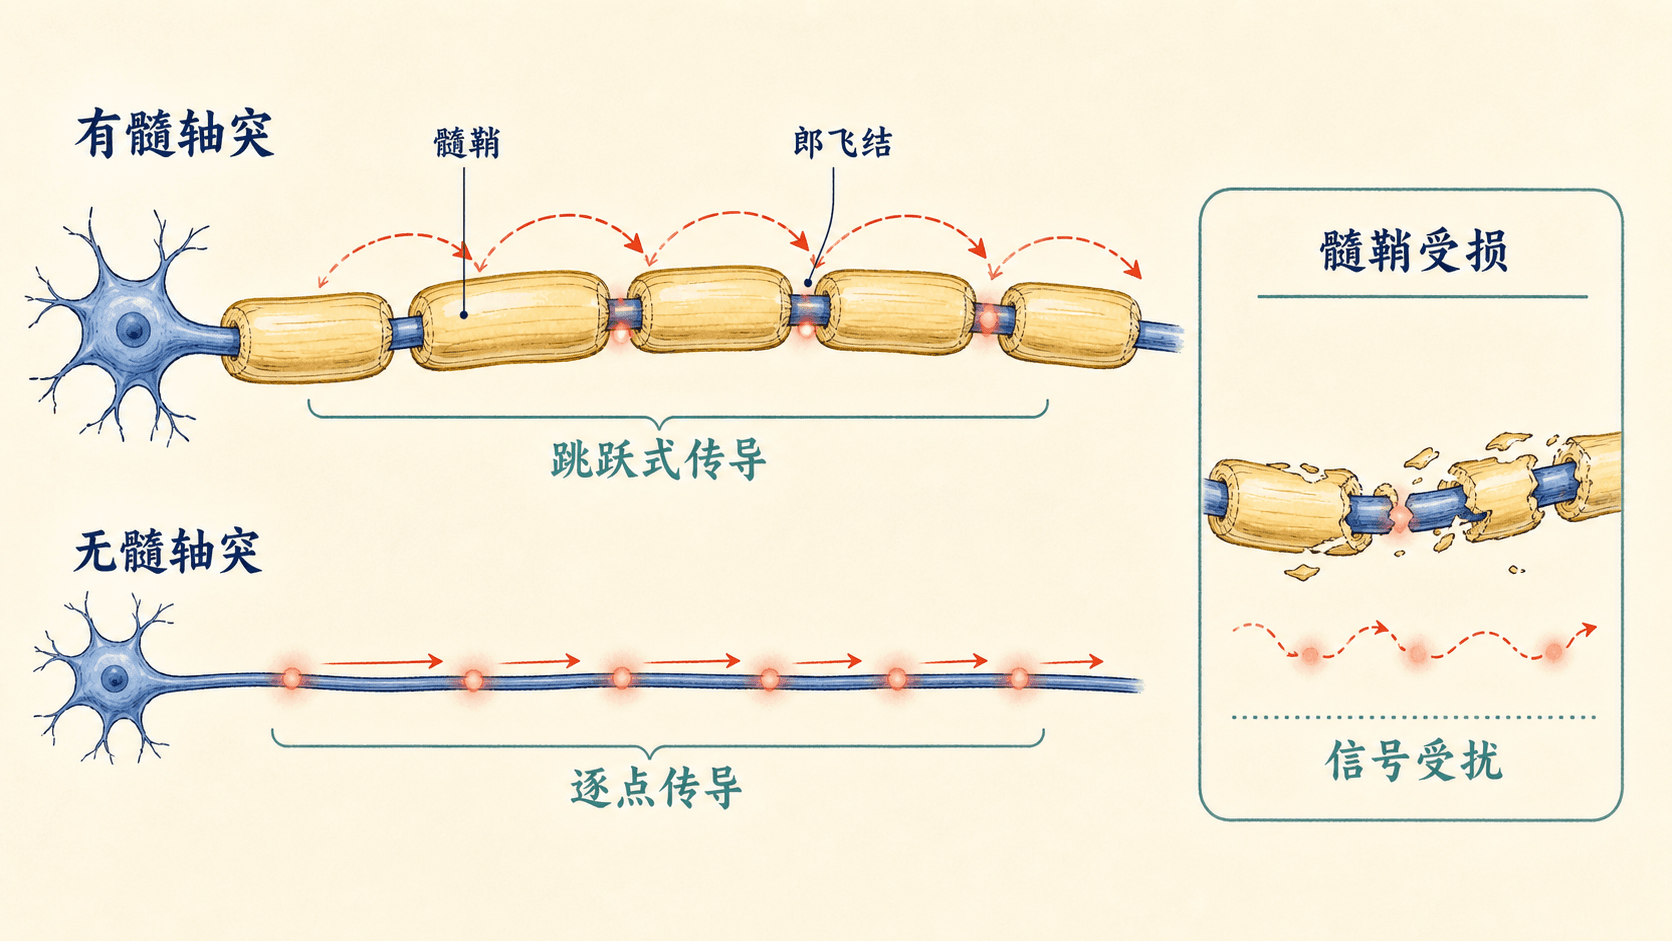
多发性硬化与中枢神经系统髓鞘受损有关,可能影响视觉、感觉、运动或平衡等功能;具体表现和诊断必须由专业医生结合病史与检查判断。这里的传导模型只解释了“为什么髓鞘完整性重要”,不是自我诊断工具。
突触把一段旅程交给下一段
动作电位到达感觉神经元末梢后,并不会直接“跳进”下一细胞。典型化学突触中,末梢去极化打开电压门控钙通道;钙离子进入末梢,促使装有神经递质的囊泡与细胞膜融合;递质扩散过很窄的突触间隙,结合突触后膜的受体,改变下一细胞离子通道或细胞内信号。递质随后会被再摄取、被酶分解或扩散离开,从而让这次信息有明确的结束。
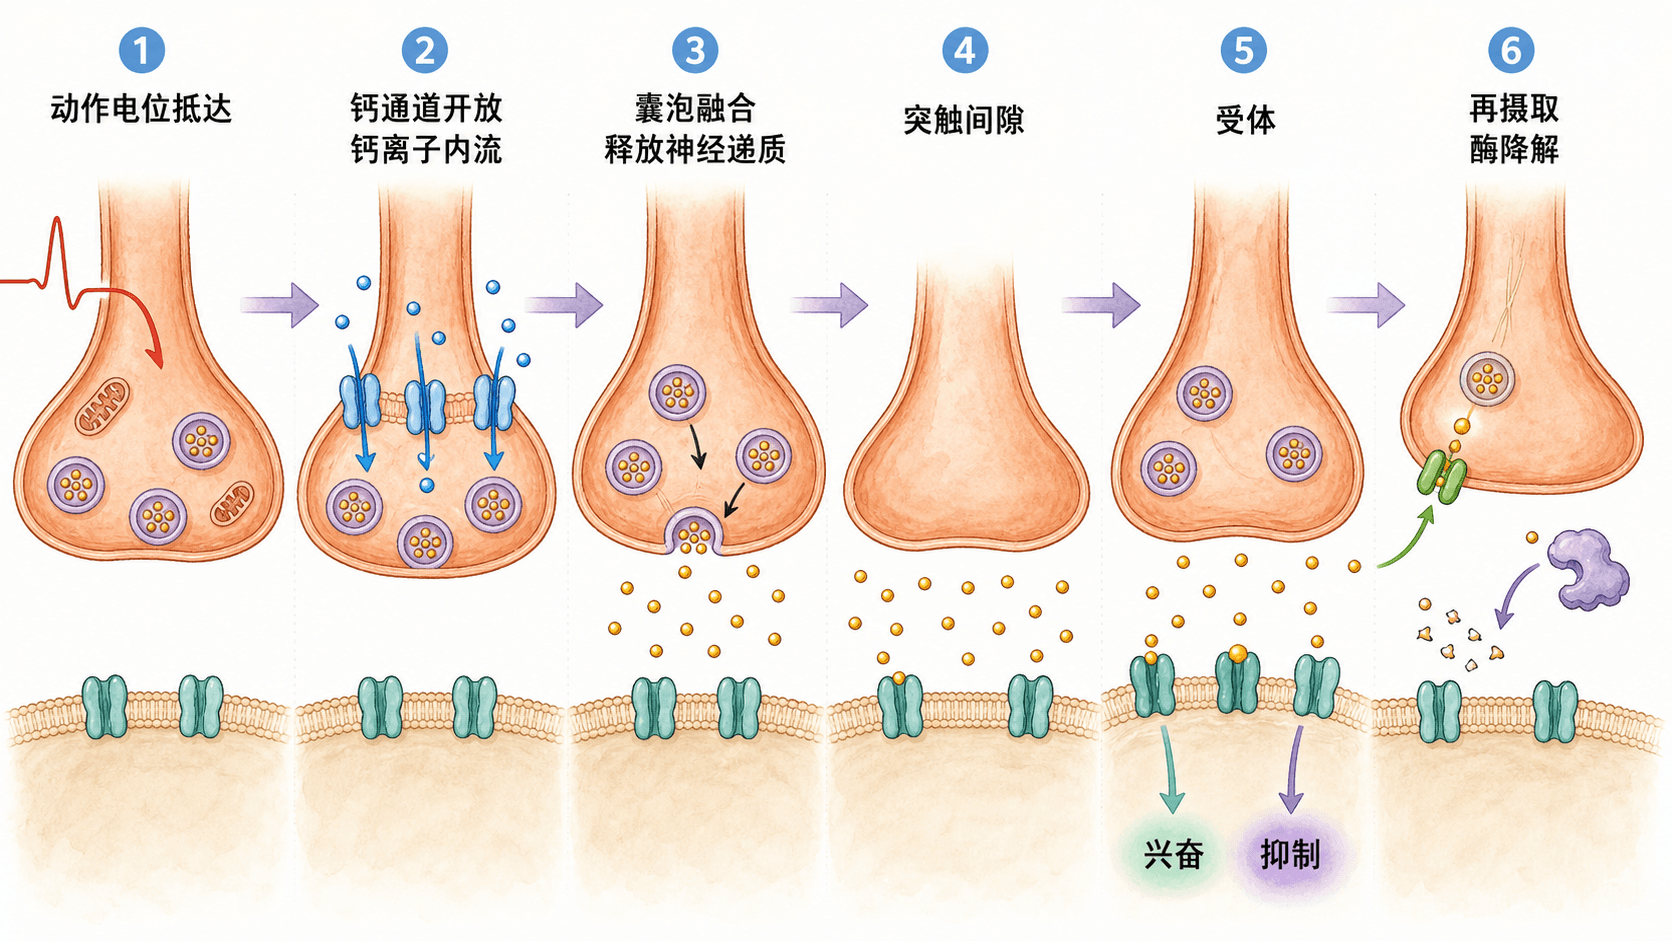
“递质”不是天然等于“兴奋”或“抑制”。结果取决于递质结合的受体类型和目标细胞当时的状态:有的突触会让突触后细胞更接近阈值,有的会让它更远离阈值,还有的会通过较慢的代谢型受体调整细胞的敏感性。小林缩手时,许多突触的先后关系共同决定了哪条运动输出最终占优势。
现在改变突触的性质和释放量,观察下一神经元离阈值是更近还是更远。请把结果理解成“影响放电概率”的教学演示,而不是对某一种递质的固定结论。
如果把释放量调大却仍没有触发下一细胞放电,并不矛盾:突触输入只是在改变放电概率,目标细胞是否跨过阈值,还取决于它接收到的其他兴奋性和抑制性输入,以及它原有的膜电位。
2
在典型化学突触的接力中,哪些环节是必要的?
把机制重新放回那次缩手
现在再看小林松开热杯的瞬间,就不再是一条笼统的“神经冲动”。热刺激首先在感觉末梢产生分级变化;当感受器电位使触发区达到阈值时,便产生一串动作电位;这串脉冲经轴突可靠前行;每到一个典型化学突触,就被钙离子、囊泡、递质与受体重新翻译;脊髓回路把相关输入整合后,运动神经元把新的脉冲送向肌肉。大脑随后参与更丰富的体验与调节,例如判断疼痛位置、寻找冷水和记住危险情境。
这种框架也解释了为什么神经系统既快又可塑:轴突上的动作电位给出可靠的远距离“到达”,突触处的化学过程则提供可调节的“怎么响应”。局部麻醉药能通过阻断特定电压门控钠通道降低痛觉信号的传导;髓鞘受损会扰乱长距离传导;而药物、睡眠、损伤和学习都可能通过不同环节改变网络的整体表现。它们都不能仅凭一个术语来解释,必须回到具体细胞、具体通道和具体回路。
用一句话概括本章:神经元利用离子梯度蓄能,用阈值产生可再生的动作电位,用突触把电信号转换为可调的化学信息,最终把一次外界刺激组织成合适的行动。
请判断:如果某段轴突刚刚产生动作电位,为什么紧邻的后方区域通常不会立即再次放电?
继续探索
以下资源放在正文之外,便于进一步查阅: