基因表达
野外相机曾记录到毛色异常浅的大熊猫。白色毛发、浅色皮肤或眼部色素减少可能提示白化,但仅凭照片不能确定具体基因与遗传方式,还需要个体样本、家系和分子检测证据。
遗传变异可以影响色素合成、运输或细胞发育,但最终表型还受到基因组合、发育与环境共同影响。
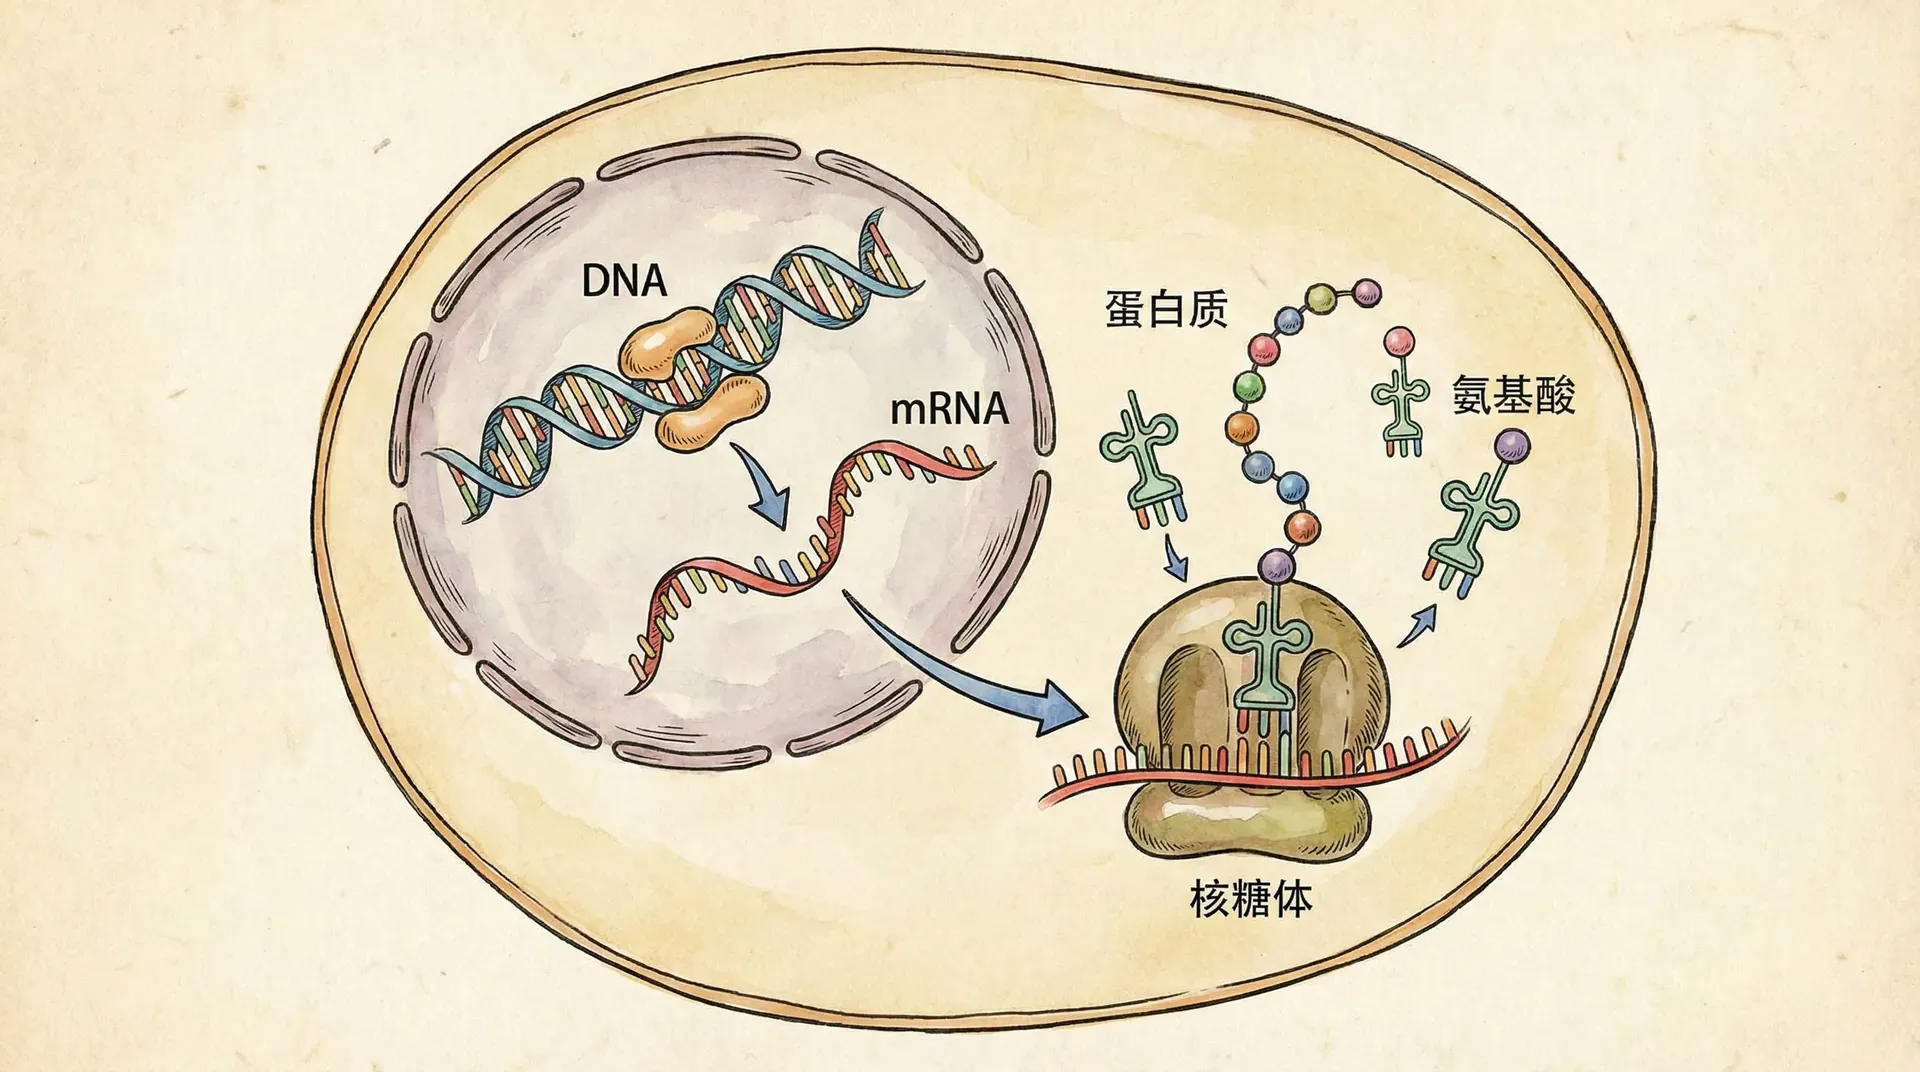
要解释一种毛色变化,需要追踪DNA序列怎样影响RNA、蛋白质和细胞功能。基因表达包括基因信息被转录为RNA,以及部分RNA被翻译为蛋白质;许多RNA本身也具有结构、催化或调控功能。
在已经明确分子机制的白化类型中,色素通路相关基因变异可能改变酶或转运蛋白功能。对具体个体则不能在缺少检测时直接指定哪一种蛋白异常。从蛋白质编码基因到多肽的信息传递主要经过转录和翻译。
基因与蛋白质关系
早期的理论基础
20世纪初,英国医生加罗德通过对黑尿病这种遗传病的研究,首次提出了基因能够通过调控酶的产生进而影响性状表现的观点。他注意到黑尿病患者的尿液暴露于空气后会变黑,原因在于缺少分解特定化学物质(黑尿酸)的相关酶。加罗德据此推断:健康人可以正常合成该酶,而黑尿病患者出现这种现象,是因为其基因发生变异,导致缺乏这种酶。
酶假说的确立
几十年后,美国科学家比德尔与塔图姆选择面包霉菌作为实验模型,进一步验证了基因与酶间的联系。面包霉菌为单倍体生物,基因变异产生的表型效果能直接体现,非常适合做相关研究。
实验设计核心思路
面包霉菌通常可在含有无机盐、葡萄糖和生物素的基础培养基上独立合成生长所需所有氨基酸等营养。研究人员用X射线处理面包霉菌,诱导基因突变,再筛选出那些不能在基础培养基上存活的突变类型。
数据分析发现,各类突变株在补加特定物质后才能生长,从而揭示了精氨酸合成的各主要步骤分别由不同基因控制。
精氨酸生物合成途径中各基因作用的解析
这些结果支持“一基因一酶”作为当时的解释:不同突变会阻断代谢途径中的不同步骤。后续研究表明,并非所有蛋白质都是酶,也并非所有基因都编码蛋白质。
假说的现代发展
进入分子生物学时代,科学家们对“一基因一酶”理论进行了补充和修正。当前较为普遍的观点是:
蛋白质编码基因的产物可通过选择性剪接等方式形成一种或多种多肽;另一些基因产生rRNA、tRNA或调控RNA等功能性RNA。血红蛋白的不同珠蛋白亚基由不同基因编码,说明“基因—产物”的关系需要放在具体转录本和细胞环境中理解。
遗传信息的传递机制

转录和翻译的基本概念
中心法则描述序列信息在核酸与蛋白质之间的主要流向:DNA可以复制,DNA转录为RNA,RNA可被翻译为蛋白质。逆转录和RNA基因组复制也是已知的信息传递方式,但没有发现蛋白质序列反向作为模板生成核酸序列的机制。
转录(Transcription)
转录时,RNA聚合酶读取DNA的一条模板链,按互补配对原则合成RNA。蛋白质编码基因产生的前体RNA可以加工为mRNA,rRNA、tRNA和多类调控RNA则承担其他功能。在典型真核蛋白质编码基因中,前体mRNA常经历加帽、剪接和3'端加工,再输出到细胞质参与翻译。
翻译(Translation)
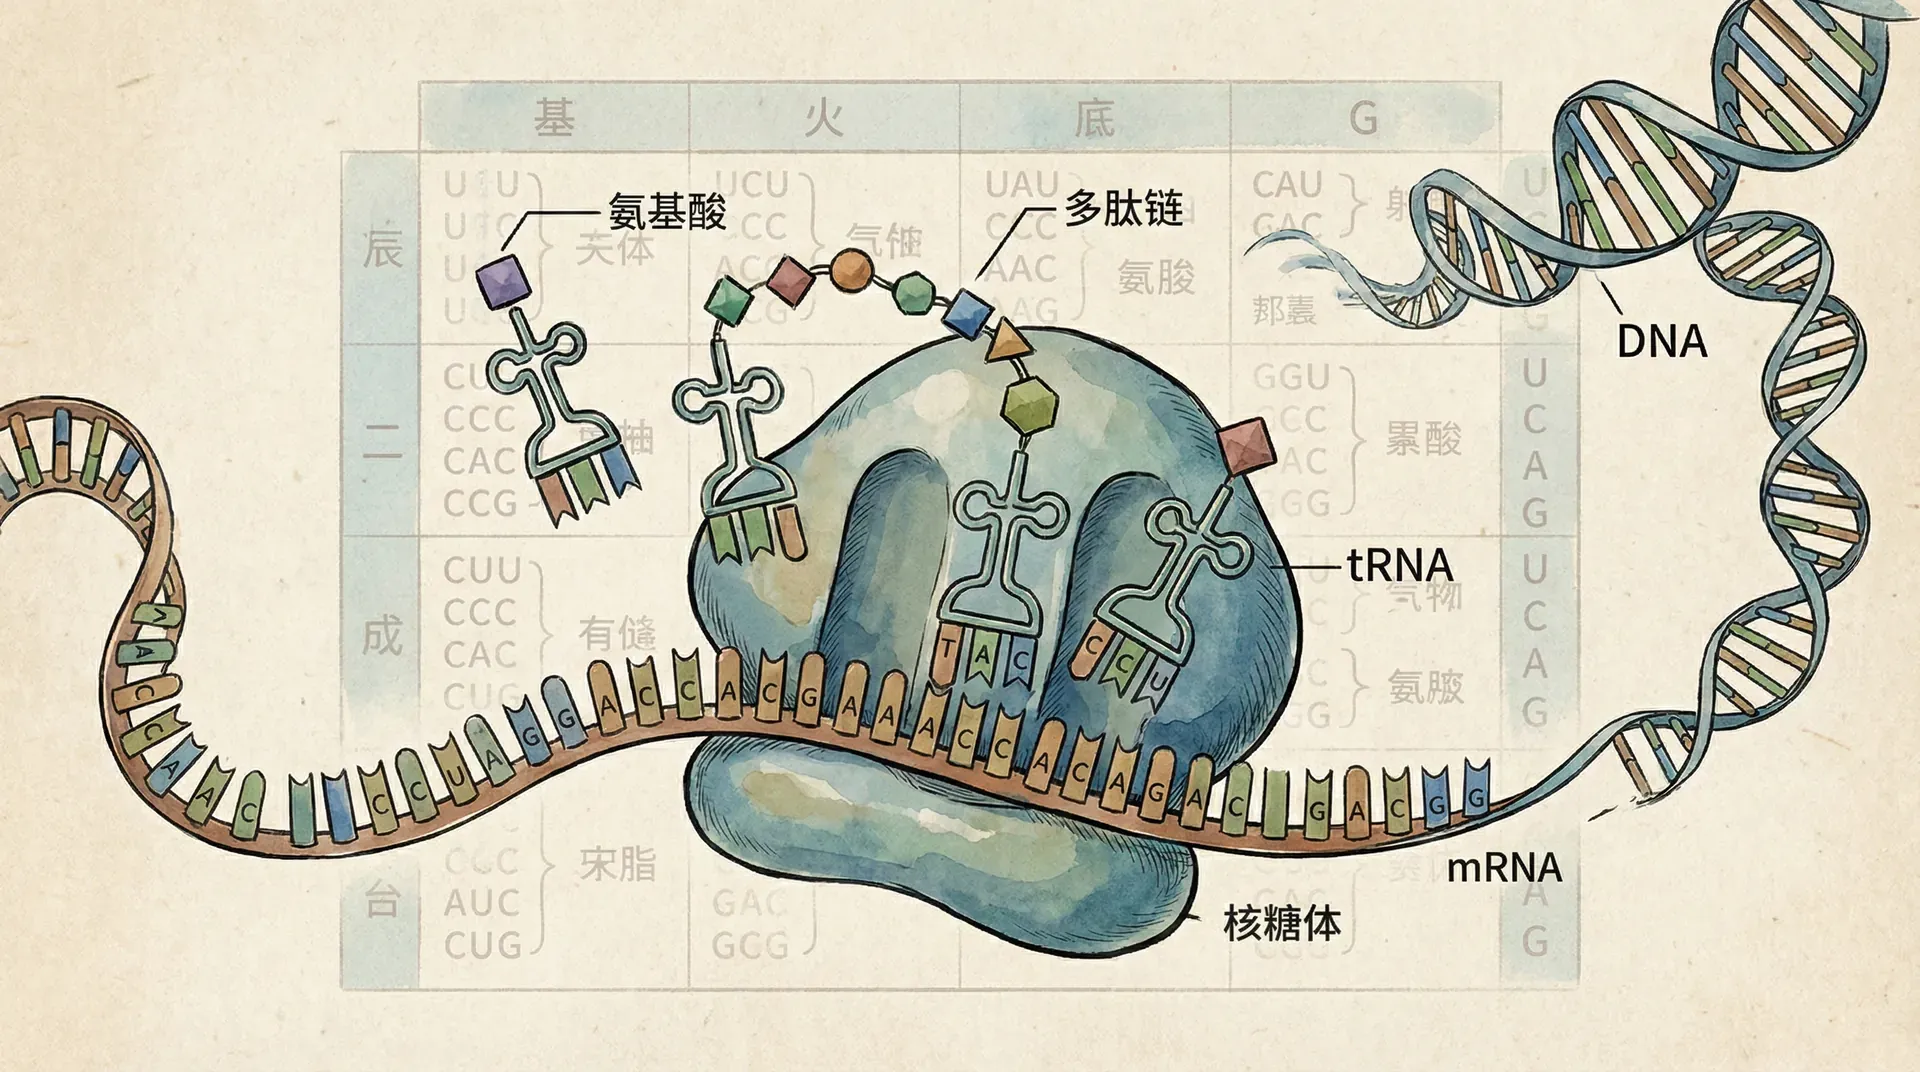
翻译是遗传信息由RNA分子转变为蛋白质的过程。在细胞质中,成熟mRNA与核糖体结合,核糖体作为蛋白合成的“工厂”,负责读取mRNA上的遗传密码(每组三个核苷酸为一组,称为“密码子”),并据此合成特定序列的氨基酸链。在这一过程中,转运RNA(tRNA)发挥“翻译器”的作用。每种tRNA分子能够识别特定的mRNA密码子,并携带相应的氨基酸。“反密码子”片段确保tRNA与正确的mRNA密码子配对,实现氨基酸的正确顺序连接,最终形成具有生物学功能的蛋白质。
中心法则描述信息传递的类型,并不等同于一条始终单向、等速运行的生产线。染色质状态、转录因子、RNA加工与降解、翻译效率和蛋白质周转都能改变最终产物的数量和时间分布。
原核生物与真核生物的区别与联系
在原核生物(如大肠杆菌)中,细胞结构相对简单,遗传物质并没有被核膜包裹。因此,转录和翻译通常可以在同一空间、几乎同时进行——有时mRNA还未合成完毕,翻译过程就已在其5'端开始。这一同步性有利于原核生物快速响应环境信号与资源变化。而且,原核生物的mRNA一般没有复杂的加工修饰,寿命较短。
相比之下,真核生物(如人和被子植物)的细胞具有核膜与多种区室,其基因表达过程有以下特点:
- DNA被封闭在细胞核内,转录过程只能在核内进行;
- 生成的前体mRNA(pre-mRNA)必须经过一系列加工和修饰,包括:
- “加帽”(5'端加帽)
- “切除内含子、连接外显子”(剪接)
- “加poly-A尾”(3'端加多聚腺苷酸尾巴)
- 这些加工修饰形成成熟mRNA,才能穿过核孔进入细胞质,参与翻译;
- 这种空间上的分隔和严格的加工流程,提高了表达调控的精度,但也使整个基因表达流程更加复杂和多样。
此外,真核生物还拥有复杂的基因组结构,例如存在大量的内含子、调控元件以及染色质结构对基因表达产物的影响。不仅成千上万的基因需要被有序和有选择地表达,而且这种表达在不同的组织、发育阶段和环境条件下都可能不同,展现出高度的空间和时间特异性。
原核与真核细胞都依赖转录和翻译,但细胞区室、RNA加工和调控网络存在明显差异。这些差异来自各自的演化历史,不能简单排列成由“简单”到“高级”的单一路线。
遗传密码的奥秘
密码子的基本特征
遗传密码规定mRNA三联体怎样对应氨基酸或翻译终止信号。RNA含A、C、G、U四种碱基,因此共有4³=64种密码子;其中61种通常编码20种标准氨基酸,3种通常作为终止信号。密码子的简并性会让部分碱基替换不改变氨基酸,但并不保证突变没有其他影响。
遗传密码在不同生物间高度保守,是共同祖先的重要证据之一。线粒体、部分微生物和少数细胞核基因组存在密码子重新分配,因此更准确的表述是“近乎通用”。
在一个开放阅读框内,核糖体从起始位置起连续读取三联体,相邻密码子通常不共享核苷酸。基因组中仍可存在重叠基因或不同阅读框。插入、缺失导致的“移码”与起始位点选择错误是不同问题,都可能改变后续翻译结果。
密码子的功能分类
遗传密码具有简并性:多种氨基酸由多个密码子编码,例如亮氨酸、精氨酸和丝氨酸各有6个常见密码子。同义替换可能不改变氨基酸,也可能通过密码子使用偏好、mRNA结构或剪接调控影响表达。翻译准确性还依赖氨基酰-tRNA合成酶、密码子—反密码子识别和核糖体校验。
在异源表达中调整密码子使用有时能改变翻译效率,但效果还受mRNA结构、tRNA供应、翻译速度与蛋白折叠影响,不能只追求某一宿主的“高频密码子”。
虽然大多数情况下遗传密码表是统一的,但自然界中某些生物和细胞器(如线粒体)偶尔会有少数密码子的“重新分配”。比如人体线粒体中的UGA可编码色氨酸而不是标志终止,UAA、AUA等也可能有不一样的指令。这些例外为分子进化研究提供了深刻的信息。
RNA的加工与成熟
真核生物mRNA的修饰
典型真核蛋白质编码基因先产生前体mRNA,再经过多种加工形成可输出和翻译的mRNA。不同基因和生物的加工方式存在例外,下面三项是最常见的过程。
1. 5'端加帽(5' Capping)
在许多真核mRNA的5'端,酶会加上7-甲基鸟嘌呤帽。它参与RNA稳定、剪接、核输出和翻译起始;部分病毒或特殊RNA采用不同的末端结构或翻译策略。
2. 3'端多聚腺苷酸化(Polyadenylation)
多数真核mRNA在特定位点切割后加上poly(A)尾。它与结合蛋白共同影响RNA稳定、核输出和翻译,长度会随生物、细胞状态和RNA寿命变化;组蛋白等少数mRNA采用不同的3'端加工方式。
3. RNA剪接(Splicing)
许多真核基因含外显子和内含子。剪接体识别剪接位点,移除内含子并连接外显子。外显子既可能包含蛋白质编码序列,也可能包含不被翻译的5'或3'非翻译区,因此不能把所有外显子都等同于氨基酸编码区。
此外,真核细胞mRNA的加工还包括RNA编辑(个别碱基发生改变)、RNA定位等调控机制,这让基因表达的精确性和多样性进一步提升。
选择性剪接的生物学意义
选择性剪接是同一个前体mRNA以不同方式选择剪接位点或组合外显子,从而产生不同转录本。它增加的是转录本和蛋白质产物的多样性,并不改变个体DNA序列,因此与群体中的“遗传多样性”不是同一个概念。
同一基因在神经细胞和肌肉细胞中可能形成不同转录本,具体结果取决于细胞中的剪接因子。人类约有两万个蛋白质编码基因,但蛋白质种类还受到可变启动、选择性剪接、RNA编辑和翻译后修饰等影响;“蛋白质总数”会随定义和测量方法改变。
若RNA剪接环节发生错误或调控失常,往往会导致严重的遗传疾病。例如,β-地中海贫血的一些类型,就是因β-珠蛋白基因的RNA剪接异常,产生功能缺失的血红蛋白,从而出现贫血症状。其他如脊髓性肌萎缩症等疾病也与选择性剪接异常有关。
翻译过程的分子机制
tRNA的结构和功能
tRNA(转运RNA)是连接遗传信息与蛋白质合成的关键适配分子。它的结构呈“苜蓿叶”状,在空间中折叠为“L”形。每个tRNA有两个主要功能区域:
- 氨基酸结合臂:3'末端能特异性结合一种氨基酸。每种氨基酸都至少有一种相应的tRNA配对。
- 反密码子环:tRNA底部的一个环结构,包含一个三联体反密码子(anticodon),能与mRNA上的密码子以碱基互补配对。这样确保正确的氨基酸被放置到正在合成的多肽链相应位置。
在蛋白质合成过程中,氨基酸首先被“氨基酰-tRNA合成酶”准确地加载到对应的tRNA上,不同的氨基酰tRNA合成酶专一识别各自的tRNA和氨基酸。这一反应的高保真性对于蛋白质合成的正确进行至关重要。
蛋白质合成的基本步骤
蛋白质翻译过程在细胞质的核糖体上完成,通常包括以下三个经典阶段:
除了常规的翻译步骤外,真核与原核生物在翻译调控与效率上各有特色。例如真核细胞的mRNA常常在形成“多核糖体”(polysome)结构的状态下被同时多个核糖体翻译,大大提高了蛋白合成的效率。
基因表达的生物学意义
蛋白质多样性的来源
基因数量不能直接代表蛋白质产物和细胞功能的复杂程度。不同转录本、翻译后修饰、蛋白质降解与复合体组装会共同改变蛋白质的状态和作用,例如:
选择性剪接可使同一前体mRNA形成不同成熟转录本,其中部分会产生不同蛋白质。翻译后修饰能够改变蛋白质的活性、定位、稳定性和相互作用。蛋白质折叠与复合体组装则使多肽获得可工作的三维结构;异常构象也可能导致降解或聚集,而不是形成新的正常功能。
基因表达调控的重要性
多细胞生物的细胞共享大部分基因组,却因表达程序不同而形成不同功能。胚胎发育中,信号、转录因子和染色质状态会在特定时间和位置改变基因表达;成熟细胞也会根据营养、应激和细胞间信号调整RNA与蛋白质水平。
基因表达异常可参与遗传病、癌症和免疫疾病,但不同疾病涉及的细胞、通路和因果层级并不相同。研究时需要比较正常与异常状态,改变候选调控因素,再观察RNA、蛋白质和细胞功能是否随之改变,从而建立因果证据。
核糖体
核糖体的基本结构
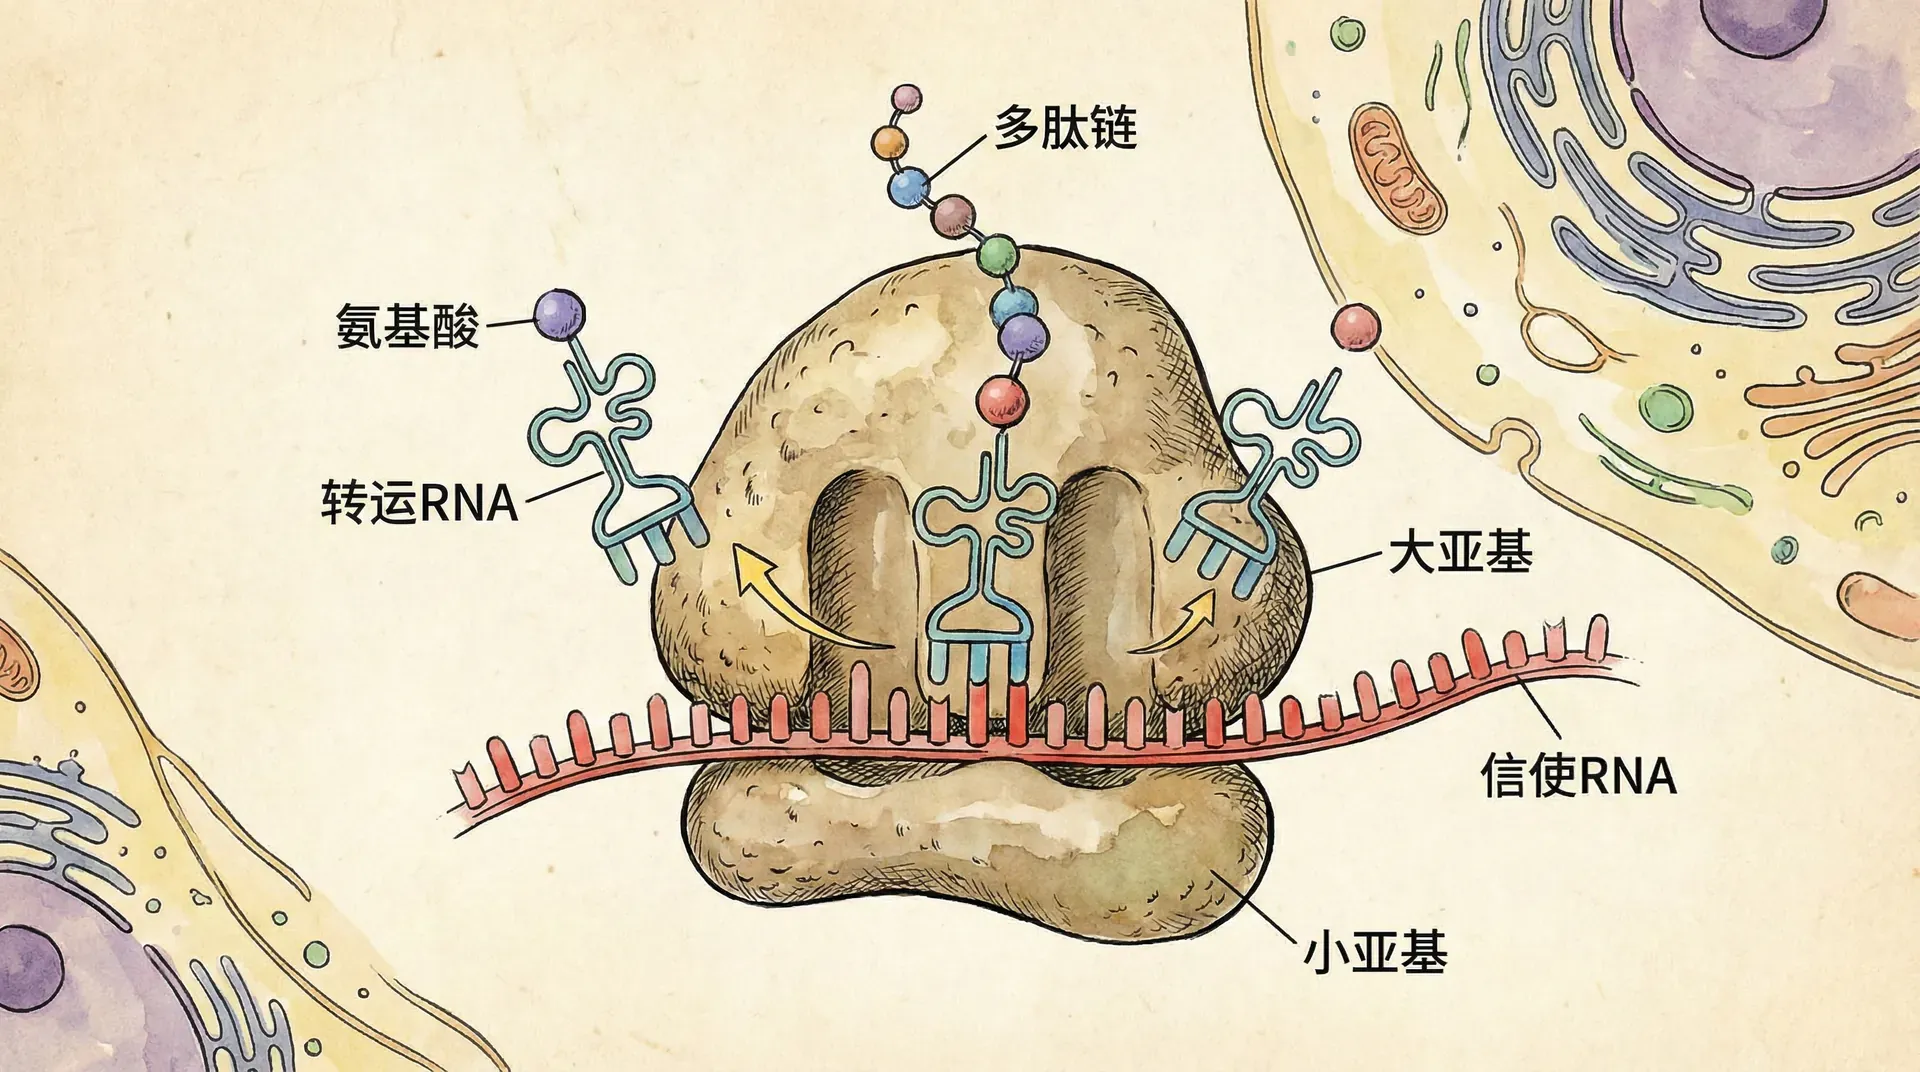
核糖体是存在于所有活细胞中的大型核糖核蛋白复合体,是蛋白质合成的核心“工厂”。它由两个不同大小的亚基组成,分别包含多条rRNA分子和大量蛋白质,不同生物类别在组成和结构上各具特色。
细菌和古菌通常具有70S核糖体,但它们的具体分子组成和结构仍有差别。真核细胞质中的核糖体一般为80S,结构更为复杂,除了主要分布在细胞质,还有线粒体和叶绿体等细胞器各自特有的核糖体类型。这些差异反映了核糖体在不同物种和细胞环境中的适应和进化,并与基因表达方式密切相关。
核糖体的核心功能在于其三个重要的结合位点:
核糖体RNA的催化作用
核糖体大亚基的肽酰转移酶中心主要由rRNA构成,肽键形成发生在RNA形成的催化环境中,因此核糖体常被视为核酶。核糖体蛋白仍参与结构装配、稳定和动态过程,不能据此理解为蛋白质成分没有作用。
rRNA分子在核糖体内部形成复杂的三维结构,其中大亚基的rRNA负责催化肽键的生成。这种RNA催化活性可能反映了早期“RNA世界”的遗迹,暗示在蛋白质出现之前,RNA分子就已经承担着重要的生物催化功能。
许多核糖体蛋白位于外围,也有部分伸入rRNA内部。它们参与核糖体装配、稳定性、解码和构象变化;肽键形成的核心化学环境则主要由rRNA提供。
基因突变对蛋白质功能的影响
点突变的分子后果
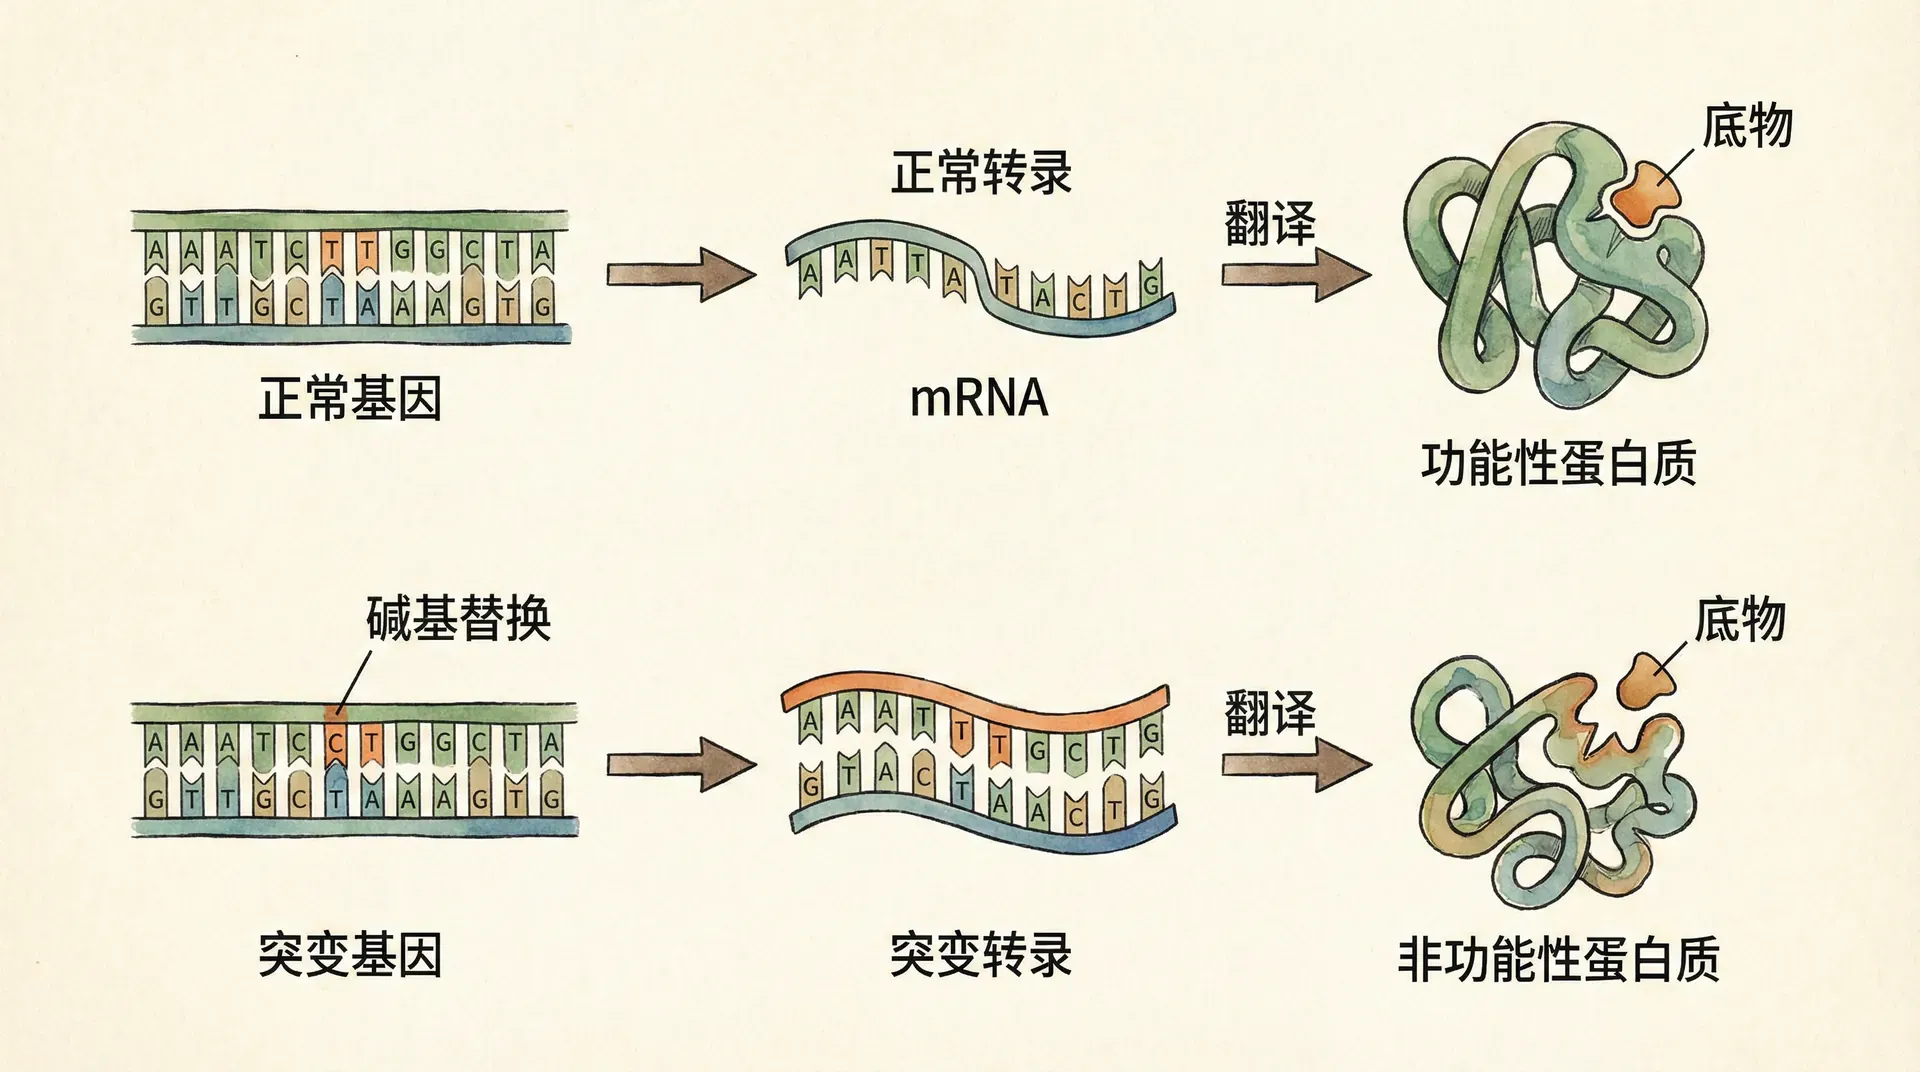
基因序列中单个核苷酸的改变可能导致截然不同的生物学后果。根据对蛋白质序列影响的不同,点突变可以分为几个主要类型:
静默突变:由于遗传密码的简并性,某些核苷酸变化并不改变对应的氨基酸,这类突变通常对蛋白质功能无明显影响。然而,最新研究表明,即使是静默突变也可能通过影响mRNA的稳定性、翻译效率或蛋白质折叠动力学而产生微妙的表型效应。
错义突变:导致氨基酸改变的突变,其后果取决于新氨基酸的理化性质以及该位置在蛋白质结构中的重要程度。发生在蛋白质活性位点或关键结构域的错义突变往往严重影响蛋白质功能。
无义突变:将编码氨基酸的密码子改变为终止密码子,导致翻译提前终止,产生截短的、通常无功能的蛋白质。
镰刀型细胞贫血症的分子机理
镰刀型细胞贫血症是点突变致病的经典例子。β-珠蛋白基因的第6个密码子从GAG(编码谷氨酸)突变为GTG(编码缬氨酸),这一氨基酸的替换看似微小,却产生了严重的病理后果。
谷氨酸是亲水的酸性氨基酸,而缬氨酸是疏水的非极性氨基酸。这种性质的改变使得血红蛋白分子在缺氧条件下倾向于相互聚集,形成刚性纤维,导致红细胞变形为镰刀状,引发血管阻塞和组织缺氧等一系列临床症状。
镰刀型细胞贫血症的例子说明了蛋白质结构与功能的密切关系。即使是单个氨基酸的改变,如果发生在关键位置,也可能完全改变蛋白质的生物学特性,凸显了基因序列精确性的重要意义。
框移突变的严重后果
蛋白质编码区内非3倍数的插入或缺失会改变阅读框。它常使下游氨基酸序列改变并较早遇到终止密码子,转录本还可能被无义介导的mRNA降解识别;影响大小取决于位置、转录本和是否存在补偿性变化。
框移通常比许多单碱基替换影响范围更大,但并非必然造成蛋白质功能完全丧失。发生在非编码区、可变外显子或蛋白质末端附近时,后果可能较轻;具体判断需要结合表达、蛋白质功能和表型证据。
突变与疾病的关系
许多遗传病与特定基因变异有关,但从变异到疾病还要判断遗传方式、功能影响、外显率和个体背景。治疗策略可能作用于DNA、RNA、蛋白质或下游通路,其适用范围和风险必须分别验证。
总结
遗传密码近乎通用,为生命共同祖先提供了重要证据。少量密码子重新分配说明编码体系可以演化,但改变必须与tRNA、释放因子和整个蛋白质组的约束相协调。
遗传密码的例外见于某些细菌、古菌、单细胞真核生物及细胞器,并不只与“极端环境”相关。比较这些翻译系统,可以研究密码子重新分配发生所需的分子条件。
从DNA到RNA再到蛋白质的每一步都存在调控和例外。判断一个变异的影响时,应先确定它位于调控区、剪接位点还是编码区,再观察RNA数量与结构、蛋白质产物和细胞表型,避免只凭序列位置下结论。
转录、RNA加工、翻译和蛋白质周转构成连续的信息处理过程。把这些层次联系起来,既能解释同一基因为什么在不同细胞中产生不同结果,也能判断一种实验究竟测到RNA、蛋白质还是最终性状。