发育系统理论
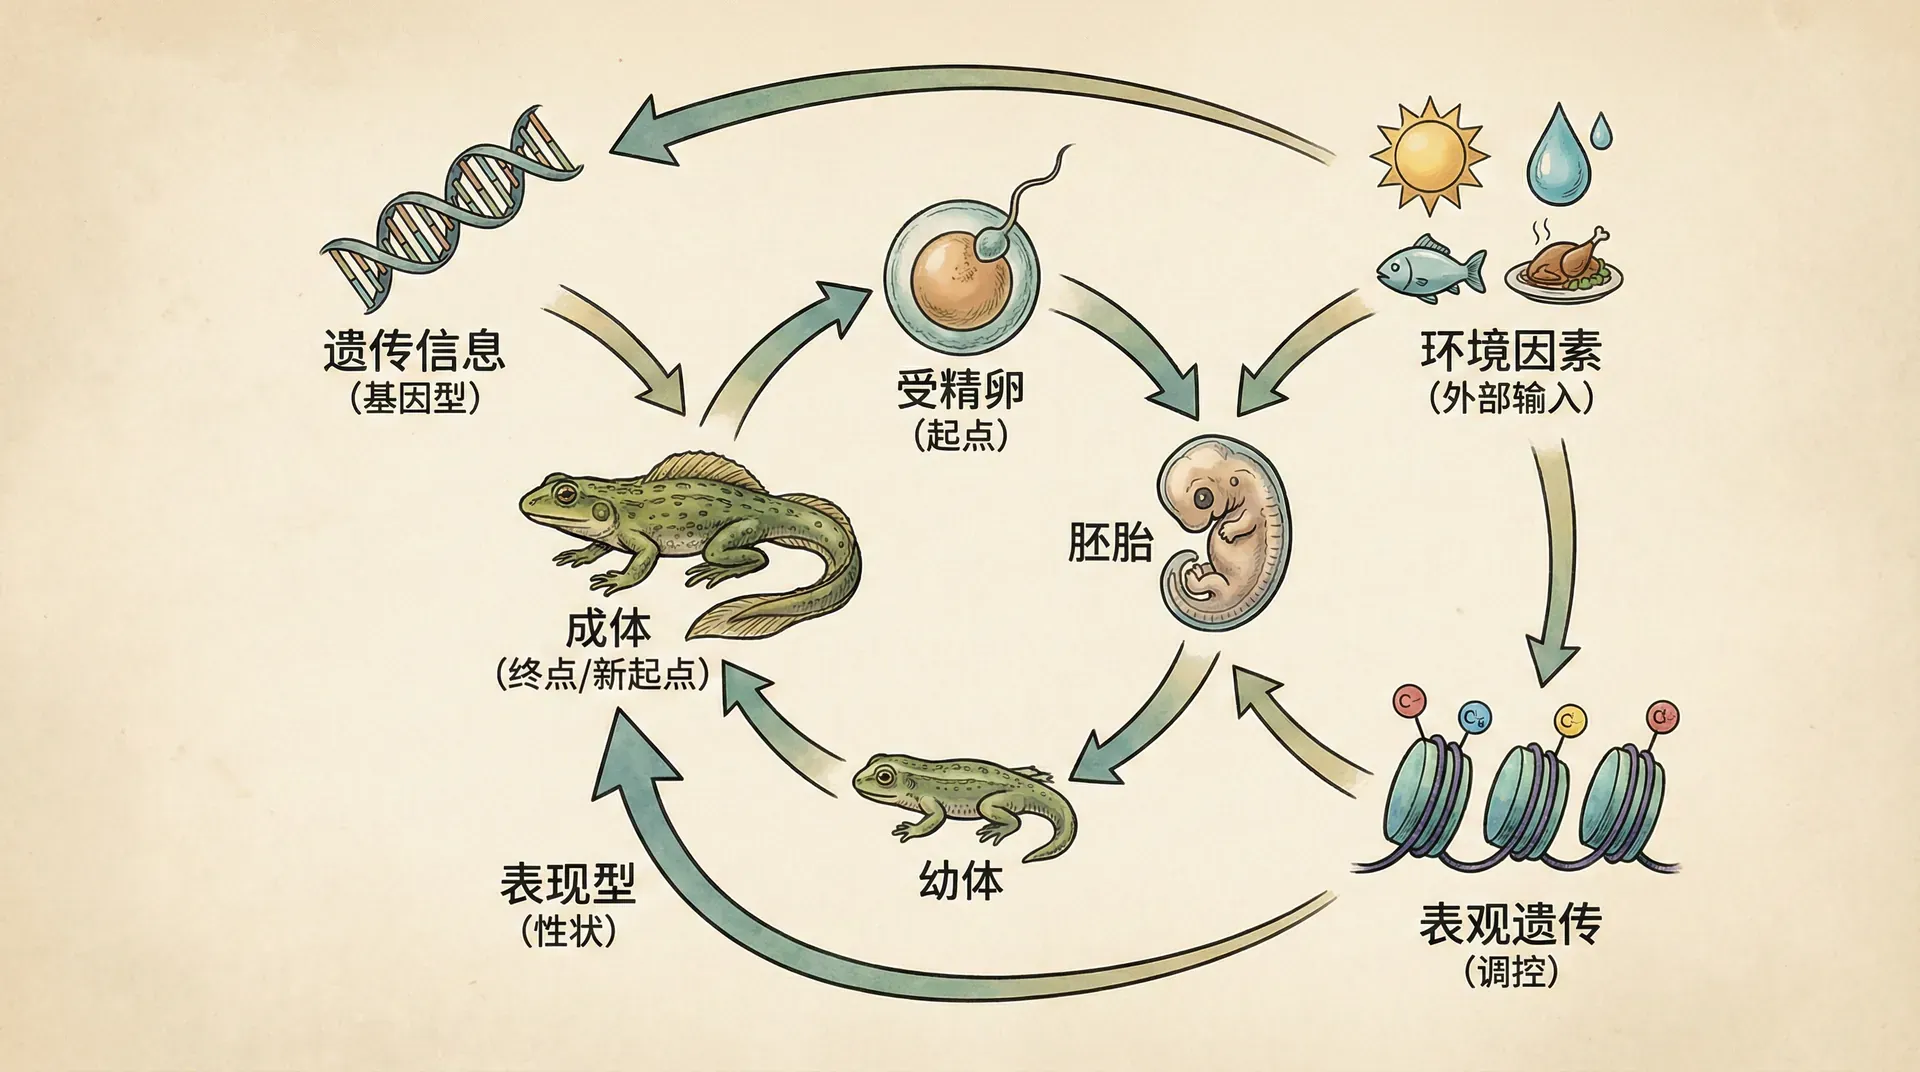
同一品种的植物种在不同条件下,长势可能不同;相同环境里的不同品种,也未必表现一致。把性状简单分成“基因造成的”和“环境造成的”,很容易遗漏它们在发育过程中的联系。
发育系统理论提供了一种分析视角:把基因、细胞状态、营养、外部环境以及适用于特定动物的社会经验放到同一个过程中考察。它强调原因之间的相互依赖,并不否定DNA作为遗传信息载体的重要作用,也不意味着所有因素同样重要。这种视角的价值,在于让我们继续追问因素怎样发生联系。例如,记录了某种营养条件之后,还需要知道它在什么阶段出现,以及随后哪些生长指标发生变化。因素清单是起点,发生的顺序和作用途径才帮助我们解释结果。
与其追问一个性状由基因还是环境单独决定,不如问:哪些因素在什么时间、通过什么过程影响了它?这样的提问更接近可以检验的发育问题。
从物体到过程
受精卵、幼体和成体并不是互不相干的样本。前一个阶段形成的结构和状态,会影响后一个阶段的变化。研究过程与研究结构相互补充,现代生物学并未把生物体普遍视为静止的机器。例如,描述成体的一项特征时,可以向前追踪它依赖哪些早期结构,以及这些结构在什么条件下形成。这样,发育阶段就不只是按时间排列的名称,而成为一段段具有承接关系的过程,帮助解释后来为什么会出现某种表现。
蝉的生活史就是一个例子。蝉的若虫在地下生活,利用植物根部的汁液;成熟若虫来到地面后羽化,成虫进行交配和产卵。地下阶段的长短因物种而异,不能把某种周期蝉的年限用于所有蝉。

只调查地面上的成虫,会漏掉生活史的大部分。反过来,某一阶段受到干扰,也不一定导致固定结局;后续条件和调节能力可能改变结果。过程研究既关注积累,也关注补偿和限制。可以把生活史看成一串相互衔接的观察窗口。在每个窗口记录当时的条件与状态,再将相邻窗口连接起来,便能区分某种差异最早何时出现,以及它在后续阶段扩大、减小还是继续保留。
基因与环境的动态互动
统计分析有时会估计遗传和环境与性状差异的关系,但这些比例不能直接解释某个个体有多少身体“由基因组成”。发育中,DNA的作用需要细胞内的分子系统才能实现,环境的影响也要经过生物体已有的结构和状态。这里要区分两个层面:群体比较研究的是个体之间为什么不同,发育解释研究的是某个性状怎样形成。即使某一组样本中的差异与遗传背景联系很强,也不表示形成这一性状时可以缺少适宜的营养和其他条件。
同样的外部变化,作用于不同发育阶段,可能产生不同结果。记录“发生了什么”之外,还要记录“何时发生”。
高原生活常被用来讨论遗传与环境。需要区分个体进入低氧环境后的生理调节、成长过程受到的影响,以及许多世代中遗传变异频率的改变。发现某个基因变异与高原性状相关,不能据此写出从胚胎到成年必然发生的完整因果链。
要检验基因与环境的关系,可以比较同一遗传背景在不同条件下的表现,也可以比较不同遗传背景在相同条件下的表现。如果变化幅度不同,就提示二者的作用不能简单相加。
例如,把两个植物品种分别种在光照充足与较弱的条件下,得到四组植株。先在同一品种内比较光照影响,再在同一光照下比较品种差异。若两品种对光照变化的响应幅度不同,就找到了值得进一步解释的联系。实验还要保持水分等条件一致,并比较足够多的植株。比较时还应使用相同的生长指标和记录时点,例如都测定播种后同一时间的株高。只比较一株最高的与一株最矮的,容易把个体差异误当作整组特点;保留每组多株植株的记录,才能看清变化是否具有一致性。
这里的设定数值用于理解比较方法,不是特定人群的基因表达测量,也不能用于判断个人的高原适应能力。
大熊猫幼崽出生时发育程度较低,需要母体照料。这属于物种正常的发育特点,不宜直接称为临床意义上的“早产”。研究其成长,可以记录:
- 营养获得和哺育情况。
- 保温与生活环境。
- 幼崽活动以及与母体的接触。
这些记录能帮助提出问题,但若要判断某种照料行为是否造成成年后的特定变化,还需要长期比较与控制其他因素。
基因与环境的作用需要放在具体发育过程中理解。承认它们相互依赖,不等于放弃区分原因;恰恰需要更清楚的比较和实验。
发育系统的组成部分
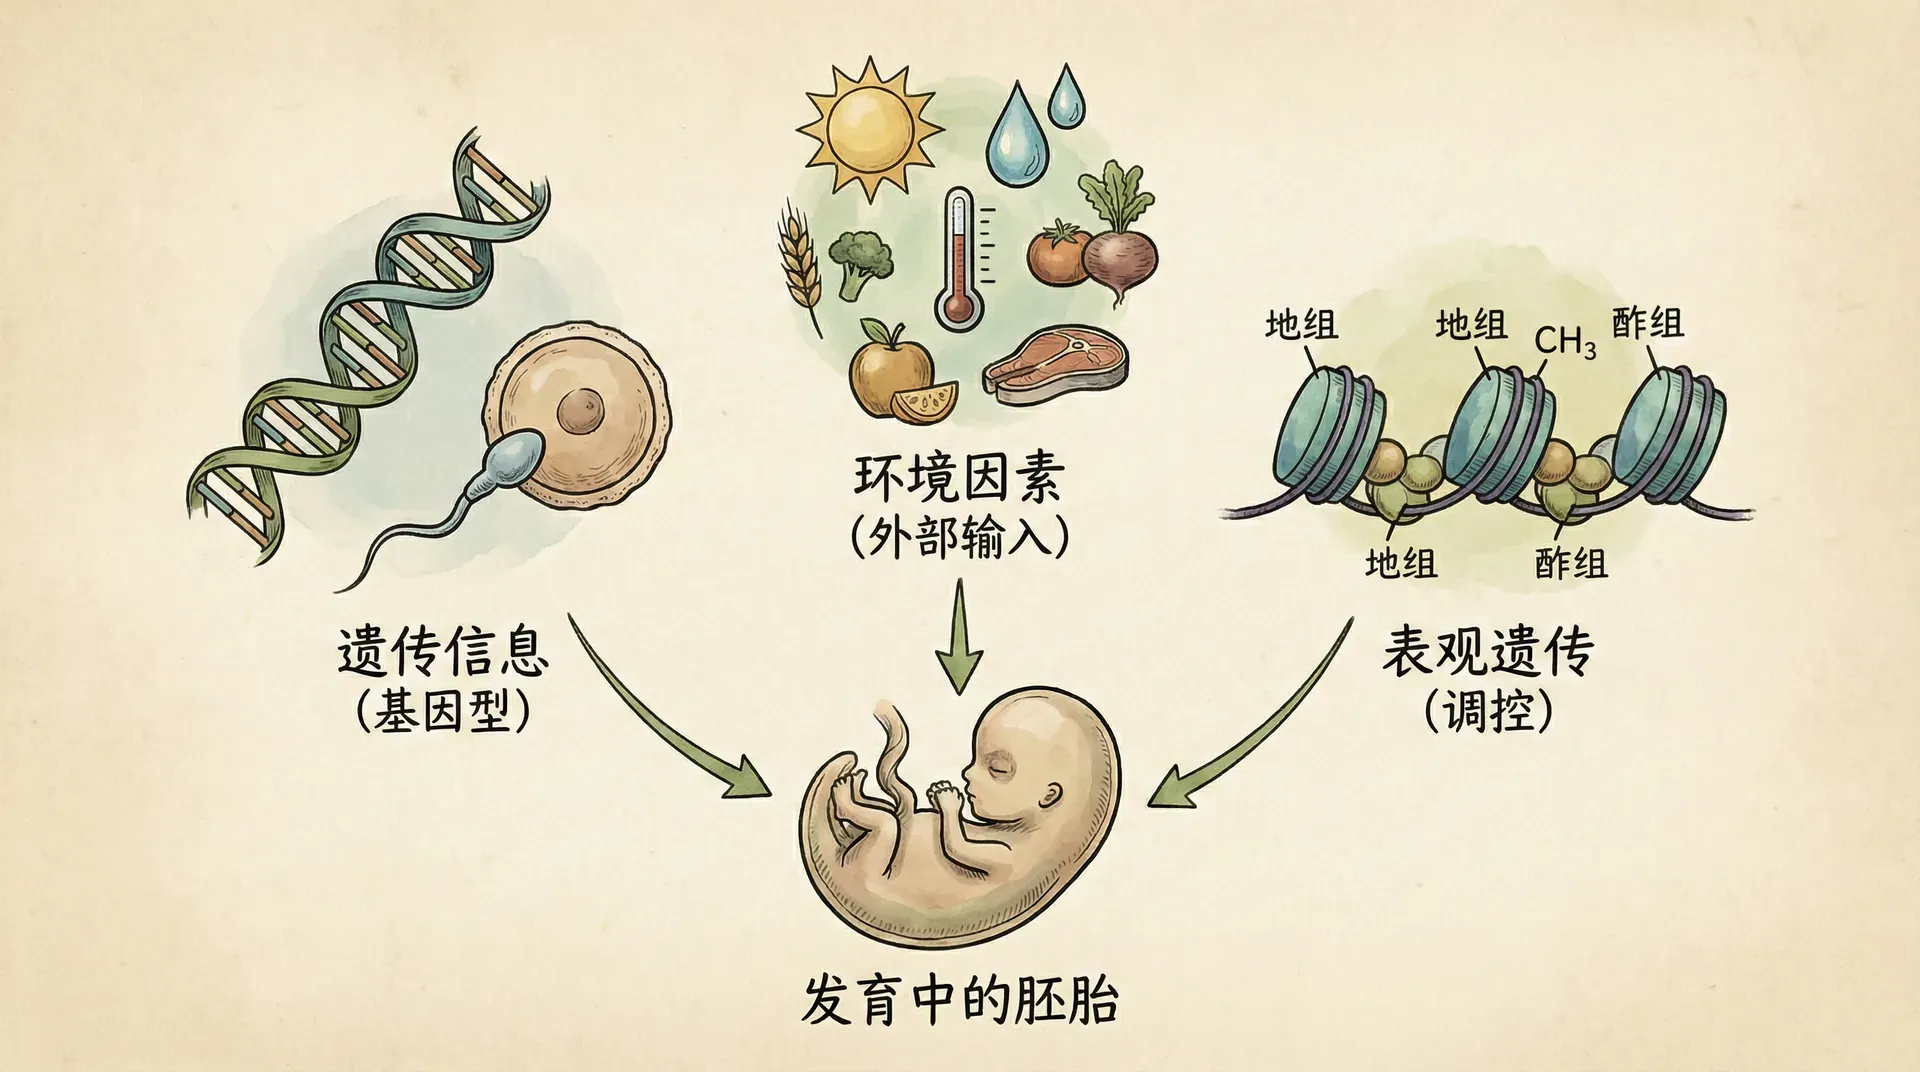
为了整理复杂关系,可以把发育资源分成几个相互联系的层面。这是一种分析框架,并非所有生物都拥有完全相同的“三件套”。
- 基因组:DNA序列及其组织,包括编码序列和调控区域,为分子合成与调节提供重要信息。
- 表观基因组:与DNA和染色质相关的一组状态,如部分化学修饰。它们参与调节基因的可利用程度,但不是所有基因表达变化都属于表观遗传。
- 发育生态位:支持成长的外部资源和条件,如温度、食物、巢穴和照料。不同物种所需条件不同,文化学习只适用于相应的研究对象。
蜜蜂的分工机制:
- 蜂王和工蜂都是由受精卵发育的雌性,不能据此说每只蜂的基因组完全相同。
- 幼虫获得的营养及相关发育调控参与蜂王与工蜂的分化,不宜把整个过程归结为一种食物对应一个甲基化开关。
- 蜂群维持的育幼环境提供了发育条件,体现出个体成长与群体活动的联系。
DNA传递、细胞状态的维持、亲代提供环境,可能共同影响后代,但它们通过不同途径发生。把途径分清,才能判断某个特征如何重现。
在作物研究中,种子形成时的环境和播种后的土壤条件都值得记录;它们造成的影响却未必由表观遗传介导。野生动物保护同样需要合适的栖息地和成长条件,不能只保存遗传材料而忽略生活史需求。这也说明,“某个因素很重要”还不是完整解释。进一步说明它提供了什么资源、作用于哪个阶段、改变了哪些活动,才能把发育条件与实际结果连接起来,并据此设计更清楚的比较。
表观遗传
同一个体内的许多细胞具有基本相同的DNA序列,却能维持不同功能。基因表达调控及部分可维持的染色质状态,是理解这种差异的重要线索。细胞拥有某段遗传信息,并不意味着它始终以相同水平使用这段信息。不同基因在何时表达、表达多少,以及相应产物怎样发挥作用,共同影响细胞的活动。由此可以理解,遗传信息基本相同与功能表现不同为何能够同时成立。
两类常见的染色质调节机制:
- DNA甲基化:在特定位置添加化学基团。对表达的影响与所在区域和生物类别有关,不能一律理解为关闭基因。
- 组蛋白修饰:改变组蛋白的化学状态,参与调节染色质及相关蛋白的结合。不同修饰的作用并不相同。

讨论“记忆”时,要问这种状态维持多久。一次短暂的表达变化、经过细胞分裂仍保留的状态,以及经生殖传给后代,是不同层面的现象。可以在记录中分别标出条件改变、细胞分裂和后代形成的时间,再查看状态在这些节点前后是否仍然存在。这样,“维持了多久”就有了明确参照,也更容易判断下一步需要追踪细胞还是追踪整个个体的后代。
- 细胞世代:部分状态有助于细胞分裂后维持功能特征。
- 个体世代:生殖与早期发育中存在广泛的表观状态重设,不能假定亲代经历都会被后代保留。
图中的设定指标只用于比较条件,不是疾病风险,也不是人体甲基化检测结果。观察到两组存在差异,仍需排除遗传背景、营养和其他共同环境等解释。
发育可塑性是同一遗传背景在不同环境中形成不同表型的能力。它可以涉及信号、激素和表达调节,并不要求每一种变化都由可跨代传递的表观标记造成。这里强调的是条件改变时表型能够怎样变化,而不是先指定某一种分子机制。观察到可塑性之后,才进一步追踪信号如何被接收、哪些活动随之改变。这样可以把现象层面的描述与机制层面的解释衔接起来。
- 植物生长:比较同一品种在不同光照下的形态时,应同时控制水分和营养。
- 动物发育:环境影响行为或形态时,要区分短期响应、发育变化和世代间遗传变化。
飞蝗的相变
| 观察阶段 | 散居相关表现 | 群居相关表现 | 判断时的注意点 |
|---|---|---|---|
| 卵期 | 受亲代及发育条件影响 | 受亲代及发育条件影响 | 不能仅凭卵期确定完整相型机制 |
| 早期若虫 | 可表现较少聚集 | 可出现聚集行为 | 行为变化与形态变化未必同步 |
| 较晚若虫 | 形态与行为继续发育 | 形态与行为继续发育 | 不同特征的变化速度不同 |
| 成虫 | 活动受相型与环境影响 | 活动受相型与环境影响 | 迁飞还受生理状态及环境影响 |
密度相关的相型变化涉及行为、生理和形态,而且不同变化的时间尺度不同。不能把所有龄期都归结为同一个DNA甲基化过程,也不能假定变化总是有利。
表观遗传为理解细胞状态如何建立和维持提供了机制线索。它不意味着经历会自动写入DNA,也不意味着环境造成的变化必然遗传给下一代。
总结
发育系统视角强调各类因素——如基因、细胞状态、环境条件——不是孤立起作用的,而是在发育过程中彼此交互、动态整合,并随着时间推进产生不同的效应。这种动态视角使我们关注到,同一种外部刺激在不同的发育阶段可能触发不同的调控路径,对最终表型产生复杂影响。
在具体分析时,可以先明确遗传背景、细胞或组织的初始状态、环境因素和关键时间点,然后通过实验对比或干预,逐步梳理这些因素之间的相互制约与协作关系。发育系统的方法不仅帮助我们避免陷入“基因决定论”,还防止把环境的作用简单化为无所不能的万能假说,从而更准确地理解生物表型形成的多层次机制。