表观遗传学
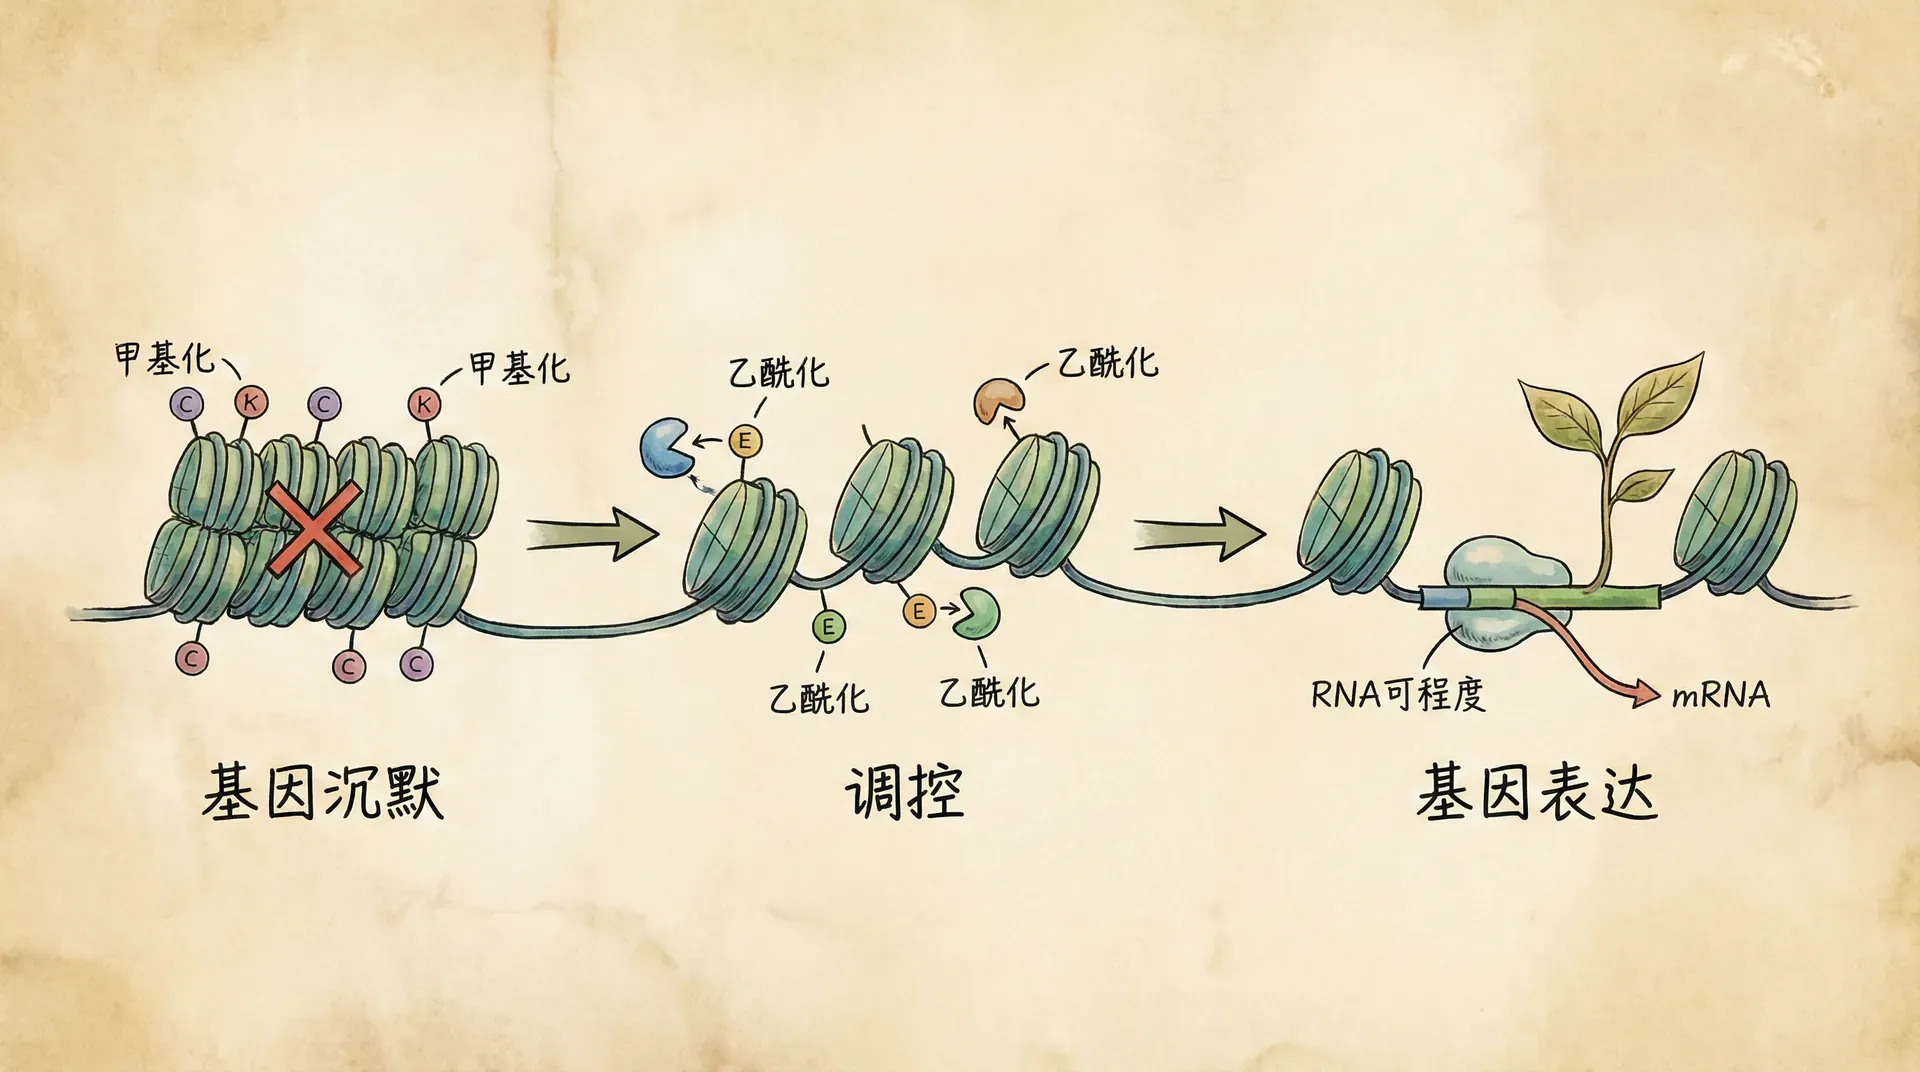
皮肤细胞和神经细胞的功能很不相同,但它们通常具有基本相同的DNA序列。差别从哪里来?一个重要原因是,不同细胞使用遗传信息的方式不同,部分表达状态还能在细胞分裂后维持。
表观遗传学关注不以DNA序列改变为基础的、能够维持的基因活动状态及其机制。DNA甲基化和组蛋白修饰是常见研究对象。它与广义的表达调控有联系,却不能把所有短期基因表达变化都归入其中。理解这种区别,可以分别关注信息的内容与信息的使用。DNA序列提供重要的遗传信息,细胞中的调控过程则参与决定哪些信息在何时被使用。研究表观状态,是进一步追踪部分使用方式怎样建立、怎样维持。
同一本书可以被不同方式阅读,但“读法改变”与“文字改写”不是同一件事。这个比喻有助于入门,实际机制仍需要通过分子与细胞实验来检验。
还要区分时间尺度:个体的短期生理调节、成长过程中的可塑性、跨世代的遗传变化不是同一个过程。大熊猫食性的演化或人群的高原适应,也不能仅凭“能够适应环境”就归因于表观遗传。“环境产生了影响”只是描述了一种联系,还没有说明影响经过什么途径。要继续解释,需要找出变化发生在表达活动、细胞状态还是遗传序列等哪个层面,并观察它保留的时间。相似的外在表现,背后可能对应不同过程。
判断表观遗传机制时,可以分为两步:
- 比较DNA序列是否发生变化
- 追踪表达状态是否持续
- 如果DNA序列相同,而某种状态在细胞分裂后仍然被保留,就有理由进一步寻找维持这种状态的机制。
- 如果某种状态只是一时升高,很快恢复原状,则需要根据具体的调控过程进行解释。
发育的稳定性与可塑性
- 稳健性:在一定扰动下,某些发育结果仍能相对稳定。
- 可塑性:同一遗传背景在不同环境中可以表现出不同性状。
二者可以体现在不同特征上。一株植物可能保持基本的叶片形态,同时随光照改变叶片大小。变化少不一定代表适应更好,变化多也不一定代表更有利。所以,讨论稳健性或可塑性之前,要先选定性状。对同一株植物,叶片数、叶片大小和开花时间是不同指标,不能因为其中一个变化明显,就认定所有特征都同样容易改变。
研究水稻时,应区分品种之间的遗传差异与同一品种对条件变化的响应。比较两个品种在不同温度下的表现,不能直接把全部差别都叫作可塑性。
家蚕生长同样受遗传背景、温度和食物条件影响。稳定的发育需要合适条件,超出耐受范围可能造成损伤。不能预设每一种环境变化都会引起有效补偿。
这里用设定指标展示两种响应方式。先比较条件变化后指标是否改变,再问这种改变是否有助于存活或繁殖;单凭变化幅度无法回答第二个问题。
发育调控依赖分子反应和细胞之间的反馈。反馈可以缓冲扰动,也可能在特定条件下形成新的状态。具体结果需要结合机制与实验,不能从“存在反馈”直接推导出系统总能恢复。因此,比较发育结果时,既可以关注变化后的最终状态,也可以留意到达这一状态的过程。看起来相近的终点,可能经历了不同幅度的偏离和不同长短的调整;这些过程信息能帮助我们理解稳定是怎样形成的。
同态流
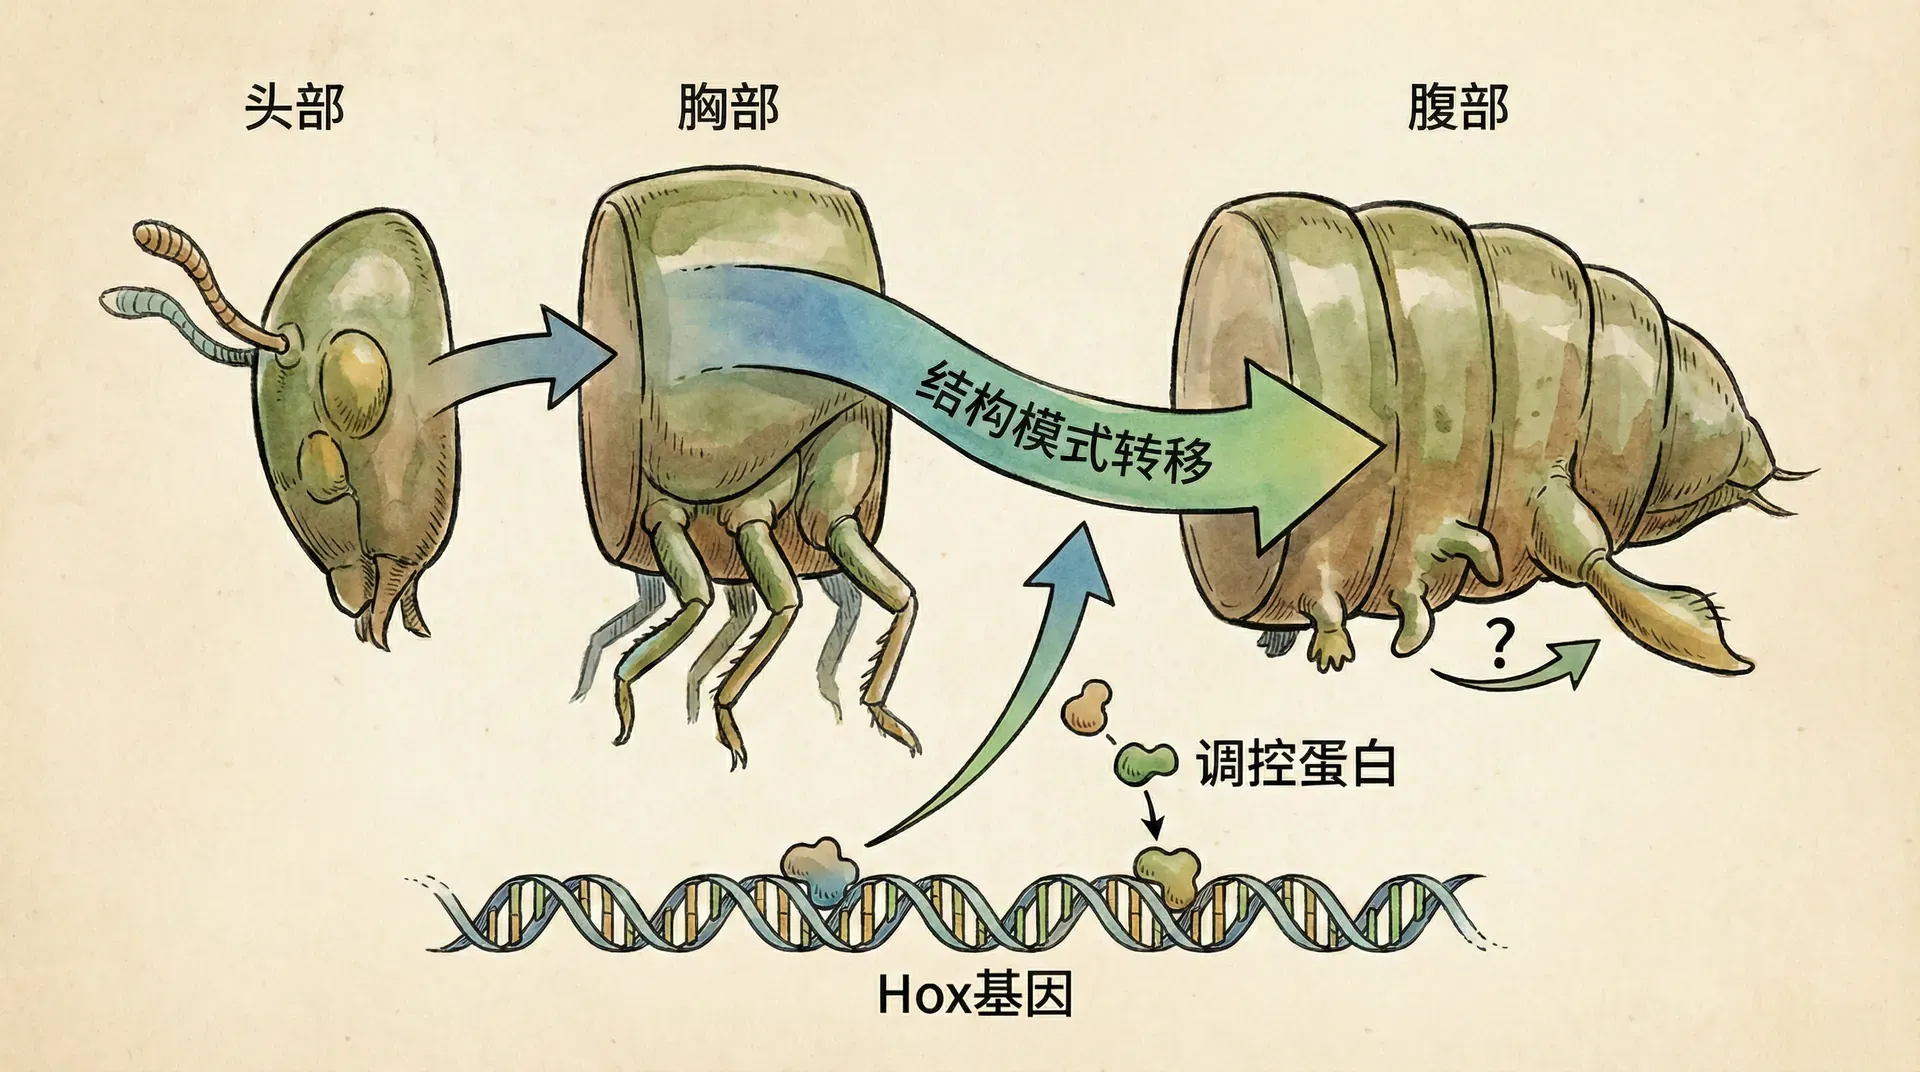
同态流强调系统维持某种变化轨迹的倾向,而稳态通常关注变量在一定范围内的调节。例如,体温可以在适宜范围波动,发育则涉及结构随时间有序变化。
稳态不是固定在一个精确数字上,同态流也不是无论受到多大干扰都沿原路前进。二者描述的重点不同,不必按“短期”和“长期”划出绝对界线。
比较维度 | 稳态 | 同态流 |
|---|---|---|
| 维持对象 | 变量在一定范围内 | 相对稳定的变化轨迹 |
| 时间尺度 | 取决于调节过程 | 取决于发育过程 |
| 典型例子 | 体温和血糖调节 | 有序发育过程 |
| 调控机制 | 常涉及负反馈 | 涉及多层调节与反馈 |
| 目标参数 | 允许波动的范围 | 随时间变化的状态 |
沃丁顿的表观遗传景观用小球沿沟谷运动来帮助理解发育路径。沟谷是概念图,不是细胞内真实存在的轨道,也不是对所有分化过程的精确计算。这个比喻把注意力引向两件事:某种状态之后有哪些可能的变化方向,以及这些方向如何受到已有条件限制。它的作用是帮助组织问题;要解释某种细胞实际走向哪条发育路径,仍需回到具体的信号、表达和细胞联系。
研究鱼类发育时,可以比较不同条件下同一发育指标随时间的变化,但必须说明物种、温度、营养和测量方法。
- 如果比较养殖密度,需要控制其他条件,避免把水质和食物差异混在一起。
- 如果比较生长速度,需要统一起点和测量指标,不能把体重增加直接等同于细胞分化程度。
这里展示的是设定的发育轨迹,用来观察速率和终点的区别。不同轨迹不证明所有鱼都按同一S形规律发育,也不说明高密度必然造成某种固定体型。读一条变化轨迹时,可以先比较相同时间的状态,再比较达到相同状态所需的时间。前一种读法关注当时相差多少,后一种关注进程快慢;即使最后接近,之前经历的路径也可能不同。
渠化指发育结果对某些遗传或环境扰动表现出相对稳定性。它与细胞分化潜能逐渐受限有关联,但两者不能画等号:一个强调对扰动的缓冲,一个描述细胞能够形成哪些类型。
稳定可以表现为维持一个范围,也可以表现为维持一种有序变化。描述稳定性时,要同时说明观察指标、扰动条件和时间尺度。
获得性状的遗传
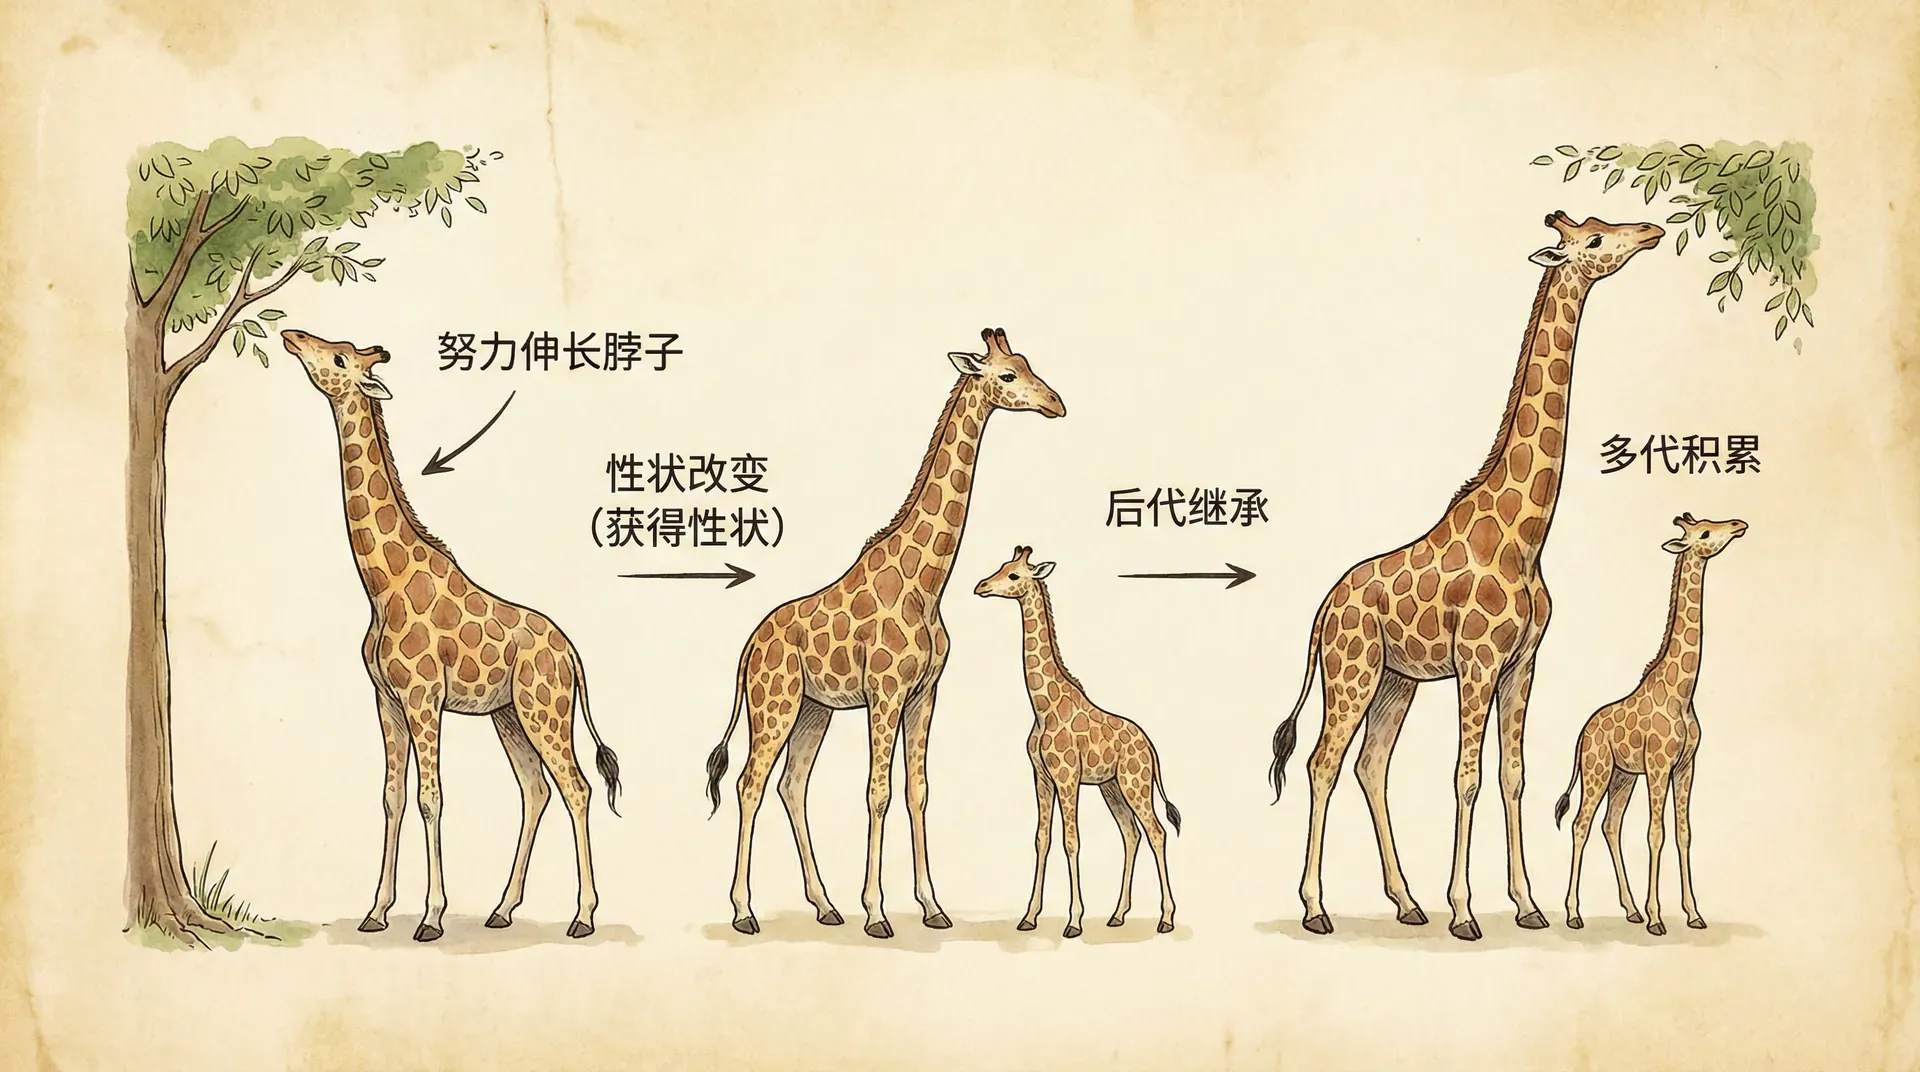
环境使某种表型出现,并不意味着这种变化会自动遗传。判断后代是否保留它,需要排除持续暴露、亲代提供的营养、共同环境等因素。如果亲代和后代一直处于相同的诱导条件,即使都出现同一表型,也可能是每一代分别对环境作出了响应。因此,是否撤去原来的条件,是组织比较时的重要一步,而不只是记录表型后再补充的细节。
遗传同化描述一种特定结果:最初需要环境诱导的表型,经过多代选择后,可以在没有原诱导条件时出现。选择作用于影响表型的可遗传差异;这不等于把个体获得的变化直接复制进DNA。
| 对比维度 | 一般遗传性状 | 遗传同化 |
|---|---|---|
| 性状来源 | 遗传背景与发育条件共同作用 | 最初环境诱导,随后经多代选择 |
| 环境依赖性 | 表达同样可受环境影响 | 对原诱导条件的依赖降低 |
| 变化速度 | 取决于变异与选择等条件 | 没有通用的加速倍数 |
| 遗传条件 | 需检验可遗传的差异 | 需检验撤去诱导后的后代表型 |
案例举隅
- 果蝇的交叉脉实验:沃丁顿对蛹进行热处理,部分成虫出现翅交叉脉缺失。经过多代选择,在一些后代中不再进行热处理也能观察到这一表型。关键证据是撤去诱导条件后的表现,而不只是受处理个体越来越多。
- 金鱼的人工选育:人工选择可以改变性状频率,但某种金鱼性状经选育稳定,并不足以证明它最初由环境诱导、随后发生遗传同化。
- 高原适应:涉及遗传变异与环境的关系,但不能只凭群体差异就把它当作遗传同化的经典实证。需要独立检验历史与机制。
读取这里的设定结果时,要特别区分“撤去条件后表型减少”和“撤去条件后仍稳定出现”。前者可符合环境依赖的可塑性,后者才是判断遗传同化需要继续检验的现象。
- 受处理群体中性状比例升高,本身不足以证明遗传同化。
- 是否能在共同环境下延续,需要对子代作比较。
- 表型的形成机制、选择造成的遗传变化与表观状态的传递,需要分别研究。
遗传同化把发育可塑性与选择联系起来,但没有取消遗传差异和繁殖的作用。判断它是否发生,关键是检验后代对原诱导条件的依赖是否改变。
隐性变异
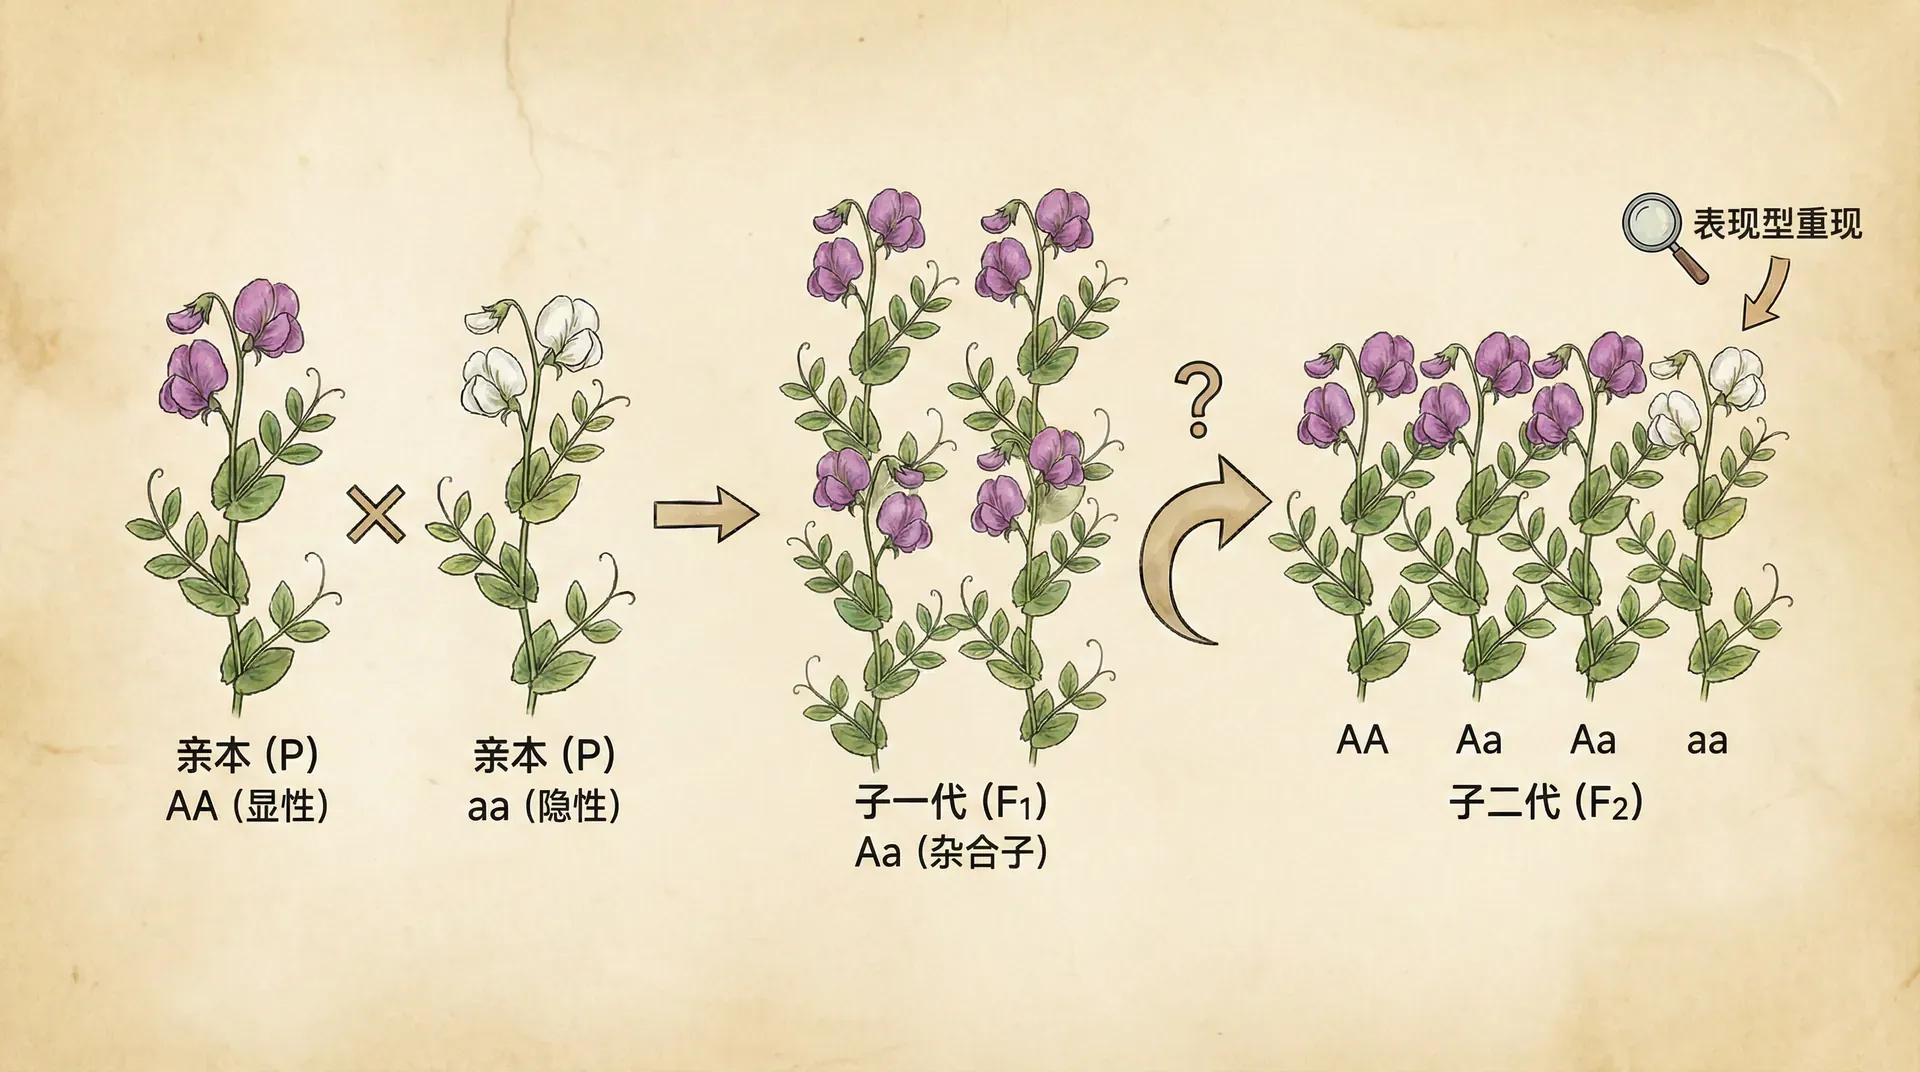
这里的“隐性变异”指在某些条件下表型效应不明显的潜在遗传变异,不等同于孟德尔遗传中的隐性等位基因。环境或调控状态变化后,原先不明显的差异可能表现出来。可以把问题分成“差异是否存在”和“差异是否表现出来”两层。外形相近只说明当前观察到的表型接近,并不能据此判断遗传背景完全相同。改变观察条件后出现差异,还需要回头核对它原本是否已经存在。
模型一:缓冲释放模型
某些分子系统能缓冲遗传差异的表型效应。Hsp90是一类分子伴侣,参与多种蛋白质的正常功能。在特定果蝇实验中,改变其功能后可以观察到与遗传背景相关的形态差异。
- 缓冲存在时,部分遗传差异不容易从外形上辨认。
- 缓冲条件改变后,差异的表型效应可能变得明显。
这不意味着DNA中的变异数量在那一刻必然增加,也不意味着出现的形态变化都有利。
模型二:动态产生模型
新的DNA变异也会产生,例如转座元件活动可能带来插入变化。某些胁迫条件可以影响特定转座元件的活动,但“转录增强”“形成新副本”和“插入被后代继承”是不同步骤。
- Hsp90研究主要帮助区分遗传背景与表型缓冲,不能仅凭外形变化断定出现了新突变。
- 植物转座研究在特定实验条件下观察到胁迫相关的转座活动;这些结果不能外推为植物遇到压力就会定向产生有利变异。
两类设定结果分别帮助理解“已有差异变得可见”和“产生新的遗传变化”。它们的数值不是通用的变化速率,也不能据此判断哪一种机制的适应能力更强。
新变异可能有害、近乎中性或在特定环境中有利。产生变异与变异在群体中保留,是需要分别解释的过程。可以把前者理解为差异的来源,后者理解为这些差异随繁殖在世代间怎样延续。某种变化刚出现时,并不能只凭外形新奇判断它的后续命运;它是否影响存活与繁殖,还要放在相应环境中考察。
胁迫影响变异出现的机会,不等于生物按需要制造有利变化。讨论演化时,要把变异来源与后续选择分开。
总结
表观遗传、发育可塑性和遗传同化彼此有关,却不是三个同义词。遇到一个环境影响性状的例子,可以依次问:DNA序列是否改变,状态维持多久,是否经过细胞或个体世代,撤去环境条件后还会不会出现?
这些问题能帮助理解农业、发育和健康研究,也能避免把关联当作机制、把个别实验当作普遍规律。对应用效果的判断,还需要相应的实验和实际验证。
可靠的解释既说明变化如何发生,也说明它能维持到什么程度。理解遗传信息与细胞状态的区别,是继续学习基因表达和演化的基础。把这些判断方法用于一个新案例,比记住“环境能够影响基因”更有用:前者可以检验证据,后者只是研究的起点。