德尔布吕克模型
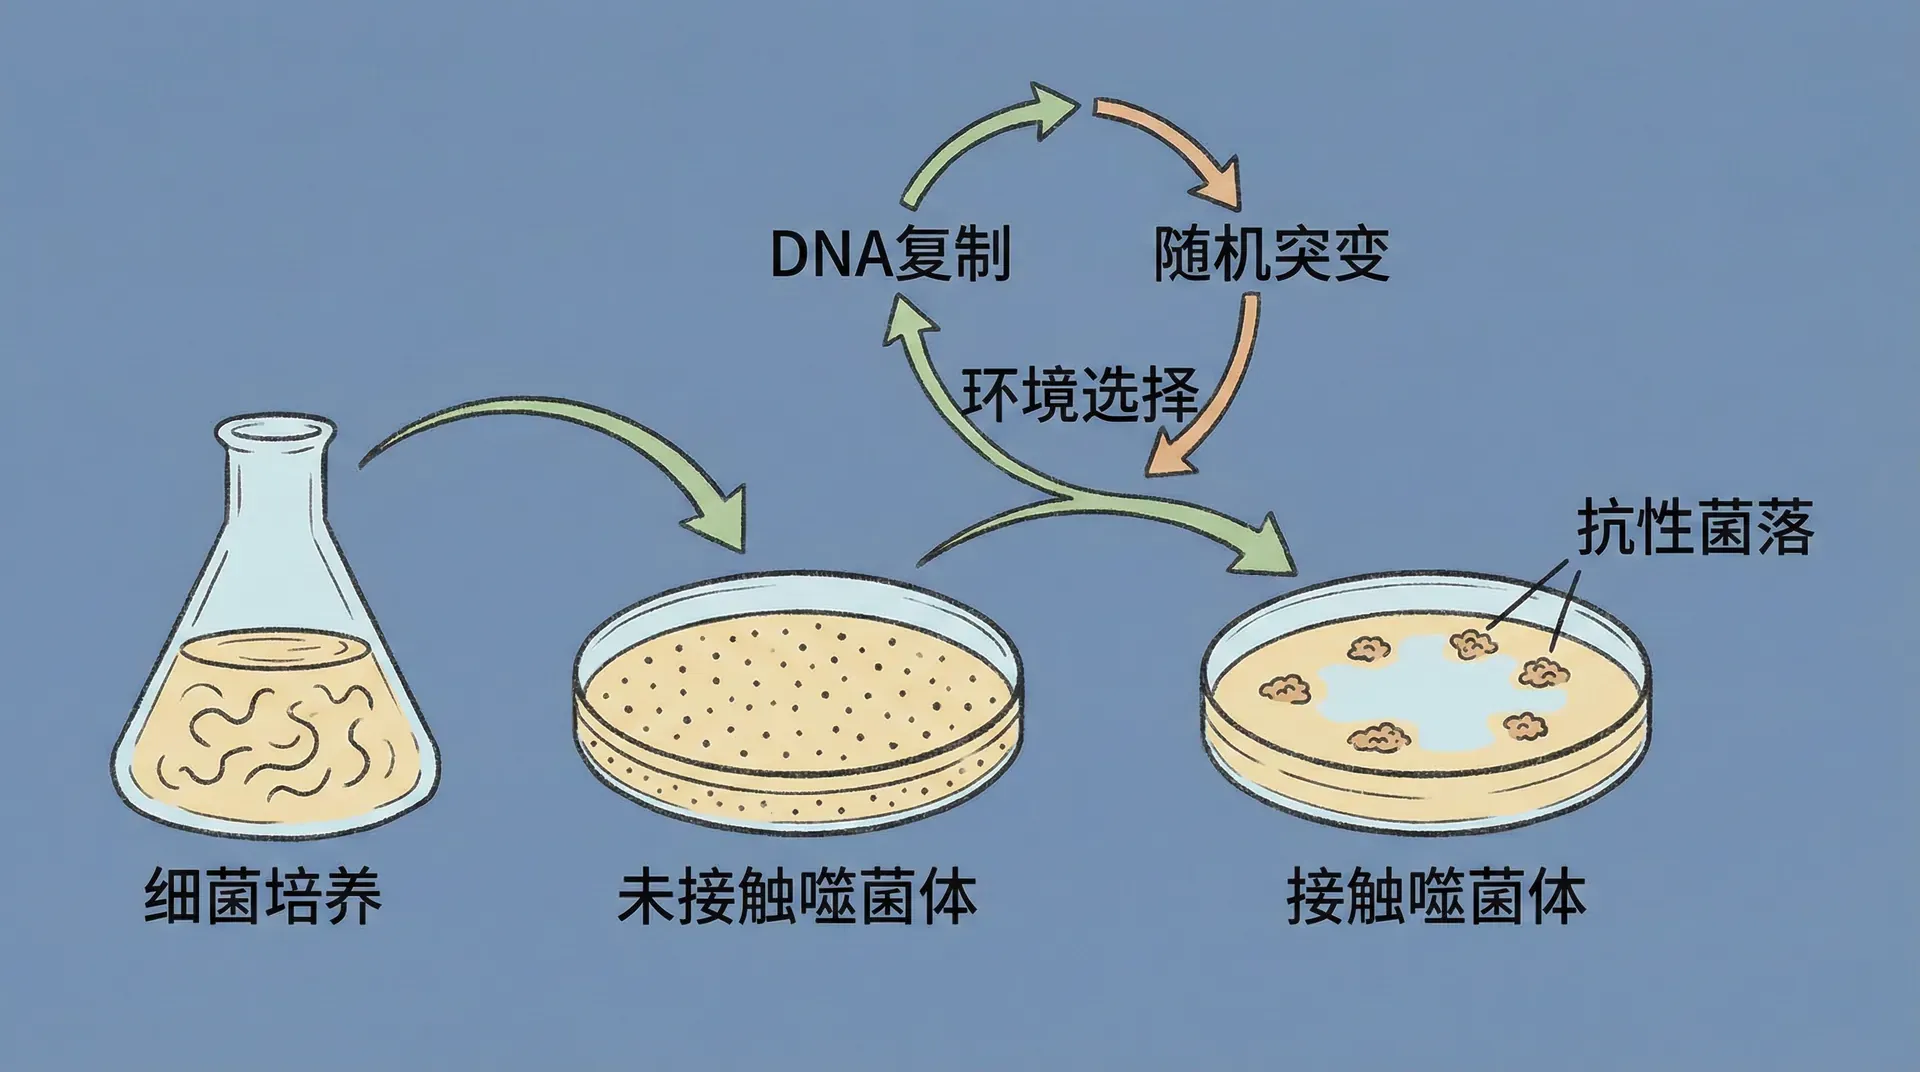
在能够直接读出DNA序列以前,研究者已通过遗传实验知道:遗传单位可以稳定传递,也会发生变化。德尔布吕克等人的早期工作把问题推进到分子尺度,尝试用稳定构型和结构转变来理解这种联系。
这是一段科学认识发展的历史。它的价值在于把遗传问题转化为可以讨论的物理问题,而不是提前给出了DNA复制、修复和突变的全部答案。
分子层面的遗传密码
可以把早期模型的推理拆成几步:
- 遗传单位有物质基础,不能只是性状的名称。
- 它需要在日常条件下较稳定,才能延续已有信息。
- 稳定并不排除改变,结构之间的转变可能较少发生。
- 若转变能够留下持久后果,就有可能与可遗传变化联系起来。
最后一步是需要实验检验的联系,不是从能垒概念中自动推出的事实。现代所说的等位基因涉及序列版本,普通分子构象变化并不必然产生新的等位基因。
将遗传单位看作具体的分子结构,使“稳定”和“变化”成为可以研究的物理性质。但要确认一次变化属于突变,还需要判断DNA序列是否发生了持久改变。
把一个结构想成位于能量低处,可以帮助理解它为什么暂时保持原样。低处之间若有障碍,转换就可能较慢。这个比喻适合解释变化速率,不能说明DNA在细胞里是完全不动的,也不能代替复制过程。
单个分子的化学键断裂或突变概率虽然极低,但在大量个体和足够长时间尺度下,这些罕见事件依然可能不断积累,这就是为何遗传变异能在群体中持续出现。比如,在细胞总数极其庞大的生物体中,即使每个细胞的突变发生概率很小,长期累积下来,罕见事件也会变得可见。
然而,个体分子的变化并不直接决定种群层面的遗传结果。新突变是否能传给后代、是否影响生殖能力,以及在种群中的分布和持久性,还要受到生物体复制、修复机制、选择压力等多种复杂过程的影响,因此不能仅仅依据一个分子的能垒或偶发事件推断宏观遗传模式。
量子理论框架下的分子键合
讨论遗传单位的物质稳定性,就需要理解原子为什么能够形成分子。量子力学帮助解释电子分布与化学键,而这些结构关系决定了分子可以有哪些形态。
从这种基础出发,可以分开三个层次:化学键使特定连接成为可能,能垒影响连接改变的速度,细胞中的复制与修复机制影响遗传信息的延续。三个层次有关联,却不能压缩成“有化学键,所以复制不会出错”。
也不能把“量子理论解释键合”扩展为任何历史模型都已被精确验证。具体模型仍要说明参数怎样测得、预测什么,以及结果与其他解释相比有什么不同。
物质聚集态的新分类体系
比较分子与晶体,可以帮助理解稳定连接与有序排列。但“分子”描述组成单位,“固体、液体、气体”描述聚集状态,“晶体”描述结构有序性,它们并不处于同一分类层次。
因此,DNA和蛋白质不能仅因具有稳定化学键,就被归入一个与“经典流体”对立的“量子固体类”。液体中的分子同样服从量子规律;非晶态材料也不等于液体。历史上的比较有启发性,但不能替代现代物质分类。
非周期性有序结构的概念
薛定谔讨论遗传物质时使用了“非周期性晶体”的历史表述。理解这个说法,可以先比较两种排列:
- 简单重复:同一结构单元反复出现,知道重复规则,就能描述很长一段排列。
- 不按简单周期重复:组成单位种类有限,但次序可以变化,记录具体排列需要更多信息。
“非周期性晶体”强调的是稳定结构与丰富排列可以并存。它是一种历史性的物理设想,不表示细胞中的染色体就是静止的晶体,也不表示DNA完全没有重复序列。
文字可以帮助理解次序的重要性:使用相同的一组字,排列改变,意思也可能改变。类似地,碱基种类有限并不妨碍DNA形成多种序列。但生物功能并不是读者赋予文字的意义,它要通过细胞中的分子过程实现。
遗传密码的信息容量
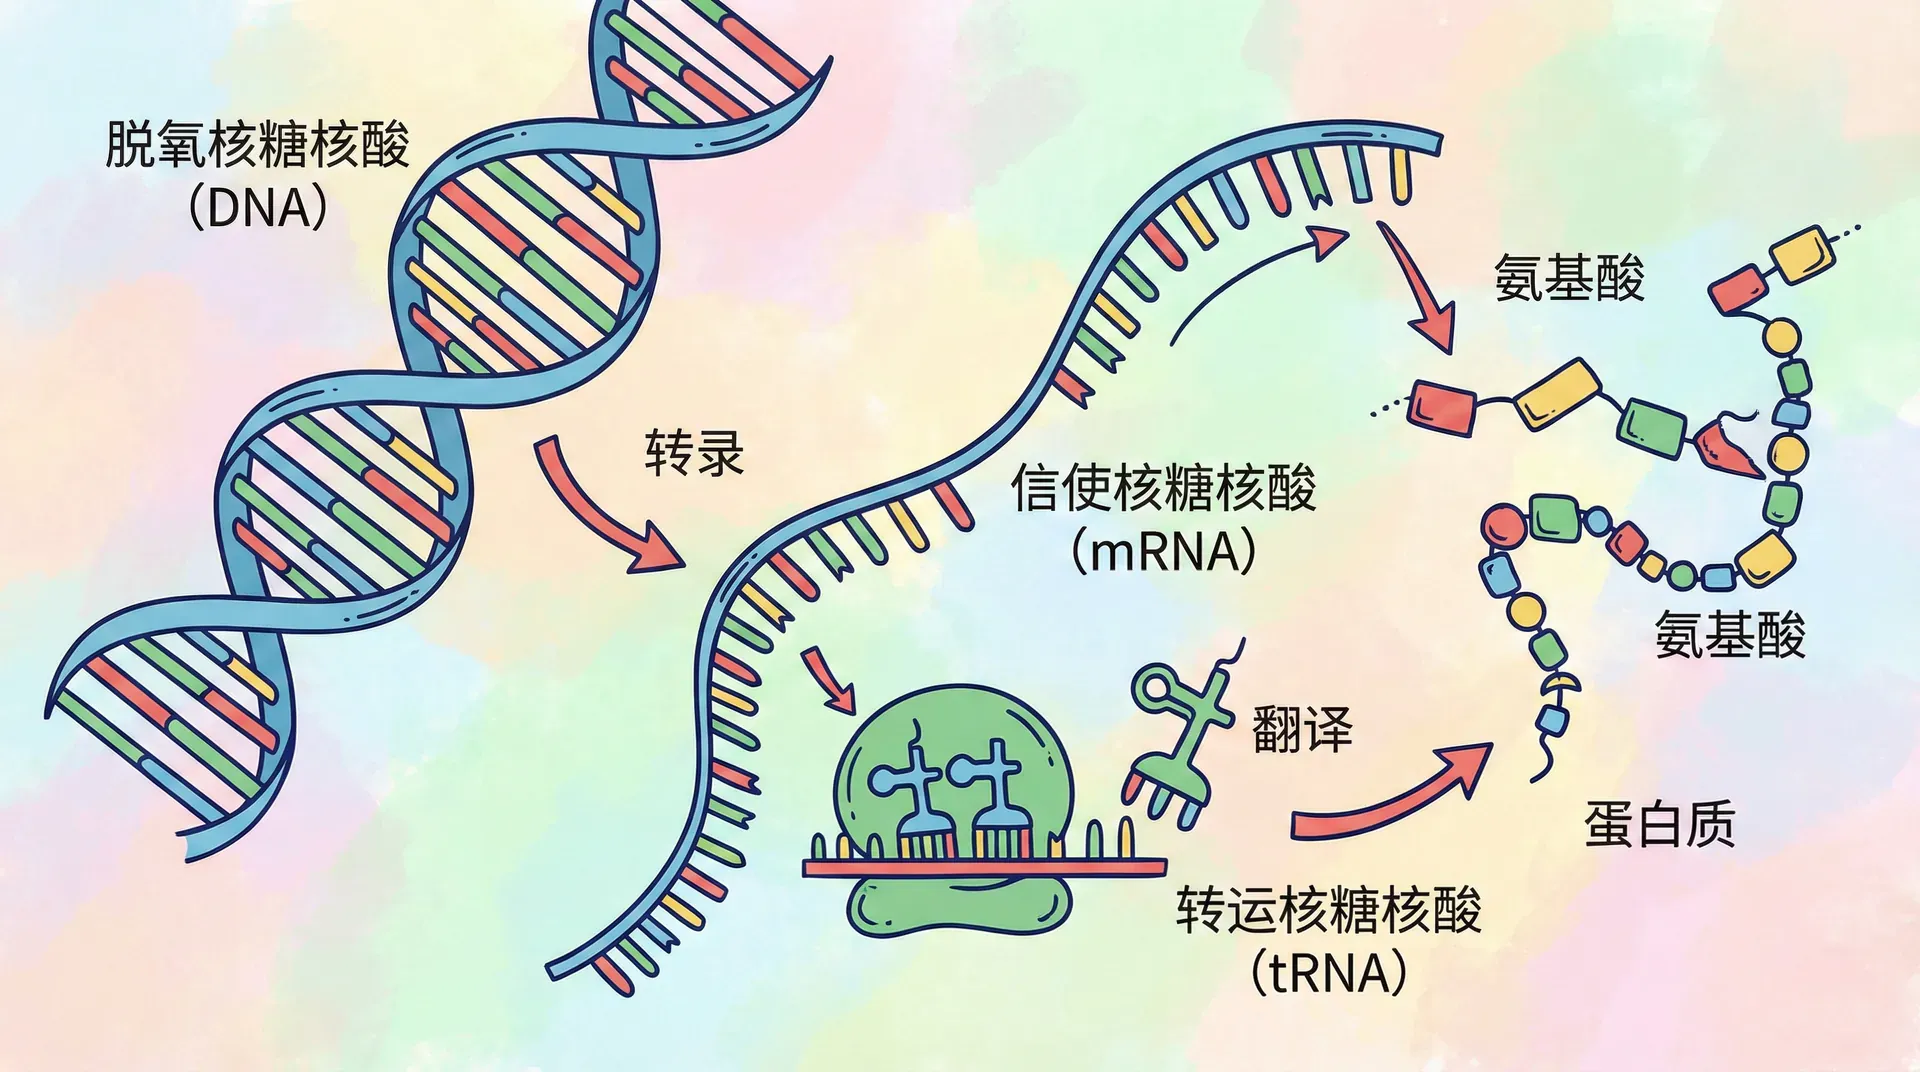
为什么少数种类的组成单位能够形成大量不同序列?先做一个纯粹的组合计算:如果每个位置有4种选择,而且暂不加其他限制,长度为的序列就有种排列。
长度为1时有4种,长度为2时有16种,长度为3时有64种。每增加一个位置,排列数都乘以4。这一结果来自组合规则,不需要假定分子具有特殊的“无限容量”。二进制序列同样有指数增长的组合数,只是每个位置有2种选择。
还要区分“可能排列的数量”和“具有某种功能的序列数量”。前者可以按设定规则计算,后者取决于结构、调控和环境,不能直接从读出来。不是每一种可能序列都能支持生命活动。
这个比较说明,长度和次序都影响信息空间。要知道一段真实DNA做什么,还需要分析它在细胞中怎样被使用;组合数量本身不等于对发育过程的完整解释。
基因稳定性的实验证据
观察到遗传特征较稳定,并不等于直接测得某个基因分子的“寿命”。序列能够通过复制延续,而原来的分子可以被更新。比较稳定性证据时,需要区分单分子结构保持的时间、复制保真度与代际传递。
若只研究一个热激活过程,采用并固定秒,可得到以下计算:
这些数值由公式产生,属于模型计算,不是“已经测得的基因寿命”。若要验证模型,需要独立的观测与明确的参数来源;把计算值再当作证据,会形成循环论证。
自然选择与基因稳定性
复制和修复的可靠性会影响生物维持功能,但不能据此推断自然选择给每个基因设定了一个恰到好处的统一能垒。不同变化的原因不同,影响也不同。
突变产生新序列,选择影响可遗传差异所对应的繁殖结果,随机过程也影响遗传版本的延续。它们并不是一个有目标的工程师在不断调节同一只旋钮。
“稳定的信息能够延续”不等于“所有变化都会被淘汰”。是否产生影响,要看具体变化和环境;是否保留下来,也不能仅凭有利或有害两个词预先决定。
温度对基因突变的影响规律
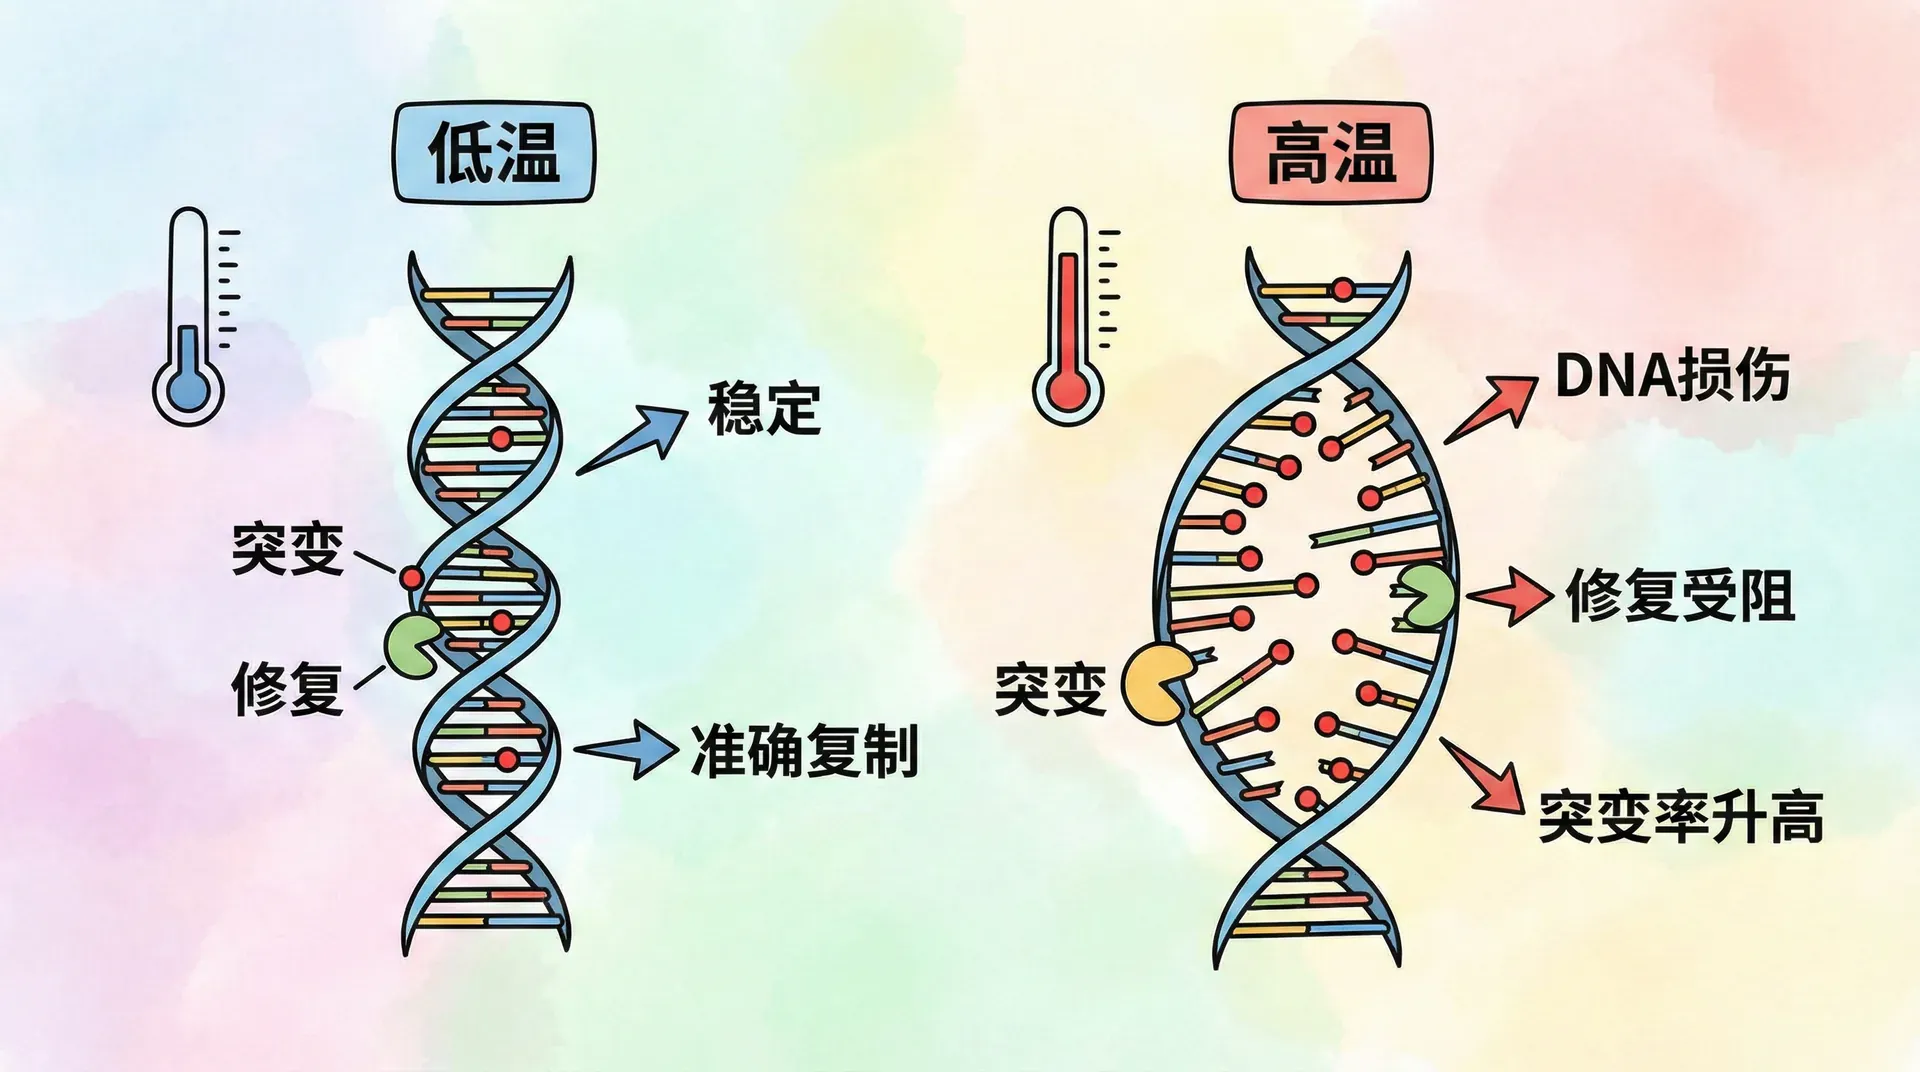
在同一热激活模型中,固定正的能垒和前因子,有
当升高,指数减小,平均等待时间缩短。比较两个温度可以写成:
温度必须用开尔文。这个式子也表明,“升高10℃就变化固定几倍”不是普遍结论,倍数还取决于初始温度与能垒。
把这种关系用于真实突变率时,需要确认所研究过程是否符合这些假设。温度还可能影响复制、修复、存活和其他细胞过程,因此不能只凭一条计算关系宣称模型已完整解释了实验。
X射线诱发突变的机制原理
电离辐射能够沉积能量,并直接或间接引起分子损伤。但它不是只瞄准一个基因的“精确打击”,损伤也不必然固定成突变。
早期模型尝试用局部事件理解辐射作用,现代研究则需要进一步区分能量沉积、DNA损伤、修复及序列改变。用“局部加热”一词概括所有过程,会漏掉这些不同环节。
模型的成功验证
要判断一个模型在哪些方面得到支持,应比较它的具体预测与独立证据,而不是只看它能否讲出一个连贯故事。稳定传递、诱变现象和温度关系,分别约束模型的不同部分。
早期分子模型的重要贡献,是让遗传单位成为可用物理与化学讨论的研究对象。但这一贡献不等于证明“等位基因就是同分异构体”,也不等于用一条平均等待时间公式就能预测全部突变。
检验模型时,可以问:参数从哪里来?计算结果与观测是否独立?相同现象还有没有其他解释?回答这些问题,才能区分启发性设想、符合趋势和充分验证。
稳定结构解释了遗传信息为何能够被保存的一部分原因,持续的细胞活动又提出另一个问题:复制、修复和组织维持都在进行,维持这些过程的物质与能量从哪里来?