叶绿体基因表达系统
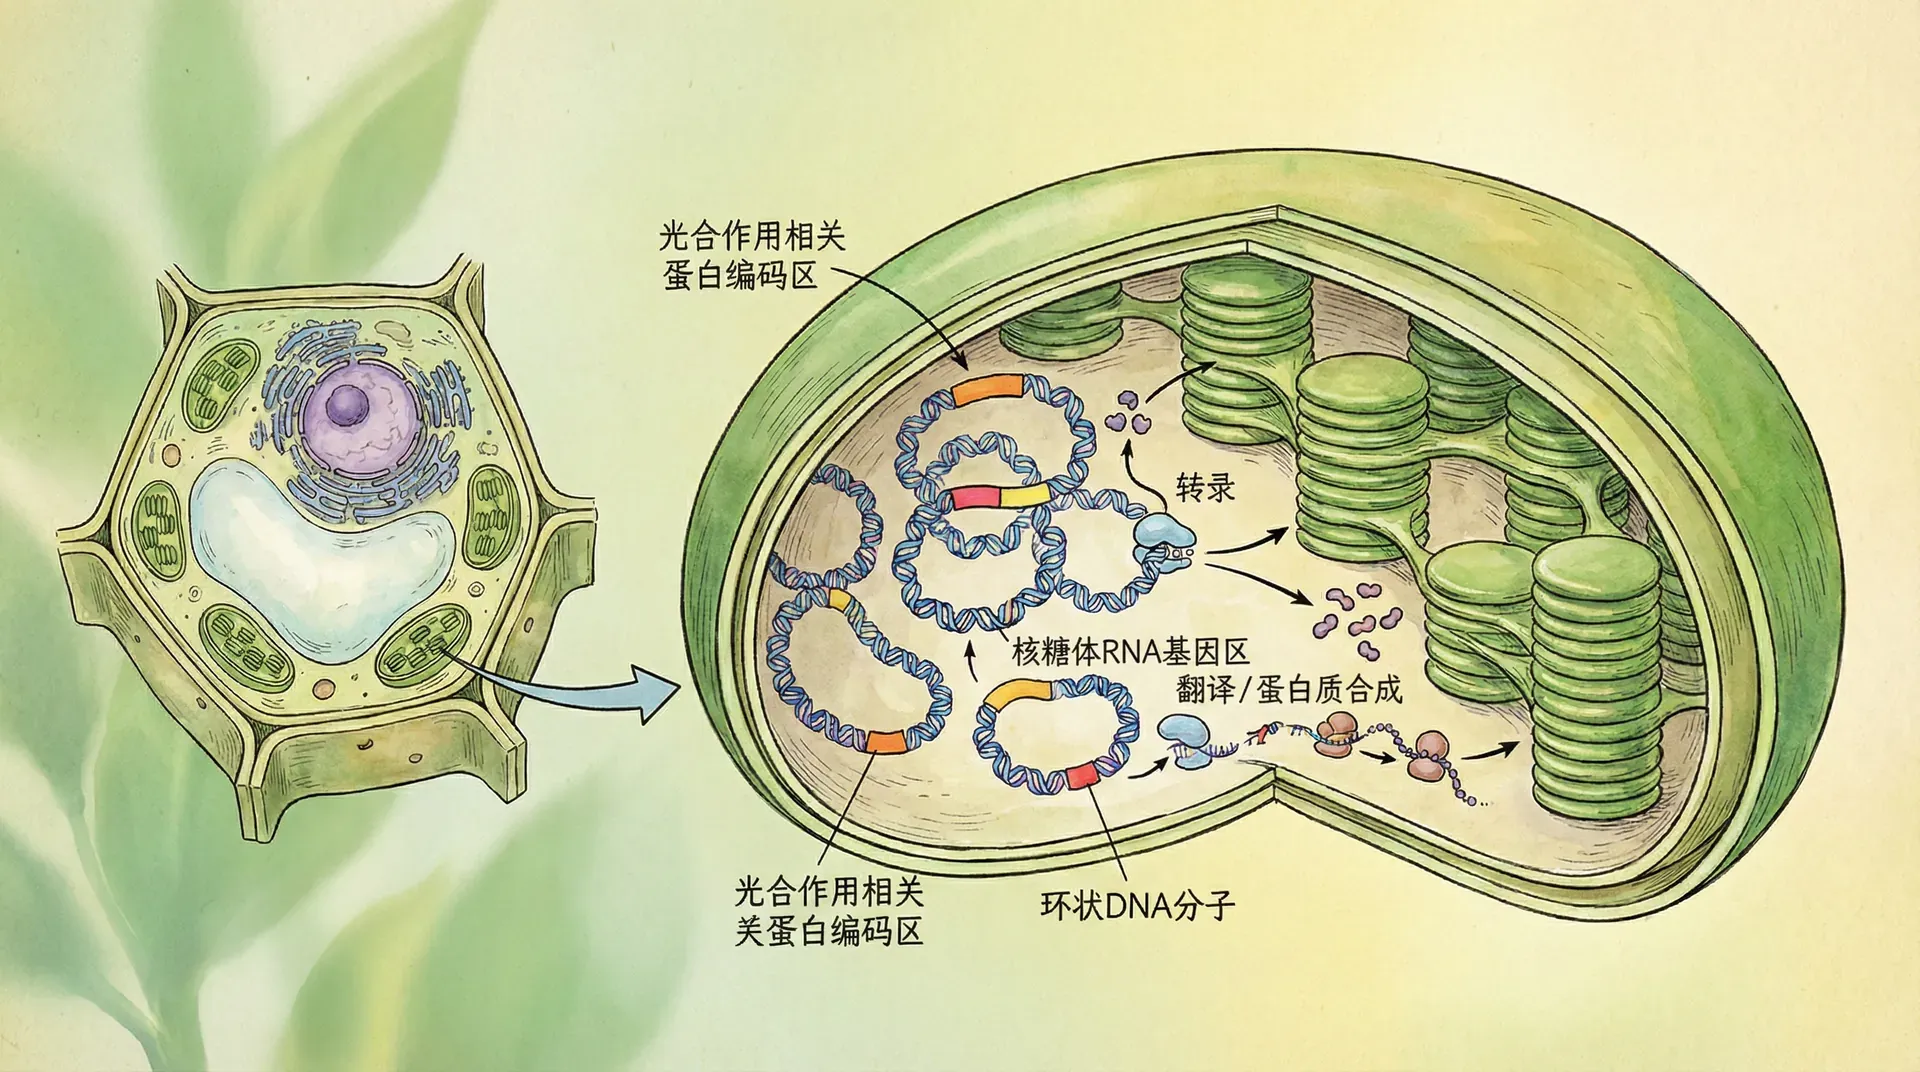
叶绿体通过光合作用把光能转化为可用于合成有机物的化学能,同时参与脂肪酸、氨基酸和色素等多种代谢。它并非独立工作的“动力工厂”:大量叶绿体蛋白由核基因编码,在细胞质合成后输入叶绿体,细胞核与叶绿体基因组必须持续协调。
在我国广袤的农田,南至江南水乡的水稻,北至黑龙江玉米带,西至黄土高原的小麦,每一片绿色叶片中都蕴含着数以亿计的叶绿体,它们默默地将阳光“收割”为人类赖以生存的食物。叶绿体普遍分布于叶肉细胞、幼枝以及发芽的幼苗之中,它们的活跃与否直接决定了作物的生长速度与产量高低。
叶绿体不仅是光合作用的中心场所,还承担着诸如氨基酸合成、脂肪酸代谢、色素与激素合成、硫和氮的同化等多项复杂生理和代谢活动。正因如此,叶绿体常被称作植物细胞中的“生化工厂”,其多功能属性使其对植物整体生理状态和抗逆性具有根本影响。
从结构上来看,叶绿体具备以下几个主要特点:
-
双层膜结构:叶绿体由内外两层膜包裹,将其与细胞其它部分有效隔离。
-
类囊体系统:内部含有层状排列的类囊体,有助于高效吸收与转化光能。
-
独立基因组:叶绿体内有自身的遗传物质,即叶绿体基因组。
① 基因组通常较小(一般约120-160 kb,总体不超过150 kb),但保留着约100个功能基因。
② 这些基因主要负责编码光合作用所需的蛋白,以及与转录、翻译和代谢相关的分子。
-
进化特征:与细菌基因组相比,叶绿体基因在进化过程中经历了大规模丢失和转移,但同时也发展出复杂高效的遗传调控机制,增强了植物的适应能力。
一个叶绿体可含多份基因组,一个叶肉细胞又含多个叶绿体,因此质体DNA通常具有较高拷贝数。但拷贝数会随物种、组织、发育阶段和测量方法改变,也不直接等同于蛋白合成能力。理解这一点有助于区分“模板多”与“表达强”这两个概念。
双重转录系统的协调工作
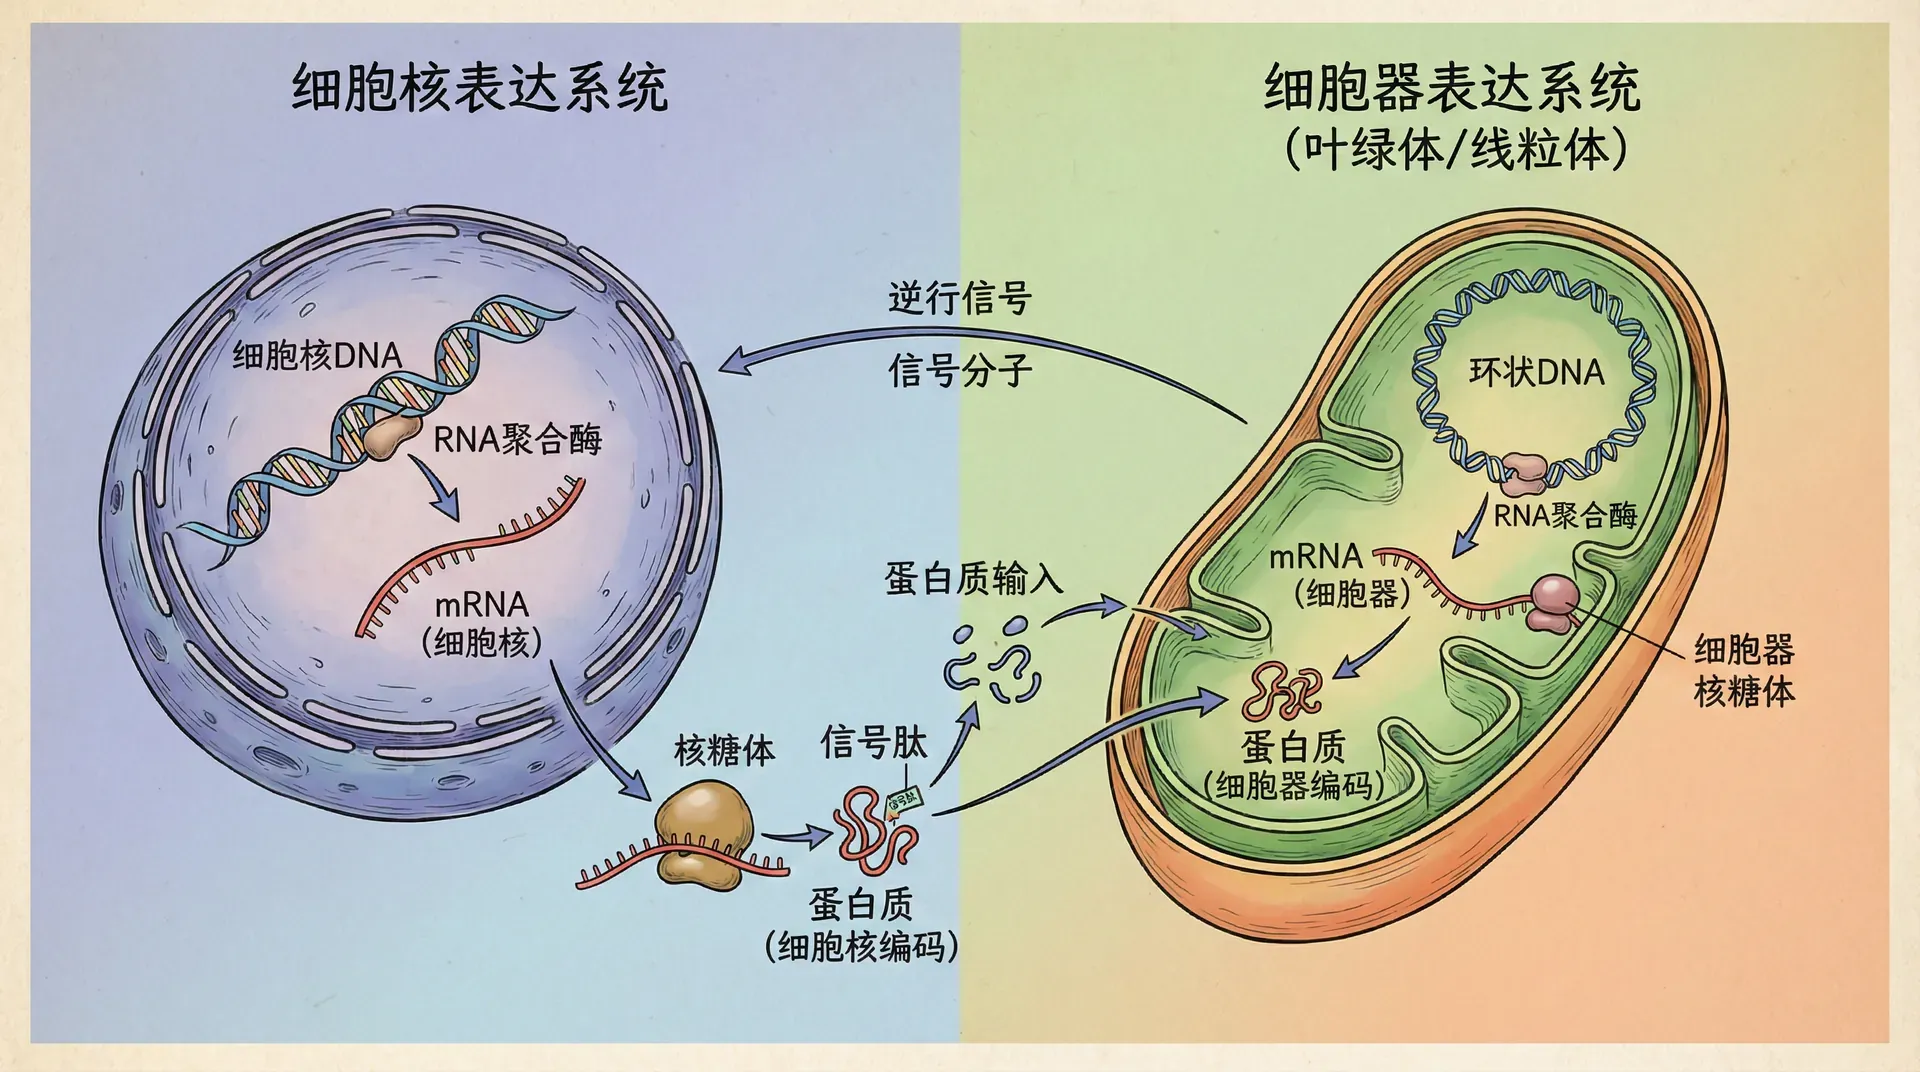
叶绿体转录由两类RNA聚合酶承担:质体编码的PEP和核编码的NEP。PEP保留细菌型多亚基核心,NEP属于噬菌体型单亚基聚合酶。许多叶绿体基因可由两者共同转录,分工并非一基因只对应一种酶。
质体编码RNA聚合酶(PEP)主要负责那些与光合作用直接相关的基因的转录,包括反应中心蛋白、光系统I、II等;而细胞核编码的RNA聚合酶(NEP)则偏重维持细胞基础功能和结构相关的“管家型”基因表达。
在叶绿体的发育历程中(以水稻为例),PEP和NEP的活性存在动态的时序调控,并非一成不变,其主要特点可总结如下:
PEP与NEP的相对作用会随质体发育和环境变化。幼苗从暗处转入光照时,核编码因子参与组装和调节PEP,光合作用相关基因的转录增强;NEP继续承担部分基础转录任务。更准确的图景是两套系统交叠协作,而不是简单接力。
- 快速生长期:
- 叶片功能逐渐完善。
- PEP活性显著上升,主导光合作用相关蛋白的大量表达。
- 满足能量转换和同化物质合成量剧增的需要。
这种交替主导和动态调控,不仅是植物生长发育的需求使然,更是对外部环境变化的一种适应。以水稻为例,在苗期种子内贮存的养分尚能满足新生组织的基本需要;但随发育推进,外部光能成为植物生存的决定性条件,PEP系统的激活直接关联到光合速率的提升。
RNA聚合酶系统的分子机制
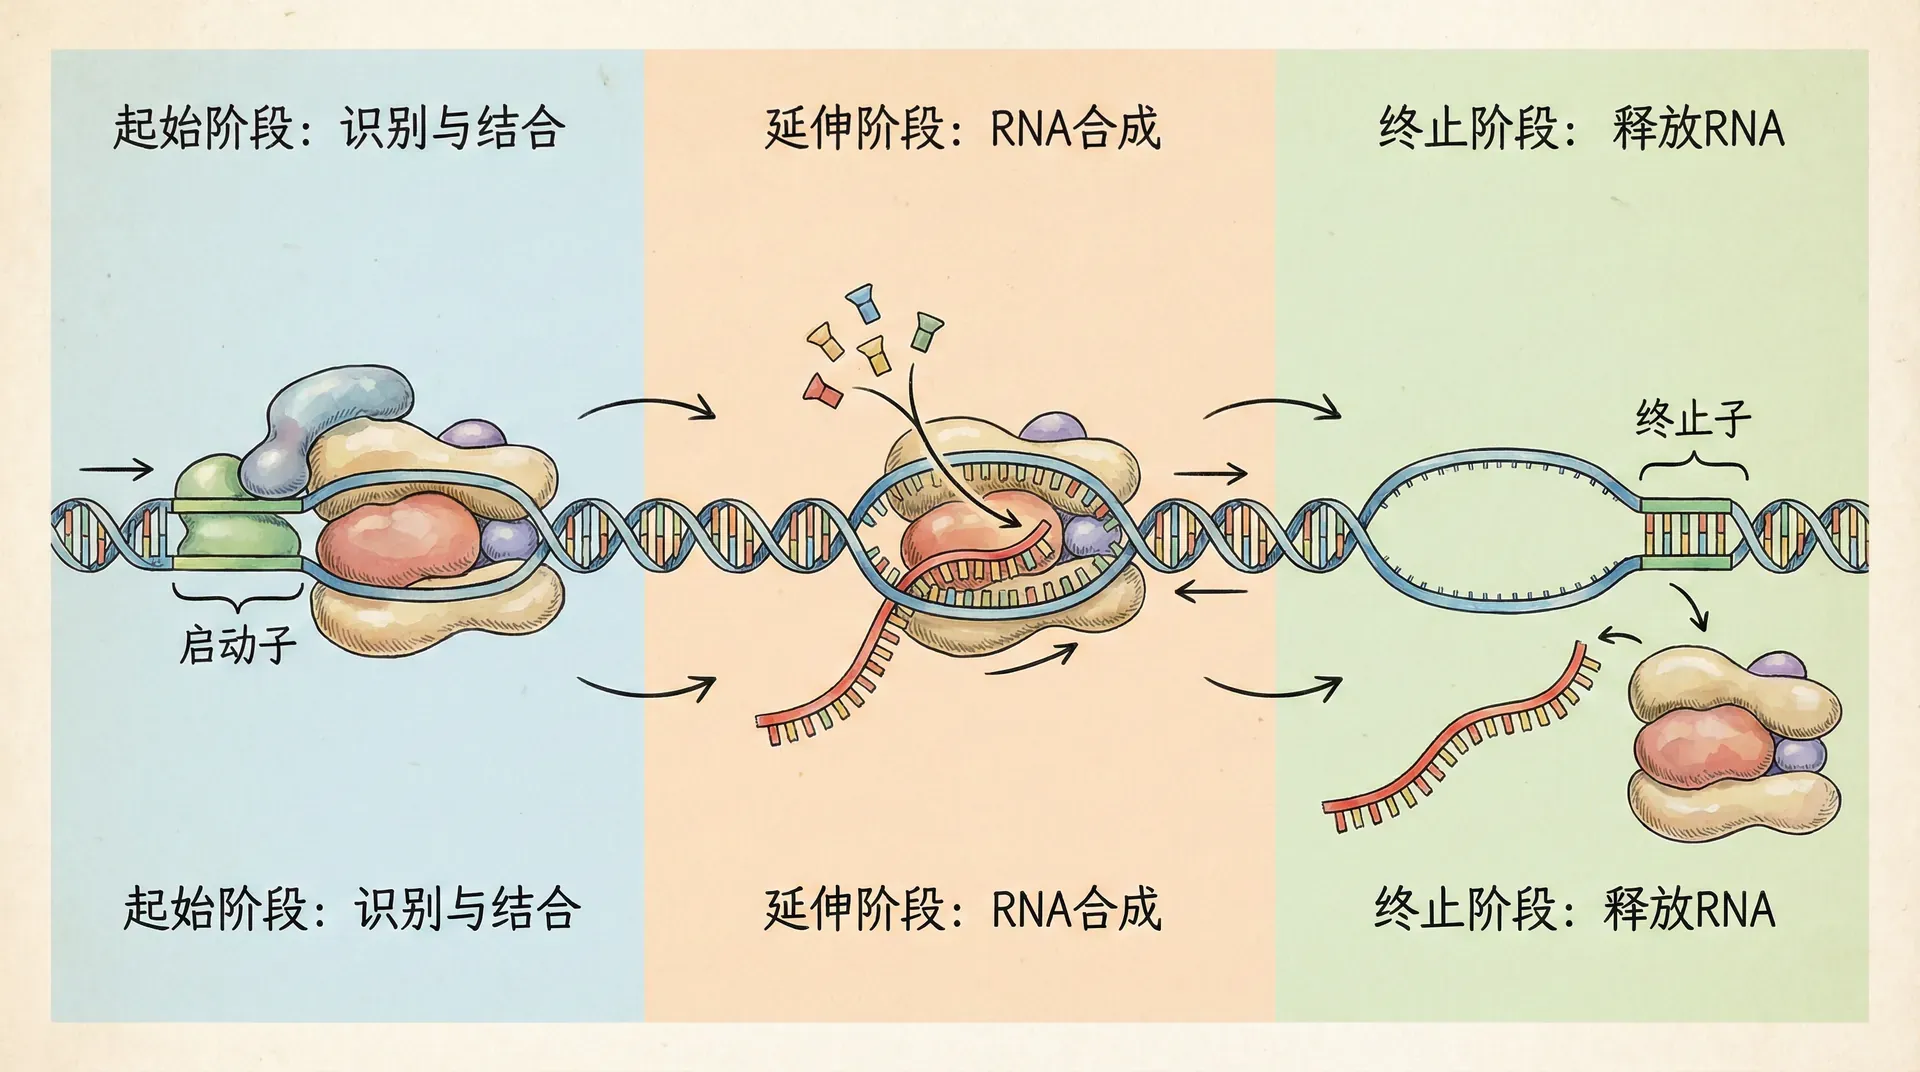
PEP和NEP系统在分子结构与调控方式上各具特点。PEP系统与蓝藻和细菌的DNA依赖型RNA聚合酶同源,由多种亚基组装而成,并在高等植物中进一步集成了十几种核编码的辅助蛋白,如PAP(PEP-associated proteins)。这些辅助蛋白增强了PEP对复杂启动子的识别与调控能力,并使PEP成为一个重量超过1兆道尔顿(MDa)的巨大转录复合体。成熟叶片中,PEP不但负责光合相关蛋白的高效表达,还对一系列逆境应答基因具有调节功能。
NEP是核编码的噬菌体型单亚基RNA聚合酶,蛋白在细胞质合成后被导入质体。它不因为结构较小就能天然“迅速感知外界信号”;光、发育和胁迫信息通常通过核基因表达、蛋白导入、磷酸化和氧化还原状态等多层过程影响转录。
叶绿体发育中的基因表达模式
叶绿体基因表达在不同时空阶段呈现出有规律的变化。以小麦为例,从种子萌发到绿叶完全展开,基因表达的高低受到功能需求和外部刺激的共同调控。其主要特点包括:
早期阶段:
- 主要高表达“管家基因”,如:
- rpoB:RNA聚合酶亚基基因,保障基础转录;
- clpP:蛋白酶亚基基因,维持蛋白质稳态;
- 这些基因支持叶绿体结构的建立与基本功能的维持。
成熟阶段:
- 光合作用相关基因逐步上调,如:
- psaA:光系统I核心蛋白基因;
- psbA:光系统II核心蛋白基因;
- 到叶片伸展、光合需求达到高峰时,其表达量达最大值。
这种按阶段有序的基因表达保障了叶绿体的正常发育和光合功能的高效实现。
这些表达模式不只是动态数据的变化,更蕴含着叶绿体进化和功能分化的精妙机制。稳态的管家基因表达确保了基础代谢与细胞器结构的健全,而光合作用相关基因的时空激活,则保证了植物在合适时间点具备最优光合性能。这种分级、分区的精细化表达,使得植物能适应多变环境和不同生长速率的需求。
光环境对基因表达的调控
光环境会通过光受体和细胞内信号改变核基因表达、质体蛋白导入以及PEP复合体状态,进而重塑叶绿体转录。波长、强度、光周期和叶片发育阶段都重要,因此不能把某种光直接对应到一组固定叶绿体基因。
研究发现,不同光信号通过不同受体影响叶绿体基因表达,具体包括:
- 蓝光信号:主要通过隐花色素(cryptochrome)受体,影响叶绿体的整体转录活性,推动相关基因高峰表达。
- 红光信号:依赖光敏色素(phytochrome)系统,对某些特异性光合和生理调控基因进行精细调节。
这种机制有助于植物实现对环境的最优适应。

这种光质调控模式,不仅对野外复杂气候下的作物至关重要,在现代农业特别是在设施农业(如温室种植)中同样发挥巨大作用。通过调控人工光源(如LED蓝、红光比例),农艺师能够有针对性地诱导叶绿体表达最有利于产量和品质的基因,实现精细化管理与高效生产。例如南方夏季强光下,叶绿体主动上调光抑制保护蛋白的合成,以防细胞受损;而北方冬季弱光环境中,则促进光能捕获及能量转化相关蛋白的表达。
叶绿体基因表达的生物学意义
叶绿体独特的“双重转录系统”与复杂灵活的表达网络,不仅保证了植物在正常生长发育中的光合效率和能量转换能力,更为作物因应各种逆境(如强光、低温、干旱、病虫害)提供了强大分子基础。叶绿体基因表达的动态调控,是提高农作物产量、改善品质和拓展种植区域的关键分子底盘。
转录组、蛋白质组和遗传学方法让研究者能够分别测量RNA丰度、蛋白组成和功能后果。三类证据不能互相替代:转录增加未必带来同等蛋白增加,蛋白变化也未必直接提高光合效率或产量。应用研究需要把分子读数与生理、田间表型连接起来。
实际应用与展望
随着分子生物学、转录组学和基因编辑等前沿技术的不断进步,叶绿体基因表达调控的研究已成为作物分子育种和高效农业的重要突破口。近年来,科学家们在水稻、小麦和玉米等主要粮食作物中,通过靶向调控叶绿体基因表达,取得了一系列具有实际应用价值的成果。
近年来,叶绿体基因工程在实际应用中取得了诸多突破,主要体现在以下几个方面:
- 检验光合作用相关调控因子
- 改变PEP相关蛋白或其他调控因子,可能影响叶绿体发育和光合基因表达。
- 由于这些因子常参与多个过程,表达增强也可能带来生长代价,不能预设一定增产。
- 候选材料需要在不同光照、温度和水分条件下比较光合参数、生物量与产量。
- 探索代谢与生物制造
- 叶绿体代谢工程可改变类胡萝卜素等产物的合成,但还要考虑底物竞争和组织特异性。
- 叶绿体也可表达重组蛋白;实际价值取决于转化可行性、遗传方式、蛋白折叠和下游纯化。
然而,叶绿体基因表达的调控网络极其复杂,任何人为干预都需要经过严格的安全性评估,确保不会对植物的其他生理功能产生负面影响。不同作物、不同发育阶段对调控机制的敏感性也存在较大差异,未来需要加强基础研究,以规避潜在的生态和食品安全风险。
展望未来,叶绿体基因表达调控的研究与应用有望在以下几个方向持续发力和深化:
- 提升光合效率要先明确限制步骤,是光吸收、电子传递、碳同化还是源库关系;改变表达不保证产量按固定比例增加。
- 增强逆境适应性需要同时检验生存、生长和产量代价,单次胁迫实验不足以支持推广。
- 改善营养品质要连接代谢通路、可食组织含量和生物利用度。
- 叶绿体工程可用于重组蛋白和代谢产物研究,但仍受物种转化体系与质量控制限制。
- 数据驱动方法可帮助整合表达和环境信息,预测仍需独立实验验证。
- 质体基因组编辑发展迅速,但不同植物的递送、再生和遗传稳定性差异很大。
叶绿体是碳同化的重要场所,但改善单叶光合速率不一定提高整株产量,更不能直接换算为碳中和贡献。研究者还要考虑叶面积、呼吸消耗、养分、水分、源库关系和生长期。所谓“智能叶绿体”可作为研究设想,现阶段应具体落实为可测量的感知、调控和输出模块。
叶绿体基因表达展示了一个核心原则:细胞器功能来自自身基因组与细胞核的协同。若要把机制用于育种或生物制造,需要沿着“调控因子改变—RNA与蛋白变化—生理效应—多环境表现”的证据链逐步验证。