生物演化的建设性力量
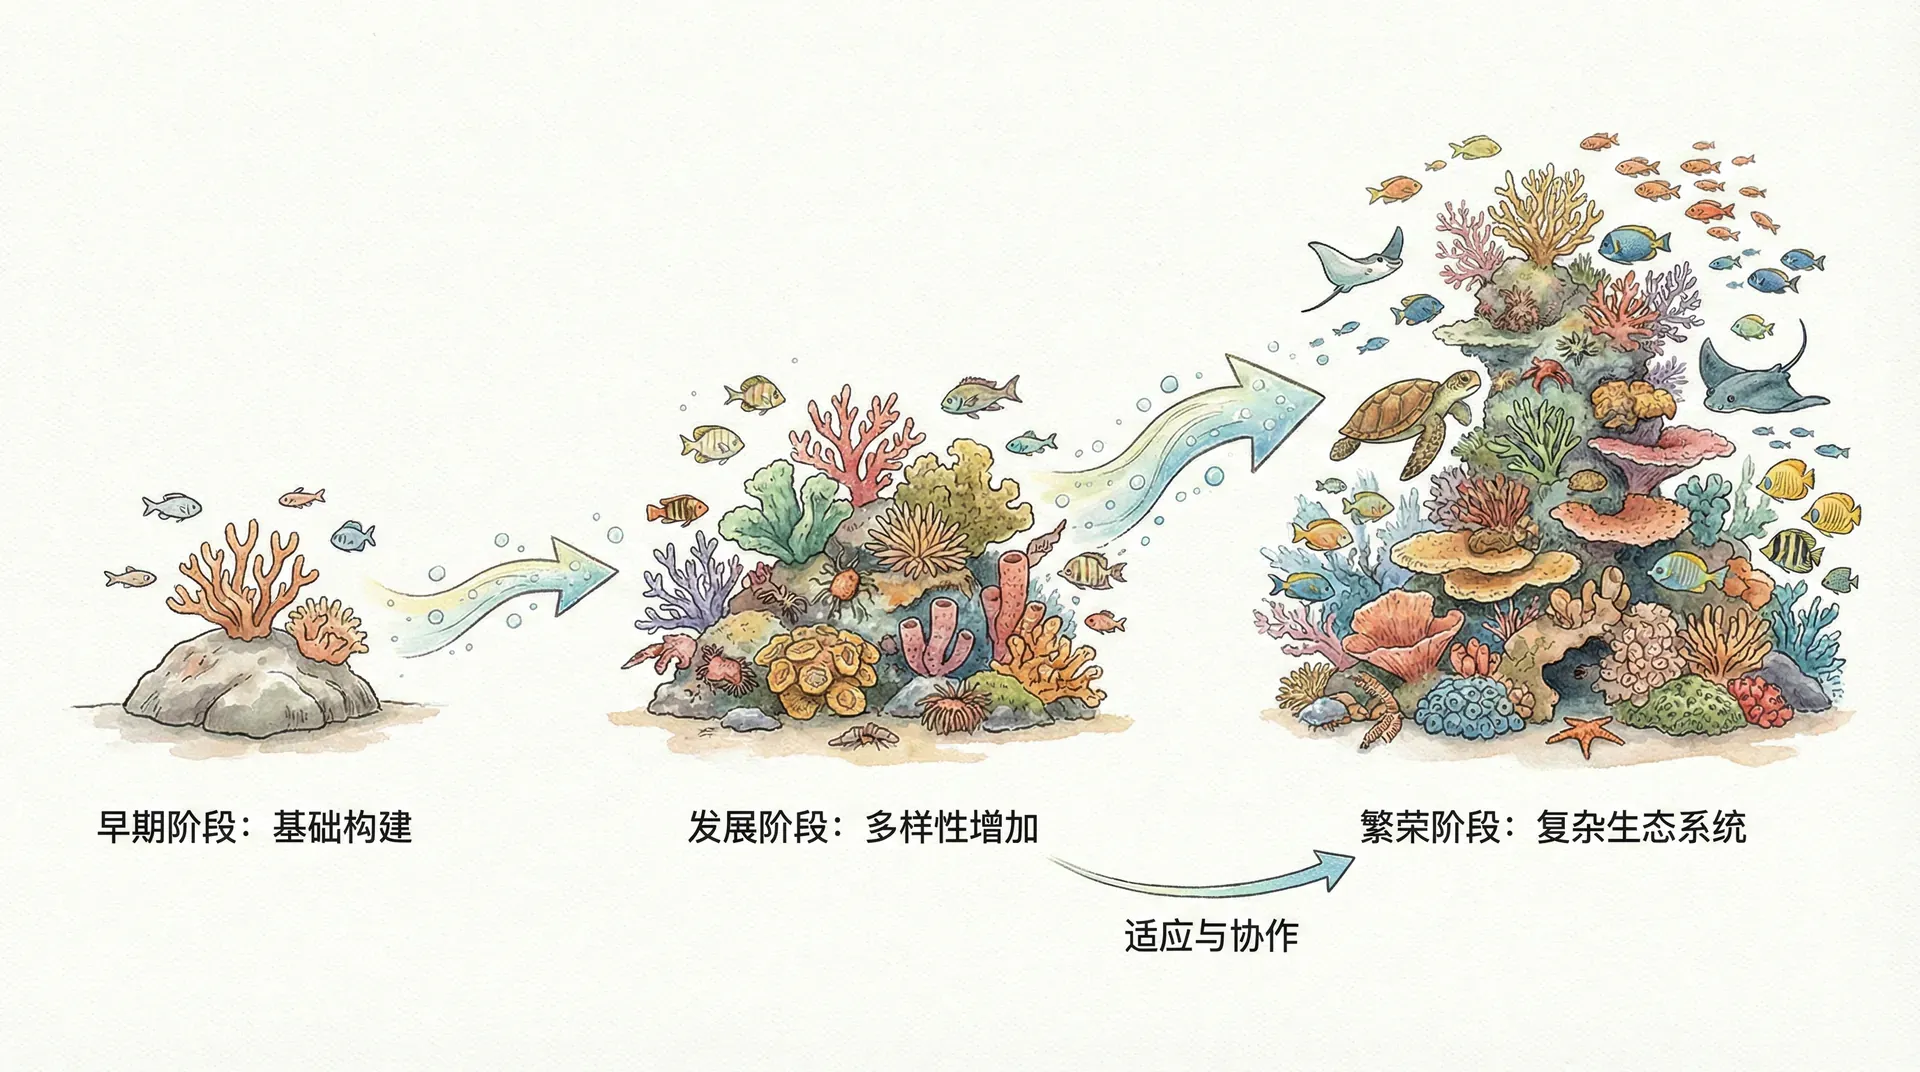
把自然选择比作只会删除的雕刻刀,会漏掉新性状的来源。突变、重组、基因复制、基因流和共生可以产生新的遗传组合;发育系统把这些差异转成表型,选择与漂变再改变其频率。复杂功能来自产生差异与改变频率的机制共同作用,并不是自然选择有意识地“创造”。
基因复制、重组、共生和细胞分工能产生新的组合,竞争、互利和环境变化又会影响这些组合的命运。水稻、竹类、拟态昆虫和大型哺乳动物体现的是不同机制与历史,不能只归结为“基因合作”和“物种竞争”两条通路。
演化的建设性力量主要体现在:其一,基因协作带来新功能和复杂性;其二,物种间竞争推动创新与适应提升。这两方面相互作用,共同推动了生物多样性和生命结构复杂化的进程。
基因协作机制与复杂性演化
基因间的协同适应现象
基因的效应取决于细胞类型、发育阶段、调控网络和其他等位基因。血红蛋白的α与β样珠蛋白基因在红系前体细胞中受共同调控,蛋白亚基组装后才能有效结合和释放氧。成熟哺乳动物红细胞已经失去细胞核,不能继续大量转录这些基因。
以水稻为例,一粒饱满的稻米形成,需要数十种与淀粉合成、细胞壁结构、抗逆性和养分积累相关的基因严密配合。例如:
- 淀粉长链合成基因:其表达高峰必须出现在籽粒灌浆的黄金期。
- 能量转运基因:确保为淀粉合成提供充足原料。
- 调控与辅助酶基因:调节上述基因的激活节律,决定灌浆速度和最终稻米品质。
如果其中任一基因表达“掉链子”,都可能导致稻米产量下降,甚至品质变差,抗逆力减弱。实际上,基因间的协同不仅表现为简单的“1+1>2”,而是在生物进化过程中经过反复整合和筛选,形成互补优势与复杂的正反馈网络。下表举例说明功能互补与基因依赖性的几种常见方式:
基因网络存在于植物、动物、真菌和细菌中,但“协作”只是便于理解的比喻。一个突变可能被旁路或同源基因部分补偿,也可能产生无法补偿的效应;有害变异不会必然迅速消失,中性与轻微有害变异可受漂变影响。网络复杂性也不等于适应性单调提升。
水稻淀粉合成系统的协作模式

若需更多直观变化,可观察40~80天的三类基因表达如何同步增长,又如何在成熟后齐步回落。
以水稻的淀粉合成为例,这一过程就像一条高效协作的自动化生产线。每一类关键基因各司其职,并在特定时间点协同表达,确保稻米籽粒的充实饱满。具体来说:
- 淀粉合酶基因:负责将葡萄糖分子聚合成长链,为米粒构建能量储备。
- 支链淀粉酶基因:决定淀粉结构的分支度,影响米饭口感。
- 糖转运蛋白基因:输送原料到合成区域,保障能源供应不断档。
图示可用于观察不同基因随籽粒发育发生的变化,但具体峰值必须来自同一品种、组织与实验条件的数据。灌浆期不是所有淀粉相关基因都在60至80天同步达到峰值;水稻品种和温度会改变发育进程。DREB类转录因子主要参与胁迫响应,也不能笼统写成“干旱时激活淀粉合成”。
除此之外,水稻还包含大量调控性基因(如转录因子、感受信号通道等),在遇到干旱、高温或其它胁迫时动态调整主合成基因的活性,从而增加适应弹性。例如DREB转录因子在干旱激活淀粉合成相关基因,提升抗逆能力,这正是基因网络弹性的重要案例。
基因复制与功能分化
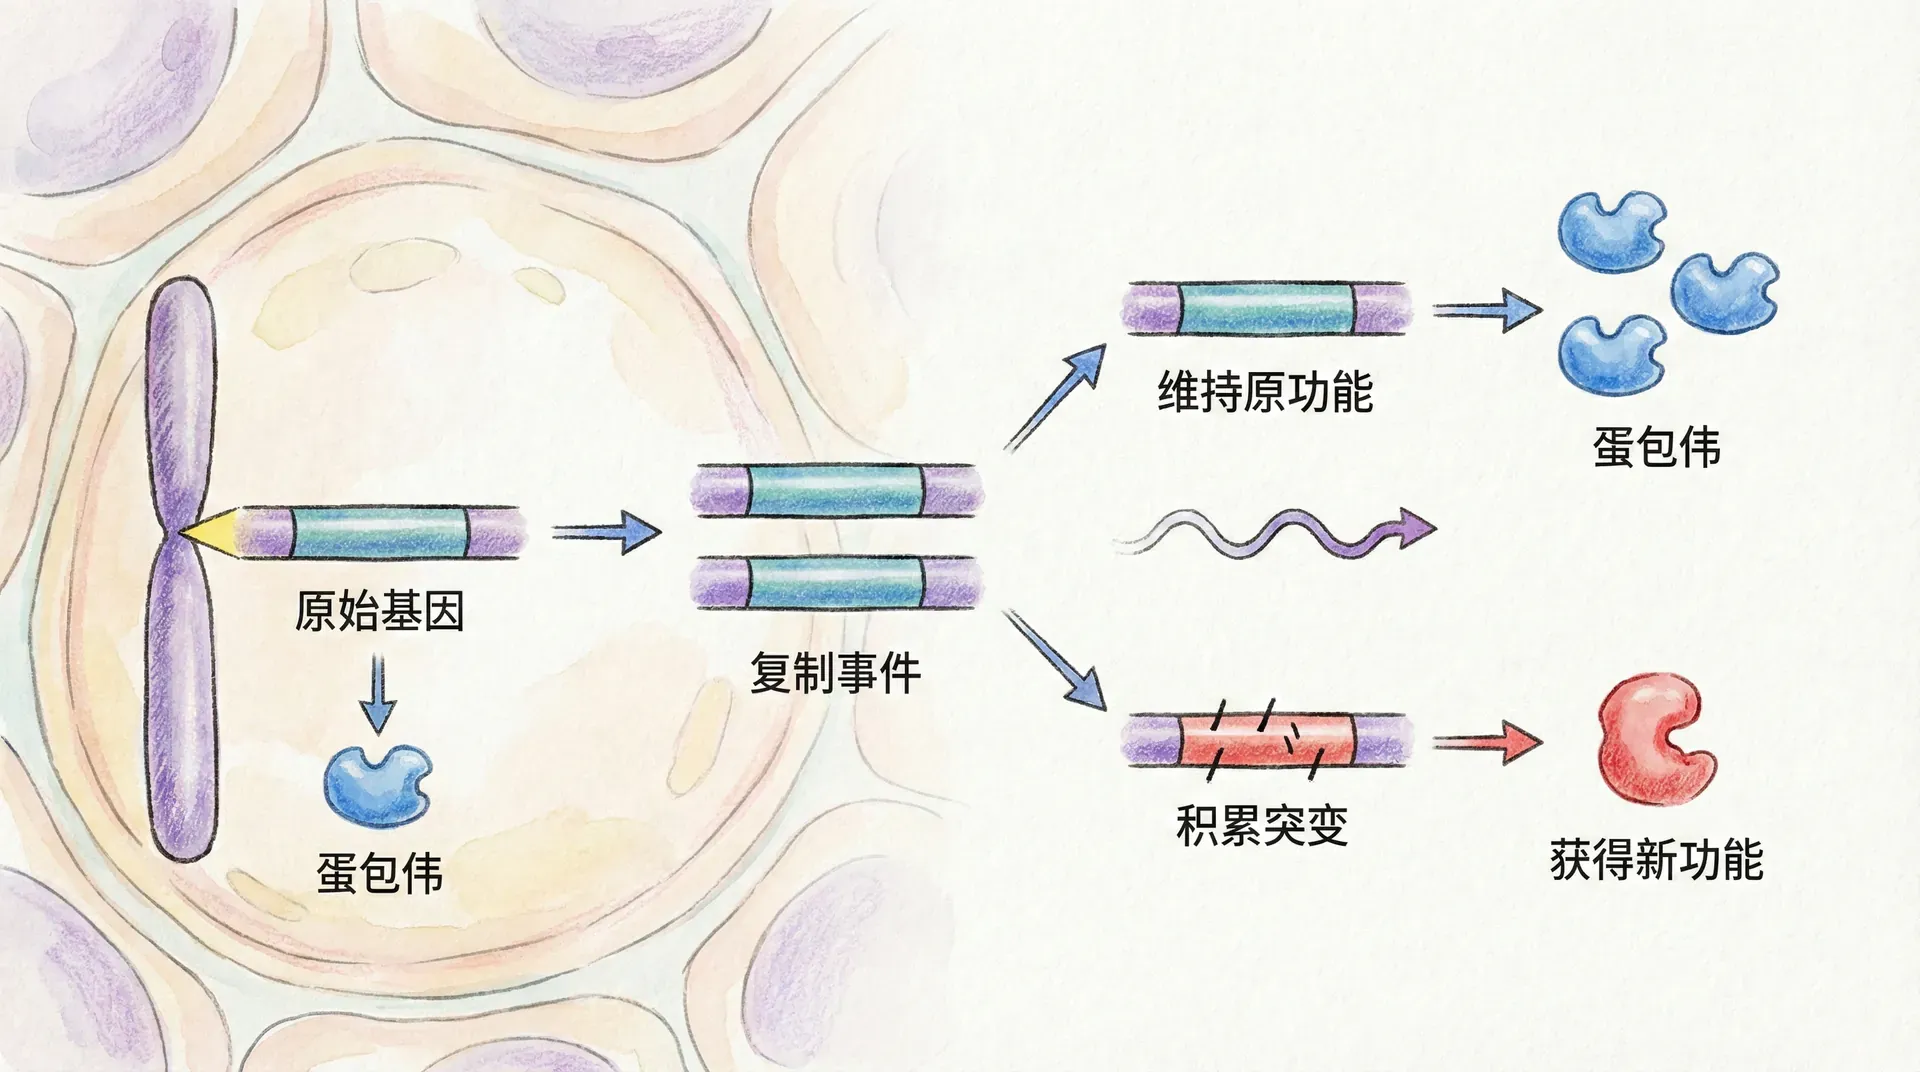
自然界并不会因为基因数量有限而止步不前。进化过程中,染色体复制、基因组加倍、片段重复等机制为生命提供了“冗余原料”。这些“同源拷贝”最初功能相同,但随着突变与时间推移,部分基因获得新特异化功能,或在不同环境下发挥差异化作用。比如:
- 一部分复制基因专精于耐盐碱性,另一部分偏向高光照条件下的效率调节。
- 有些复制基因用作基础生理功能,有些则成为环境压力下的“后备队员”。
这种分化大幅提升了生物的创新潜力和进化弹性。
再看农作物基因组的数据:
小麦因含三套染色体,基因总数居首。以抗病基因家族为例,常常出现“十几种专职岗”,每个基因分别针对不同病菌类型,形成强大的“分层防御”。高产作物往往正是依靠这种冗余多样的基因网,实现了产量、抗性和适应力兼备。
此外,基因复制还为物种创新提供了“试错空间”,即使某组基因出现突变损伤,完整功能仍可被同源基因补偿。
从单细胞到多细胞的演化历程
单细胞生命体的“全能作战”能力有限:一个细胞既要兼顾摄食、感知、繁殖,又受体积和功能极限束缚。多细胞生物则在协作和分工中迎来进化跃迁——部分细胞专责能量获取与代谢、部分专责信息传递、部分变为防御卫士,还有的进化为繁殖修复专能细胞。下表概述了单细胞与多细胞生命主要差异:
人体约有数十万亿个细胞,常见估计在30万亿量级,细胞类型的划分会随标准改变。神经元、红细胞、上皮细胞和免疫细胞通过细胞外信号、组织结构与循环系统协调活动;这种合作也伴随冲突控制,例如抑制异常增殖。多细胞性不是单纯“个体联合更强”,还需要黏附、通信、分工和生殖利益一致等条件。
多细胞性在动物、植物、真菌、藻类等谱系中多次独立出现。细胞性黏菌在缺少食物时聚集并形成具分工的子实体,黏细菌则能集体移动和形成子实体;两者不应混称为普通变形虫或黄杆菌。它们帮助研究细胞合作如何出现,以及“欺骗者”怎样受到亲缘结构和发育机制限制。
生物军备竞赛与适应性演化
捕食者与被捕食者的演化博弈
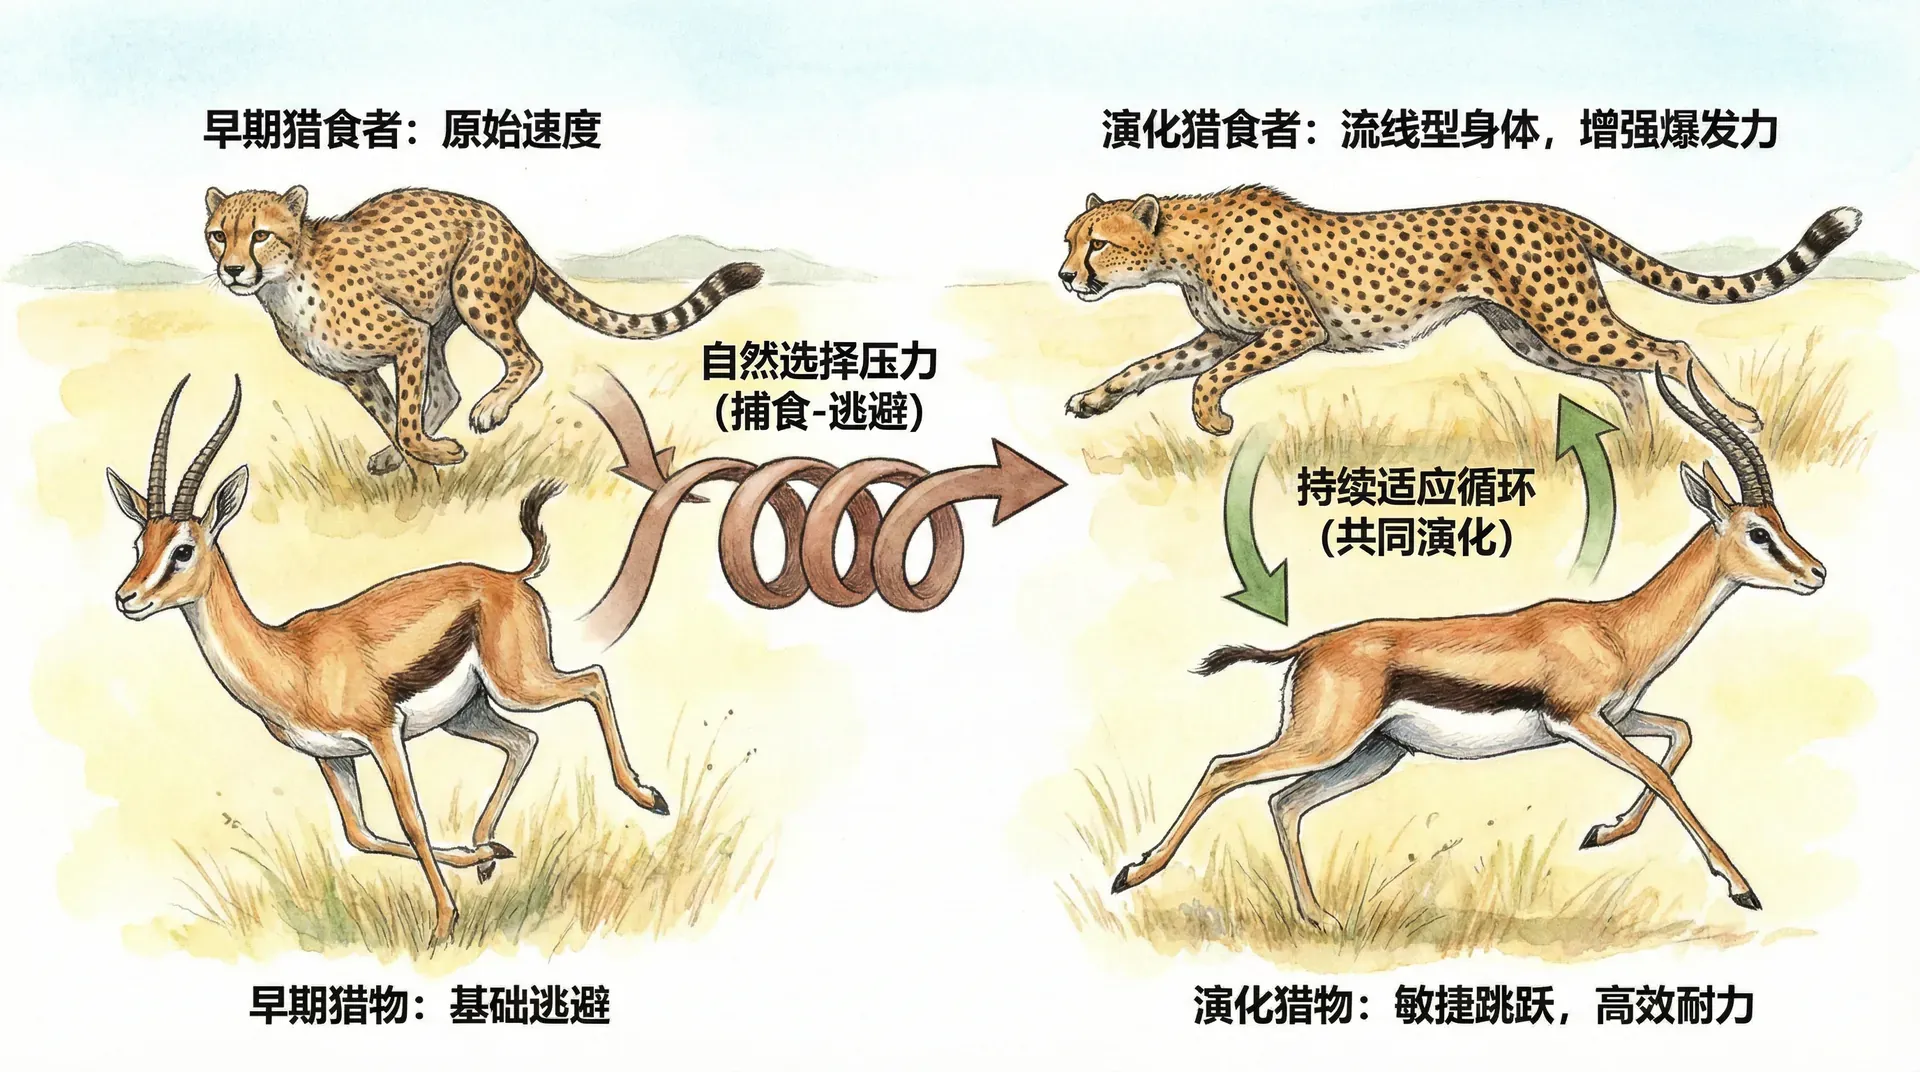
如果说基因协作构成了演化机制内部的“内政”,那么物种间的军备竞赛则是激烈的“外交”。尤其是在捕食者与被捕食者之间,这种相互作用带来了持续的进化对抗——正如国家竞争,一方提升了攻击(捕食)能力,对手则必须不断强化防御,这个竞争周期便在自然选择推动下循环往复。
例如,在非洲大草原上,猎豹与瞪羚之间便上演了一场速度和敏捷竞赛:猎豹进化为体型更修长、奔跑更快、爆发力更强的顶级捕食者,而瞪羚则演化出极强的腿部肌肉和绝妙的急转能力,提高生存概率。它们之间的速度和敏捷竞赛,使两者的极限能力不断推升,但双方实际的“胜率”未见根本变化。
红皇后假说更广泛地描述:当其他物种也在演化时,一个谱系即使持续改变,也可能只是维持相对适合度。捕食者与猎物的速度并不一定同步上升,气候、栖息地、替代猎物和行为策略都会改变选择方向,因此具体案例需要长期数据支持。
捕食与防御的演化策略
有些生物甚至会发展独特机制应对捕食压力,例如:
- 负鼠通过装死欺骗捕食者
- 刺猬依靠卷曲身体形成“铁刺球”
- 墨鱼不仅速度快,还能变色和喷墨云干扰视线
而被捕食者也会进化出群居、迷彩、剧毒等多种生存对策,体现出演化对抗的多样性和复杂性。
华南虎与梅花鹿的速度竞赛

华南虎会捕食多种有蹄类,梅花鹿也面对多种捕食者,二者不是封闭的一对一竞赛。栖息地丧失、猎物减少和人为捕杀可同时改变捕食者与猎物种群。恢复顶级捕食者可能产生营养级联,但方向和强度取决于食物网结构,不能据此断言梅花鹿一定暴增或性状退化。
观察数据可以发现:人类影响(如栖息地破碎)对两者种群带来急剧减少,过度干扰甚至打破了捕食者与被捕食者之间的微妙平衡。表面上双方的军备“停战”,但这会导致某一方适应性退化,生态系统整体稳定性下降。比如华南虎若绝迹,梅花鹿缺乏天敌,反而导致森林下层植被压力激增,生态链不再健康。
中外典型捕食—防御军备竞赛
对称与非对称军备竞赛
生物进化中的军备竞赛,主要分为对称和非对称两大类型,这两类分别塑造了大自然中截然不同的生态格局。
对称军备竞赛侧重于同类或相似物种间的相互较量,如同高高跃起的竹子为了争夺阳光,带来整体能量消耗的增加。而非对称军备竞赛则多见于捕食者和猎物之间的创新对抗,比如大象演化出厚重皮肤以对抗掠食者,两类军备竞赛在进化历史上都留下了众多经典案例。
对称军备竞赛
对称竞赛通常发生在同类生物间,主要是为争夺相同资源不断投入。例如竹林中,所有竹子都只能拼命长高以争取更多阳光,导致普遍高度增加、能量消耗剧增,但谁也没有获得“超额回报”,形成所谓“无效军备”。
另外,雄鹿间的鹿角大型化竞赛也是典型的对称军备竞赛:为赢得配偶,鹿角越来越大,最终代价远高于额外的繁殖优势。
非对称军备竞赛
非对称军备竞赛更常见于捕食——反捕食的攻防。例如蝙蝠发明了超声波定位,而夜蛾进化出可侦测和干扰超声的听觉与拟声。寄生蜂独特的产卵钻孔技术和某些蝴蝶拟态成毒虫等也属于这一类。非对称竞赛直接催生了生物在感知、外形、行为上的“策略创新”和多样性。
对称—非对称类型对比
红皇后效应
红皇后假说描述相互作用物种持续适应时,相对适合度可能仍需不断维持。例如宿主与寄生物、捕食者与猎物会彼此改变选择环境。但双方不一定同步“进步”,结果也可能包括共存、周期波动、一方转移资源或局部灭绝;需要用长期种群数据检验。
例如,蝙蝠与夜蛾之间持续上演“声纳大战”:蝙蝠进化出精细的回声定位系统,夜蛾则开发出能够感知并干扰声波的耳朵和反制技巧。随着进步加剧,双方能力整体显著提升——但“成功率”却并无质变。这说明了军备竞赛在推高技术门槛、累积整体适应潜力的同时,并不一定带来个人或某一代的压倒性胜利。
红皇后框架常用于宿主—寄生物和病原体共同演化。病原体抗原变化会改变宿主免疫选择,宿主防御又影响病原体传播;抗生素使用则直接选择已有或新产生的耐药变异。人类在个体一生中获得免疫记忆属于生理过程,不能写成“人类免疫系统随病毒持续进化”。
- 病毒与宿主间的“免疫—入侵”竞赛(如新冠病毒不断变异,人类免疫系统持续优化)
- 人类与细菌间抗生素—耐药性之争
- 植物与害虫/病原之间的化学武装竞赛
红皇后效应本质上是适应性演化的动力源泉——不进则退、进步即维持。这正是自然界多样性和创新性的深层机制之一。
演化的经济学原理与平衡机制
成本——收益、囚徒困境与进化均衡
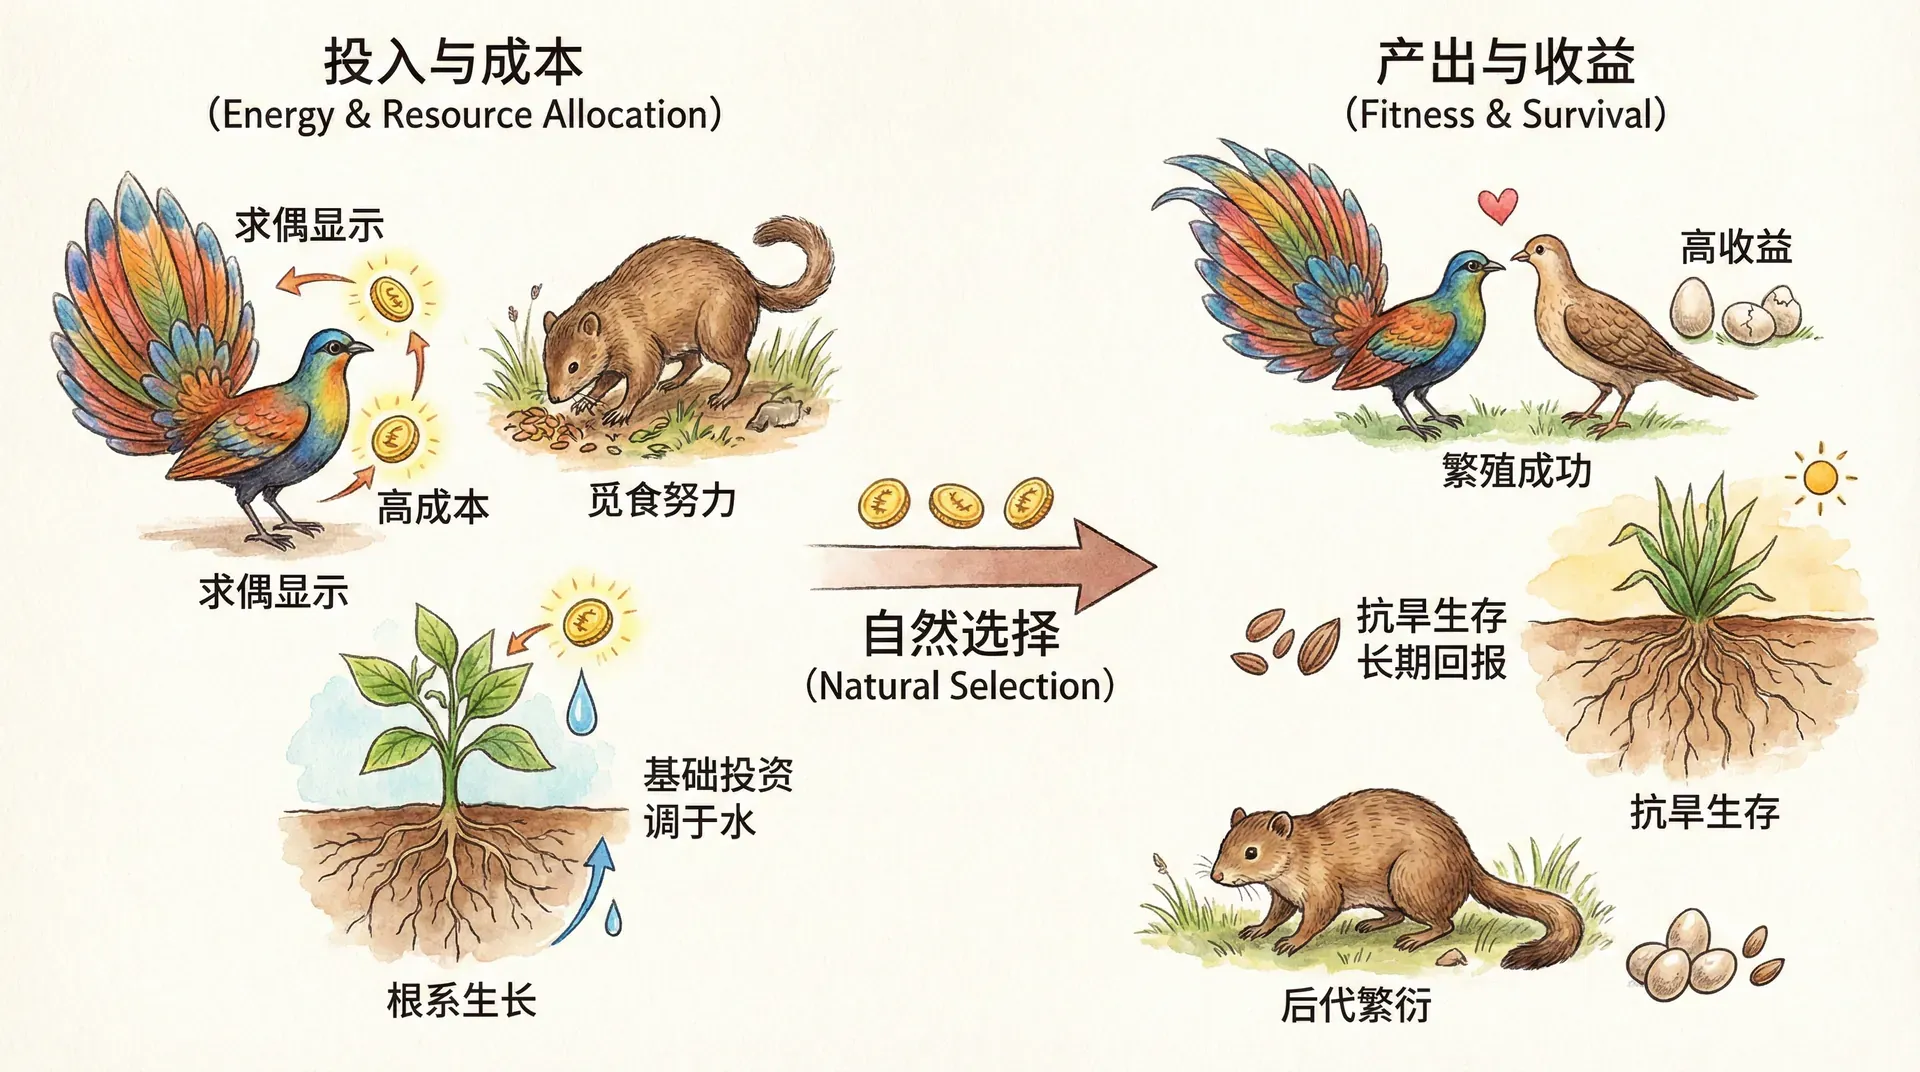
性状会同时影响多项功能。增加肌肉可能提高短时速度,却需要更多能量并改变散热;更高的植物可能获得光照,也要承担运输和支撑成本。自然选择作用于这些综合后果,形成的常是可行的权衡,而不是把每项资源分配计算到经济学意义上的最优。
合理的资源分配直接影响种群未来——分配效率更高的个体,其基因能更好流传后代。反之,某些性状如果发展过度(如鹿角极度巨大化),一旦成本超过收益,反倒会因负担过重遭到淘汰,整个种群最终会达到“适度均衡”。
这种资源竞争和均衡的经典案例正是竹林高度竞赛:如果每棵竹子都能“协议”长到合适高度,就能最优吸收阳光、节省资源,利于繁殖和抵抗病害。但囚徒困境注定了,只要有一棵竹子“偷偷长高”,其它竹子也不得不跟进,最终大家都消耗了更多资源,却没有谁真正获益。类似现象在人类社会、经济和教育中也屡见不鲜,比如“分数大战”、企业广告投入等,最终形成集体次优局面。
军备竞赛的终止条件
生物军备竞赛虽然不断推动新特征演化,但也不会无限制升级。其终止或减缓受两方面约束:
- 物理极限:如奔跑速度受骨骼与关节极限所限,植物高度受制于茎秆结构和风压。超过极限将导致结构失稳,投资无回报。
- 经济约束:投资的边际回报会递减,甚至为负。例如动物为求更快,心肺器官过度发达反碍其他生理机能。最终,自然选择“调优”所有特征,使其收益与代价达成平衡。这也解释了为何现实中没有“无敌生物”,一切性状都是多重妥协下的最优结果。
生物性状反映多种选择压力、遗传背景和历史限制之间的权衡。现有形态通常能够工作,却不保证达到唯一或全局最优状态。
中国生态系统的“天然实验室”

中国复杂多样的自然地貌(海洋、平原、森林、高原、沙漠等)为进化博弈和适应性创新提供了丰富“样本”:
- 长江流域:江豚利用回声定位,中华鲟以底栖食物为主,两者与鱼类、无脊椎动物和人类活动共同构成食物网。不能把它们笼统称为“顶级捕食者”,也不能把整个流域压缩成单一军备竞赛。
随着城市化发展,人类活动正在重塑新的生态较量。例如城市中麻雀、喜鹊等鸟类与天敌(如猫、隼)之间通过警觉、逃逸及新型栖息地选择展开持续博弈,新型军备竞赛不断出现。
竞争、互利和资源限制能够产生不同演化结果。博弈模型可帮助表达个体策略的成本与收益,但竹林、高原和城市食物网各有不同变量,不能由一个“动态均衡”比喻推出持续最优发展。农业、疾病防控和保护实践需要针对具体物种、时间尺度和证据作判断。