生物分类学的奥秘
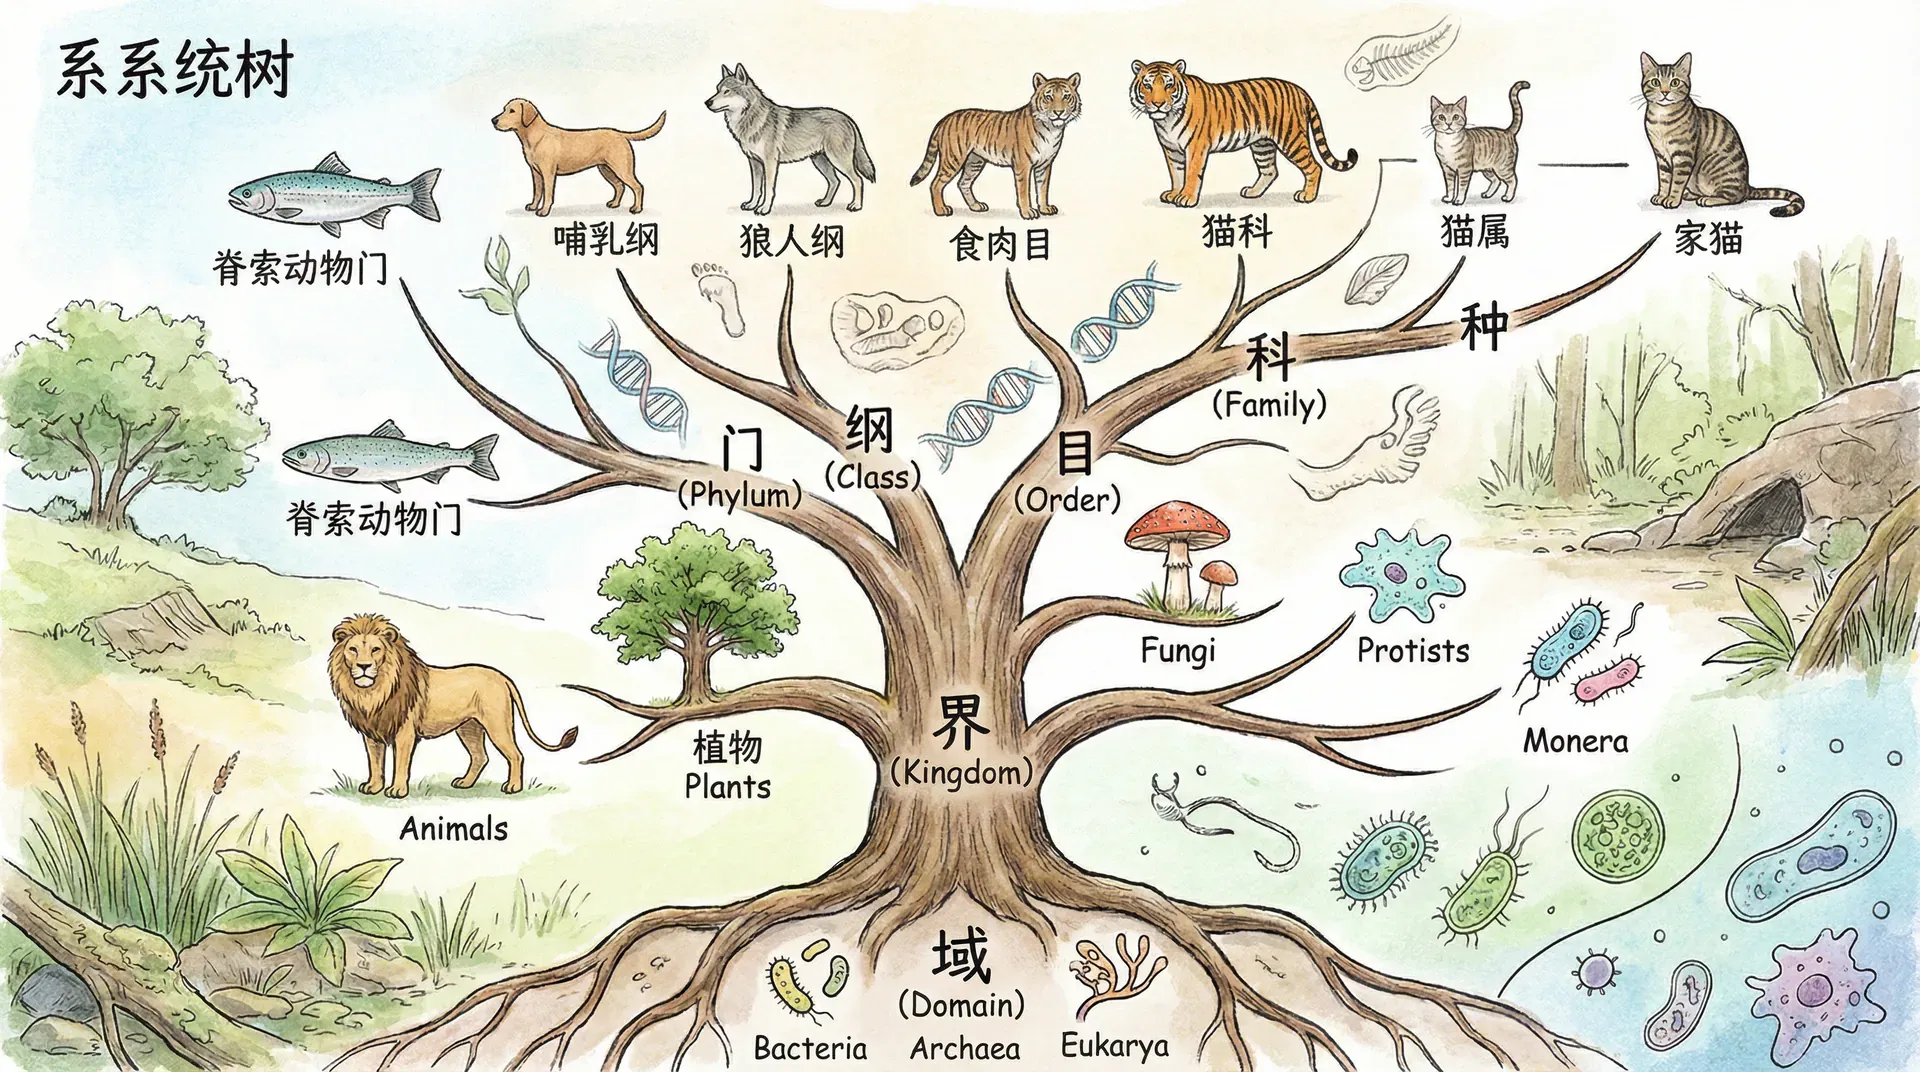
分类学为生物命名、描述和建立可检索体系,系统学则利用形态、化石与分子数据推断亲缘关系。两者让不同地区的研究者能够确认讨论的是同一类生物,也帮助比较性状与地理分布。分类不是把全部生命历史刻进固定格子,而是随着证据更新的科学工作。
从青藏高原的雪豹和藏羚羊,到河流、森林与海岸中的微生物,每个物种都有名称、分布和谱系问题。准确鉴定是调查多样性、追踪外来物种和制定保护措施的前提,也为研究共同祖先与适应性变化提供样本。
为什么需要给生物分类
从整理图书馆说起
没有索引的图书馆很难检索资料,生物研究也需要稳定的名称和分类框架。图书可以按主题、作者或年代排列;生物分类还要面对种界判断、共同祖先和证据冲突,因此类比只能说明“为什么需要组织信息”。
为了解决这个问题,图书馆管理员会设计并实施一套分类体系。常见的图书分类方式包括:
- 按照学科门类分区
- 根据出版年代分组
- 以作者姓氏音序排列
这样的分类让信息变得井然有序,只要分类标准清晰、索引准确,书籍的管理和查找效率便会大大提升。不同图书馆也可能采用不同的方案,比如:
- 有的更注重学科类别
- 有的侧重地域与历史时期
- 中国国家图书馆采用《中国图书馆分类法》
- 美国国会图书馆使用LC分类法
这些系统虽然各不相同,却都能良好运作,满足不同用户的需求。
值得注意的是,这里存在一个根本特征——对于图书分类,没有所谓唯一的“标准答案”。分类标准是“人为设定”且可以灵活调整,通常是为了使用上的便利性或特定读者群设计的。因此,即使分类方法存在差异,只要能够高效地服务于信息检索和管理,都可称之为“合适”的分类。
生物分类的特殊之处
生物分类既服务于命名和检索,也尽量反映共同祖先关系。已描述物种约以百万计,真实物种数仍依物种概念、采样范围和估计方法而有很大不确定性;一项常被引用的估计给出约870万种真核生物。演化历史客观发生过,但研究者只能从不完整证据重建它,因此不同数据和模型可能支持不同的树或网络。
现代系统分类尽量让命名类群反映共同祖先关系,同时还要遵守可交流的命名规则。演化历史客观存在,分类方案与系统树却是基于现有证据、可以修订的科学假说。
每个生物都来自具体祖先,但研究者无法直接观察大多数历史分化。系统树是根据现有性状和模型推断的假说;同一物种在物种树上有位置,不同基因却可能因不完全谱系排序、杂交或水平转移呈现不同历史。分类工作的目标是用可重复证据不断改进这些推断。
图书分类主要服务检索,生物分类还尝试表达谱系关系。下表比较两者的目的和可修订性,帮助理解类比在哪些地方成立、在哪些地方需要停止。
| 对比项 | 图书分类 | 生物分类 |
|---|---|---|
| 分类标准 | 人为设定,方便检索 | 尽量反映共同祖先关系 |
| 答案数量 | 多种方案皆可 | 会随证据和模型修订 |
| 分类依据 | 内容、作者、年代等主观因素 | 客观亲缘关系与演化证据 |
| 中间类型 | 可以有跨领域或综合书籍 | 可能有杂交、渐渗和边界案例 |
| 验证方法 | 看管理和检索的便利性 | 科学验证亲缘(形态、分子、化石等) |
分类学的严谨来自可重复观察、清楚定义和证据比较。发现新物种或调整旧分类,并不是单纯向“唯一答案”直线靠近,而是在形态、基因组、化石和地理证据之间检验更能解释数据的假说。
传统分类的困惑与局限
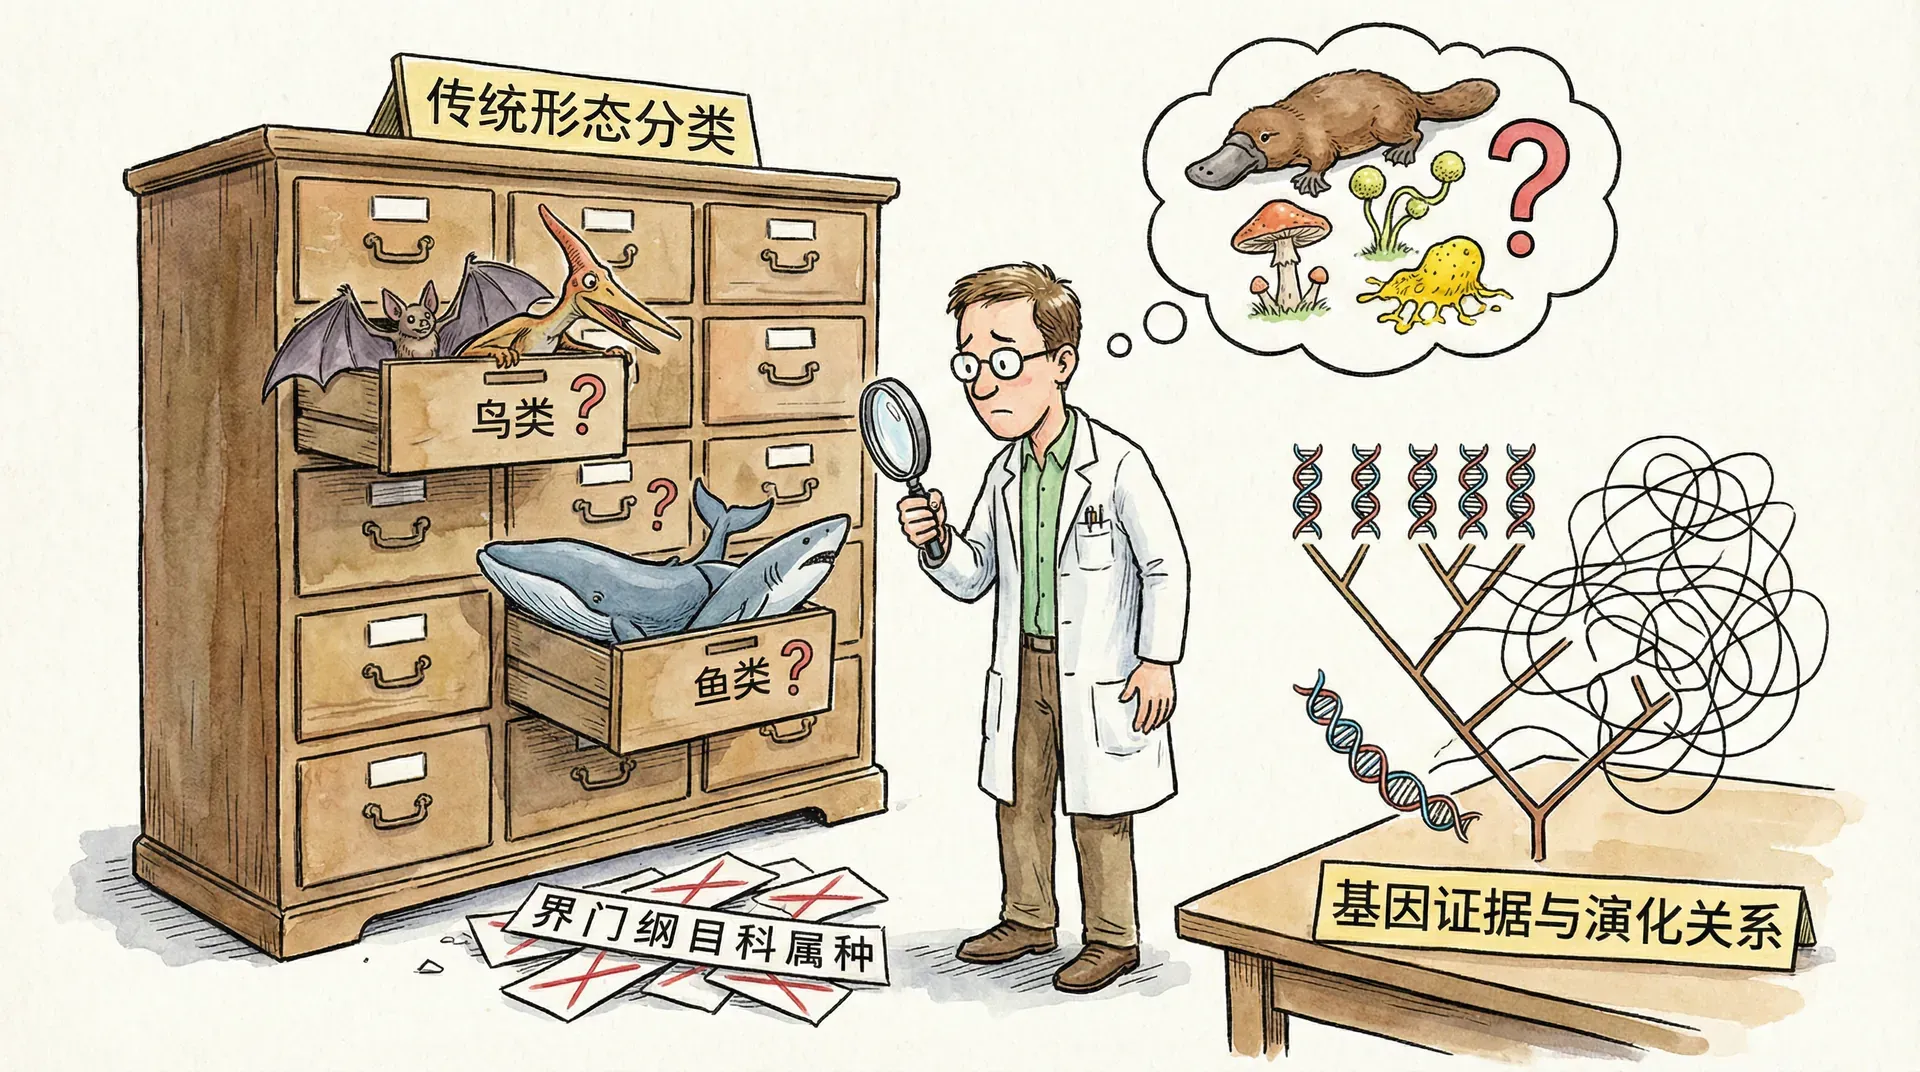
外观相似不等于血缘相近
早期的博物学家主要依靠生物的外部形态、颜色、体型等可见特征进行分类,这在自然观察和初级辨别中确实有一些实际效果,但随着生物种类和了解的深入,这种表面上的“相像”经常掩盖了真正的亲缘关系。你或许听过“相由心生”这句话,然而在生物世界,“外表决定内在”远远不是普遍规律——同样的外观背后,往往隐匿着截然不同的进化历史。
如果仅凭肉眼观察,有人会觉得华南虎和金钱豹极为相近——斑纹相似,体型都大,都是猫科猛兽、顶级捕食者。但分子生物学研究却揭示:华南虎和其他虎亚种(比如东北虎、孟加拉虎)才是“真正的一家人”,而离金钱豹的血缘其实更远,即便它们的斑纹在外观上看起来相似。
中华白海豚和长江江豚都属于齿鲸类,虽然分属海豚科与鼠海豚科,但彼此仍比河马更近。鲸类整体与河马同属鲸河马类,这一关系说明外形会随水生适应显著改变;它不能被误写成某一种齿鲸与河马比另一种齿鲸更近。
刺猬与豪猪都具有硬刺,却来自不同哺乳动物支系:刺猬属于猬科、真盲缺目,豪猪属于啮齿目。相似防御结构是趋同演化的例子。分类时既要寻找相似性,也要判断相似性来自共同祖先还是独立适应。
收敛进化
趋同演化指亲缘较远的谱系在相似选择压力和物理约束下独立形成相似性状。相似可能涉及外形、行为或生理功能,但内部结构、发育来源和基因机制未必相同。
鸟类、蝙蝠和翼龙都形成了动力飞行能力,但翅膀建立在不同祖先前肢和组织结构上。比较骨骼、膜或羽毛的连接方式,可以区分共同祖先留下的同源结构与独立获得的相似功能。
鱼类、海豚和企鹅都可呈流线形,并用不同形态的附肢推进。这些相似性反映水中运动的共同约束,却不表示亲缘最近。趋同会使仅凭外观的分类产生偏差,因此还要比较同源骨骼、发育和分子序列。
大熊猫的分类争议历程
大熊猫的分类史展示了证据如何改变分类假说。早期研究者比较牙齿、颅骨和外形时,对它与熊科、浣熊科及小熊猫的关系提出过不同方案;后来的分子和更广泛形态数据支持大熊猫属于熊科。
19世纪欧洲科学界获得大熊猫标本并为其建立学名,但当地居民早已认识这种动物。大熊猫的熊样体形、特殊牙颅结构与“伪拇指”等性状曾支持不同分类解释,说明少量显眼特征可能产生冲突,需要扩大性状和物种采样。
大熊猫分类历史演变
大熊猫属于熊科的结论来自分子、形态和化石等多类证据。分子数据很有辨别力,但不是唯一可靠层次;当基因树不一致时,还需检查采样、模型、杂交和祖先多态性。
大熊猫的“伪拇指”主要涉及增大的桡侧籽骨和相关软组织。小熊猫也有相似的腕部夹持结构,但两者并非最近亲,适合用于讨论趋同与共同发育基础。考拉具有对握的指,但结构来源不同,不宜称为与大熊猫相同的“伪拇指”。
类似的分类争议在中外都有,例如穿山甲和食蚁兽的鳞片防护和专吃蚂蚁的习性;或沙漠蜥蜴、非洲变色龙的色彩变化、攀爬技巧。这些“功能收敛”都说明:单靠表象,无法准确判断血缘。
进化树

血缘关系胜过外在相似
现代系统分类以共同祖先关系为核心,同时依赖可比较的性状和明确模型。物种分化会留下树状信号,但杂交、渐渗和水平基因转移可使部分历史呈网络状,节点支持度也会随数据改变。
家族树有助于理解最近共同祖先:共享更近祖先的谱系通常亲缘更近。物种系统树还要处理祖先种群内部的遗传差异,因此某个基因的分支顺序不一定等于物种分支顺序;分化时间也需要化石或其他校准。
华南虎与东北虎被归为虎的不同地理种群或亚种,其关系很近;豹和家猫则在猫科更早的分支上与虎分开。具体分化时间依赖采样、化石校准和分子钟模型,不能用未经说明的“约一万年”或“三四千万年”代替分析。
支系分类学的核心思想
在20世纪中期,分类学发生了一场革命。系统发生学(支系分类学,cladistics)成为主导方法。它的根本思想很直白:只有拥有了最近共同祖先的所有后代组成的群体,才能被称为一个天然的分类群(单系群)。
系统学会编码形态、发育、行为和分子性状,再用明确模型比较候选树。DNA提供大量位点,但结果仍取决于同源序列识别、物种采样、替换模型与基因树冲突,不能把分子数据称为自动给出答案的“金标准”。
下方示意图展示若干动物的相对系统位置。阅读时应区分“同属一个较大类群”和“彼此为最近亲”,并注意图中未列出的物种会影响分支解读。
现代系统学常以单系群为重要原则,即一个类群包含最近共同祖先及其全部后代。形态、化石与不同基因组区域可能给出不一致信号,研究者需要检验基因树与物种树的差别,而不是给每个物种机械分配一个永不改变的位置。
单系群包含共同祖先及其全部后代,这一原则帮助分类名称与系统树对应。具体类群是否单系仍是需要数据检验的问题;增加物种或基因采样后,某些分支的位置和支持度可能改变。
完美嵌套
树状分支能很好地表示亲子谱系和许多物种分化,因此分类层级常呈嵌套关系。但生命历史并非处处“完美分叉”:植物和动物可能杂交与基因渐渗,微生物中水平基因转移更常见,快速分化还会造成不完全谱系排序。遇到这些情况,系统发育网络可能比单一二叉树更合适。
生物分类的嵌套结构示例
嵌套分类来自共同祖先与后代的包含关系。它是理解生命历史的有力框架,但杂交、基因渐渗、水平基因转移和不完全谱系排序会使部分基因的历史呈网络状或彼此不一致。
分类层级向上包含更广的类群,系统树分支向后则追溯更早的共同祖先。传统“界门纲目科属种”便于命名与教学,但等级本身不等于固定时间或相同演化距离,现代研究更关注分支及其支持证据。
分子证据
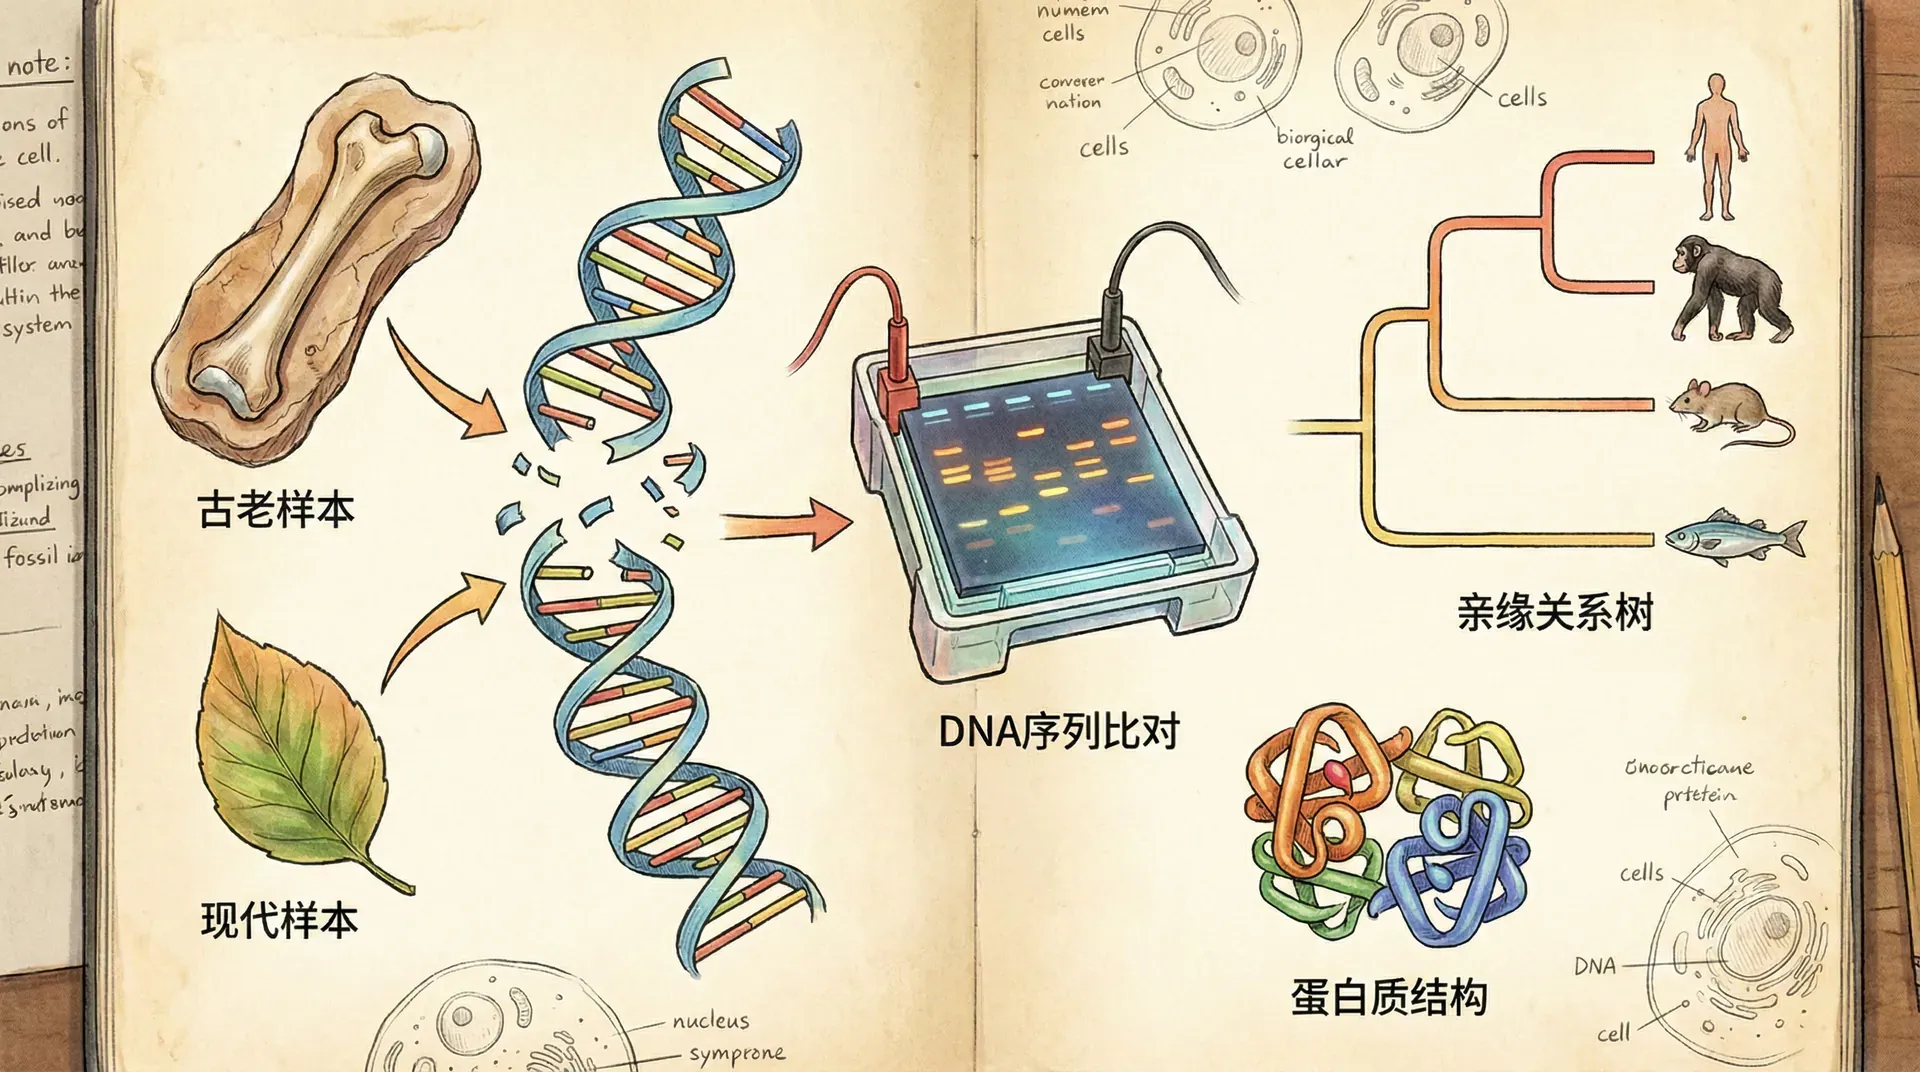
分子生物学的崛起,为生物分类带来了革命性的变化。通过分析DNA、RNA、蛋白质等生物大分子的结构与变异,科学家们获得了前所未有的工具来揭示生物间真实的亲缘关系,极大丰富并重塑了进化树。
生命的共同“语法”
绝大多数细胞生物使用高度保守的遗传密码,DNA或RNA上的三联体通常对应相同氨基酸。标准密码也有少数已知例外,常见于线粒体和部分微生物;ATG既可作为起始密码子,也可在编码区内部指定甲硫氨酸。广泛共享的翻译体系与其他分子同源性共同支持生命共同祖先,而不是由单一“完全相同”事实独立证明。
正是遗传密码的普遍性,让科学家坚信:地球一切生命都根植于同一进化血脉。
分子时钟与进化历史
分子时钟利用序列差异和校准信息估计分化时间。替换速率会随基因、谱系、世代时间和选择压力改变,因此现代分析通常使用允许速率变化的统计模型,并给出可信区间。分子数据并不天然比化石“更精确”,两类证据需要相互校准。
以中国特有哺乳动物为例,测量大熊猫等动物的细胞色素C、血红蛋白基因差异,可以倒推它们分家的时间:
无论是细胞色素C还是血红蛋白,基因差异与分化时间几乎呈线性增长。由此,科学家重建出细致的进化树分叉节点,精度远超传统化石和形态学。此外,分子时钟技术广泛用于动物、植物、微生物甚至病毒等各大类群,揭示它们的演化路径与时间线。
DNA让“外貌”不再迷惑
分子证据同样避免了传统靠“形似”的误判。例如,大熊猫与浣熊都拥有“伪拇指”,外观习性相近,早期被视为近亲。但DNA比对显示,大熊猫与棕熊、北极熊的亲缘远高于与浣熊,证明“伪拇指”只是适应竹食性的收敛进化,不是直系血缘的证据。
系统发育分析支持大熊猫属于熊科,与浣熊和犬科动物的关系更远。亲缘判断依赖许多同源位点的树模型,而不是把全基因组压成一个“DNA相似度”。藏羚羊本来就属于牛科,并非分子研究后被移出牛科;分子数据主要帮助厘清其在牛科内部的位置。
图示中的单一“相似度”只能作为展示,不能直接等同亲缘远近。可靠分析需要说明比较的同源区域、替换模型、外群和统计支持度;保护管理还要结合种群内遗传多样性与基因交流,而不能只看物种间百分比。
现代分类学的方法与争议
分子分类技术带来的“证据浪潮”极大推动了分类学理论和工具的不断进化,也促使研究者重新审视生物之间的亲缘关系。然而在具体实践中,不同学派围绕数据权重和分析方法的分歧却日益突出,方法学争议空前激烈。
虽然分子证据如今占据主导地位,但现代分类学并非“唯分子论”,形态学、行为学和生态学的证据依然被广泛运用。在“如何界定物种”及“如何建立可靠的进化树”上,不同流派始终存在观点上的分歧,学术讨论仍在持续深化。
主要分类学派对比
如今,多数分类研究实际上综合运用了上述多种理论和方法。科研人员往往在实际分类时并非拘泥于单一学派,而是融合形态解剖特征、化石证据、地理分布、行为生态,尤其是日益强大的分子生物学数据等多维证据链。通过对不同数据的权重与交叉验证,研究者能够得出更为可靠的分支关系与物种归属判断,使得分类体系既“接地气”又兼具科学严谨性和前沿性。这种多元融合方法成为当今系统分类学的主流趋势,也是未来持续提升分类准确性的重要保障。
分类准确性的不断提升
技术的进步,让分子分类在生物学中的地位逐步提升。过去,单一分子标记(如某一基因)只能揭示一部分真相;随着多标记、多基因组乃至全基因组测序技术普及,分类的分辨力几何级提升。
全基因组数据提高了可用位点数量,也会更清楚地暴露基因树冲突、杂交和祖先多态性。样本覆盖、标本鉴定、模型选择与开放数据仍决定结论质量。分类学不会因为测序普及而自动变成没有争议的“标准答案”,形态描述、模式标本和自然史信息依然不可替代。
分子技术会继续扩大采样和位点数量,同时也会揭示更多基因树冲突与隐蔽多样性。分类结论是否可靠,仍取决于标本、形态描述、地理信息、模型和数据共享;技术升级不会自动消除不确定性。
分类学与我们生活的联系
准确鉴定和谱系推断可用于保护、病原监测、农业和天然产物研究。应用结论还需要生态、毒理、药理或管理数据支持,分类关系本身不能直接决定措施成败。
错误鉴定可能造成保护对象遗漏、入侵物种误判或药材混淆。分类信息提供决策基础,最终措施还要结合种群数量、生态功能、有效成分与风险评估。
近缘种可能共享某些代谢途径,因此系统发育可帮助筛选候选药用成分或作物野生近缘种,但亲缘近不等于化学成分、药效或安全性相同。保护管理也不能套用“同种就促进交流、异种就一律阻止杂交”:是否迁地、杂交或基因救援,需要评估本地适应、疾病、近交和自然基因流。
-
生物保护:分类和种群遗传数据可识别独特谱系与管理单元,再与数量、栖息地和基因交流信息共同制定保护方案。
-
医药与药材鉴定:系统发育可帮助寻找近缘候选物种,DNA条形码能辅助鉴别来源;活性、剂量与安全性仍需药理和毒理实验。
-
农业育种:分类研究帮助确认作物野生近缘种和可利用种质,抗病或抗逆性状还需杂交、定位与田间试验验证。
-
生态修复:物种鉴定可避免误用外来种并记录本地群落,修复成效还取决于水文、土壤、种源和长期监测。
-
食品安全:形态与分子鉴定可识别毒蘑菇、掺假药材或水产品,风险降低还需要监测、溯源和公众教育。
系统树把人类放在生命多样性的一个分支上,也显示所有生物具有不同层次的共同祖先。分类与生态信息结合后,可以帮助识别独特谱系和功能群;保护价值还应考虑种群状态、生态作用与文化需求,而不是由分类等级单独决定。
分类学把名称、标本和可重复描述连接起来,系统学则检验生物之间的历史关系。新的样本与方法会修订旧结论,这种可更新性正是它的学习价值:任何分类判断都应能追溯到证据和方法。