理解生物复杂性
候鸟迁徙、金丝猴在林冠间移动、胡杨抵御干旱,背后都依赖许多层次的结构与过程。细胞需要调节物质交换,器官需要彼此配合,个体还要在不断变化的环境中作出反应。生物复杂性因此不只是“零件很多”,而是大量差异化部分通过物质、能量和信息联系起来,并在一定范围内维持整体功能。
从河流中的鱼类到深海热泉附近的微生物,不同生物面对的条件相差很大,却都要完成获取能量、维持内部状态和繁殖等基本任务。岩石、河流和沙丘也可能形成复杂形态,但生物体还具有代谢、遗传、反馈调节和可演化性。比较这些机制,比笼统地把生命称为“更高级”更能说明它的特殊之处。
理解生命系统的复杂性与其起源和运行机制,是生物学的根本问题。它不仅关乎学术探索,更决定着我们对健康、生态保护以及未来生物技术的核心认知。
什么是复杂性?
复杂性的基本特征
复杂性至少包含三个维度:组成部分的多样性、部分之间的联系,以及这些联系随时间发生的变化。单独列出细胞中的分子,并不能解释细胞为何能够维持代谢;还要知道这些分子在何处出现、何时发挥作用,以及一个环节改变后会怎样影响其他环节。由局部相互作用产生整体层面新性质的现象,通常称为涌现。
可以用一个比较来说明这个概念:
系统的复杂性不仅取决于组成部分的数量,还取决于部分之间的连接方式、层级和动态变化。生物系统通常包含代谢、信号、基因调控和反馈网络;人工系统也可能高度复杂,但形成方式与维护条件不同。比较时应先确定指标,避免把“复杂”直接等同于高效或优越。
此外,这类复杂系统还具有自适应性和修复力:面对环境的变化,不仅能主动做出调整,还能在局部受损时进行自我修复。这种高度动态与弹性,是复杂性系统与简单、随机堆砌结构的本质区别。
统计不可能性
讨论复杂结构的概率时,必须先说明样本空间、生成规则和判断标准。把一个现成器官当成预先指定的唯一目标,再计算所有部件一次随机拼成它的概率,会得到极小数字,却没有描述真实的演化过程。演化从已有结构出发,变异受发育和物理条件限制,结果还能通过遗传保留;选择、漂变和环境变化共同改变不同变异在种群中的频率。
图中的组合数量可以帮助理解“所有部件一次到位”为何困难,但不能据此断言复杂结构不可能由自然过程形成。关键区别在于,一次独立抽样不会保存中间结果,而生物演化具有继承性和历史依赖:已经存在且能正常工作的结构,会成为后续变化的起点。
复杂性的概率不能脱离过程来计算。演化研究关心的是可遗传变异如何在种群中产生、保留或消失,以及这些变化怎样受到环境、发育限制和历史条件影响。
从功能角度理解复杂性
生物结构常表现出明确功能,例如酶催化反应、血管运输物质、感受器接收刺激。这里的“功能”是结构在生物体内产生的可观察作用,并不意味着它预先追求某个目标。同一种结构还可能兼有多种作用,其效果也会随环境改变。
下方比较只能帮助识别维护、能量输入和功能输出等维度。不同系统承担的任务和尺度不同,不能用单一分数得出谁更高效;可靠比较需要统一功能、时间范围和测量方法。
不同系统的效率只能相对于具体任务比较,不能笼统排出高低。细胞擅长在温和条件下完成高度选择性的化学反应,工业装置则可能在速度、温度范围或产量上占优。生物复杂性的学习重点,是代谢、反馈和修复怎样在资源限制下共同维持功能,而不是把生命与机器放进同一条抽象效率刻度。
生命系统的特殊性质
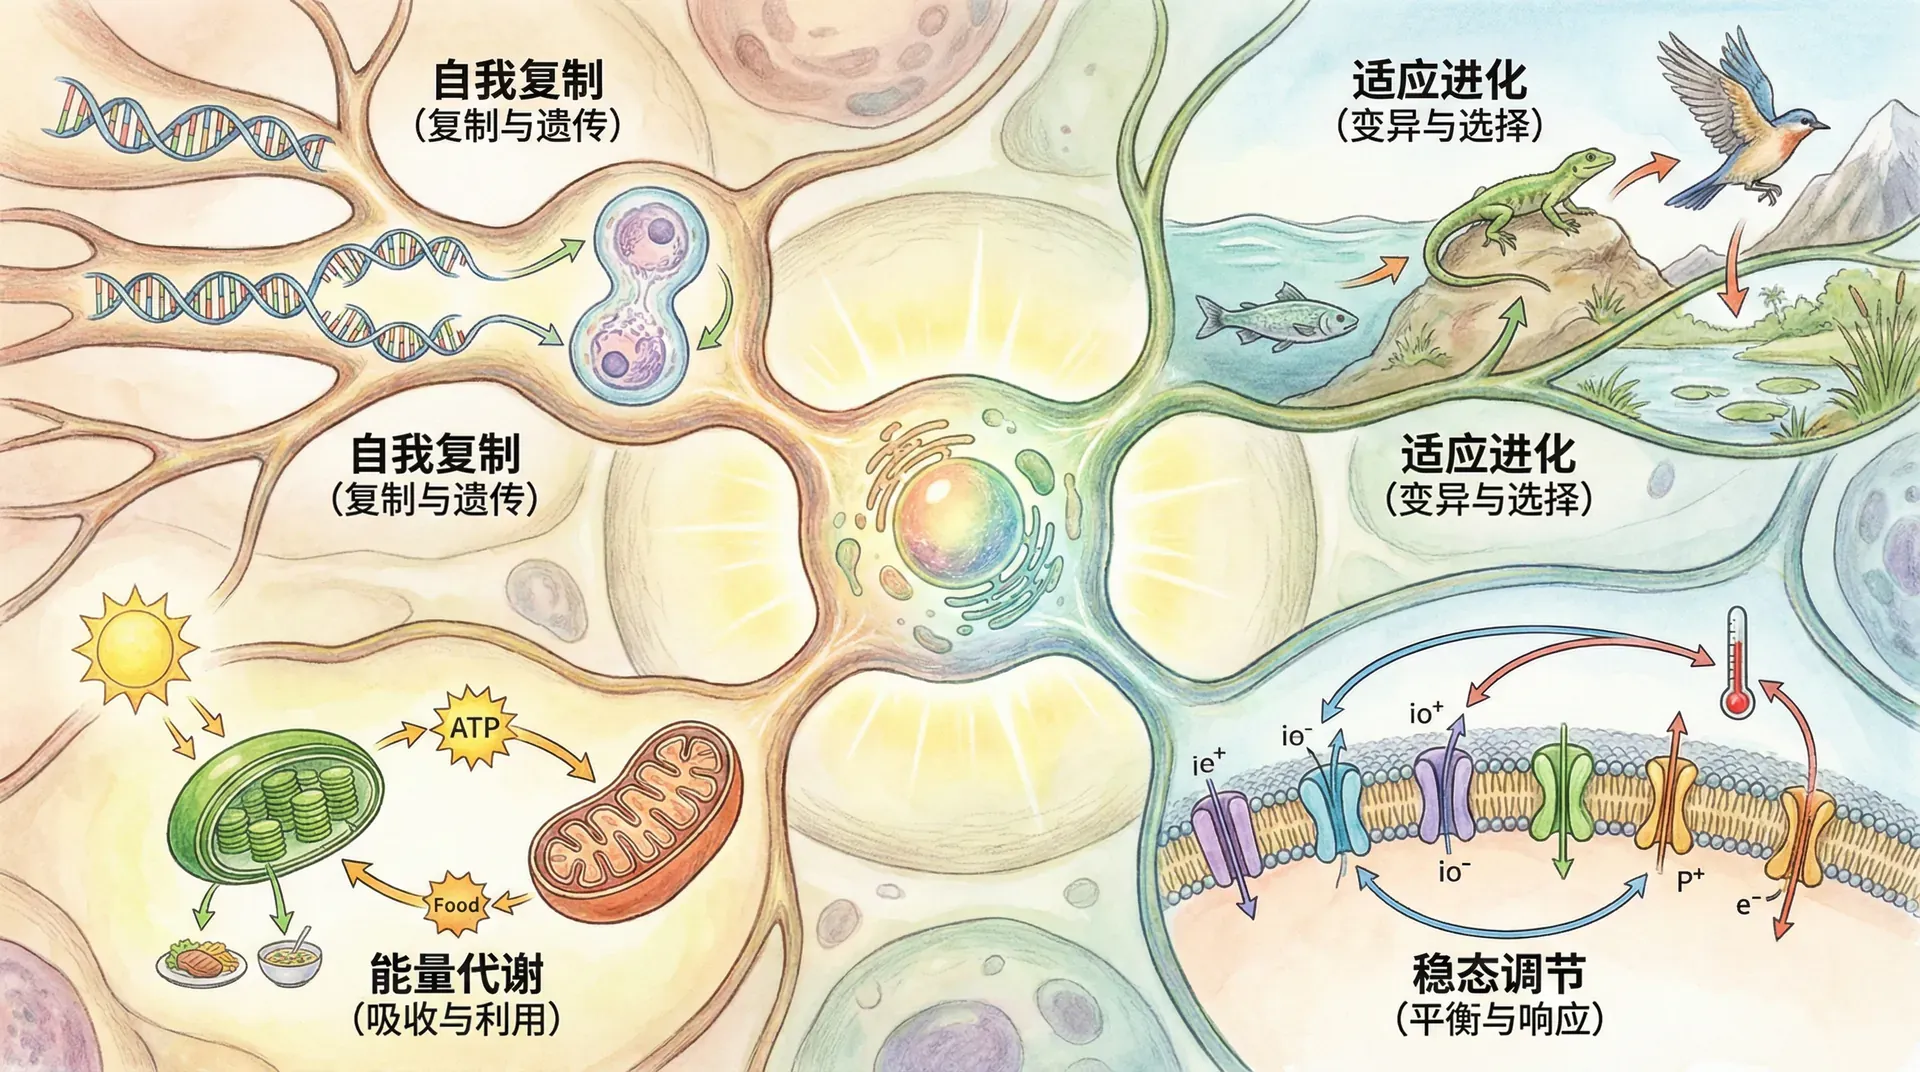
主动维持平衡
生物系统的一个核心特征,就是能够主动地维持和调节自身内部环境,使其即使在外部环境极端变化时,依然保持适合生存的稳定状态。这种能力被称为稳态(Homeostasis),是生命区别于非生命系统的关键之一。
在中国的生态系统中,这种主动维持平衡的现象表现得淋漓尽致:
-
胡杨树在塔克拉玛干沙漠边缘能够在极度干旱的条件下存活。胡杨树不仅拥有极为发达和深入地下的根系,以吸收深层稀少的水分;其叶子在炎热与干旱环境下还会变小甚至脱落,以减少水分蒸发。同时,它们体内含有较高的有机渗透物质,可以维持细胞不至于缺水萎缩。
-
藏羚羊生活在低氧、寒冷和强紫外线并存的高原。其适应涉及呼吸循环、能量代谢和缺氧信号通路等多方面,不能简化为血红蛋白越多越好;过度增加红细胞还会提高血液黏度。不同高原物种可能采用不同的生理组合。
-
竹子以惊人的速度生长,却能适应南北气候差异大、土壤贫瘠等环境条件。竹子的结构在生长过程中会自动调节,保证柔韧性与强度兼备;同时通过发达的地下茎网络,竹子群落能够在火灾、洪水后的较短时间内迅速恢复。
此外,许多中国本土生物也展现出主动调节体温、渗透压、酸碱度等多种稳态维持机制。例如,沙漠蜥蜴会在清晨吸收热量、正午躲入阴影调控体温;高原植物能够通过增加叶表蜡质层减少水分流失;长江中华鲟可以调节血液中的盐分,适应淡水与海水环境切换。
生物体是开放系统,需要持续取得能量和物质,并向环境释放热量和代谢产物。局部有序的维持不违背热力学定律;一旦代谢与修复停止,原有结构便会逐渐丧失。
图表可以显示不同系统在有序维持上的根本区别:
上图显示,“活细胞”等生物系统即便经历很长时间,依然能够维持高水平的有序度——这是因为其持续进行代谢、修复、调控等主动过程。而“死细胞”会因代谢停止而迅速走向无序,机器设备虽然通过维护可减缓磨损,但远不能像生命那样自我更新。
层次化的组织结构
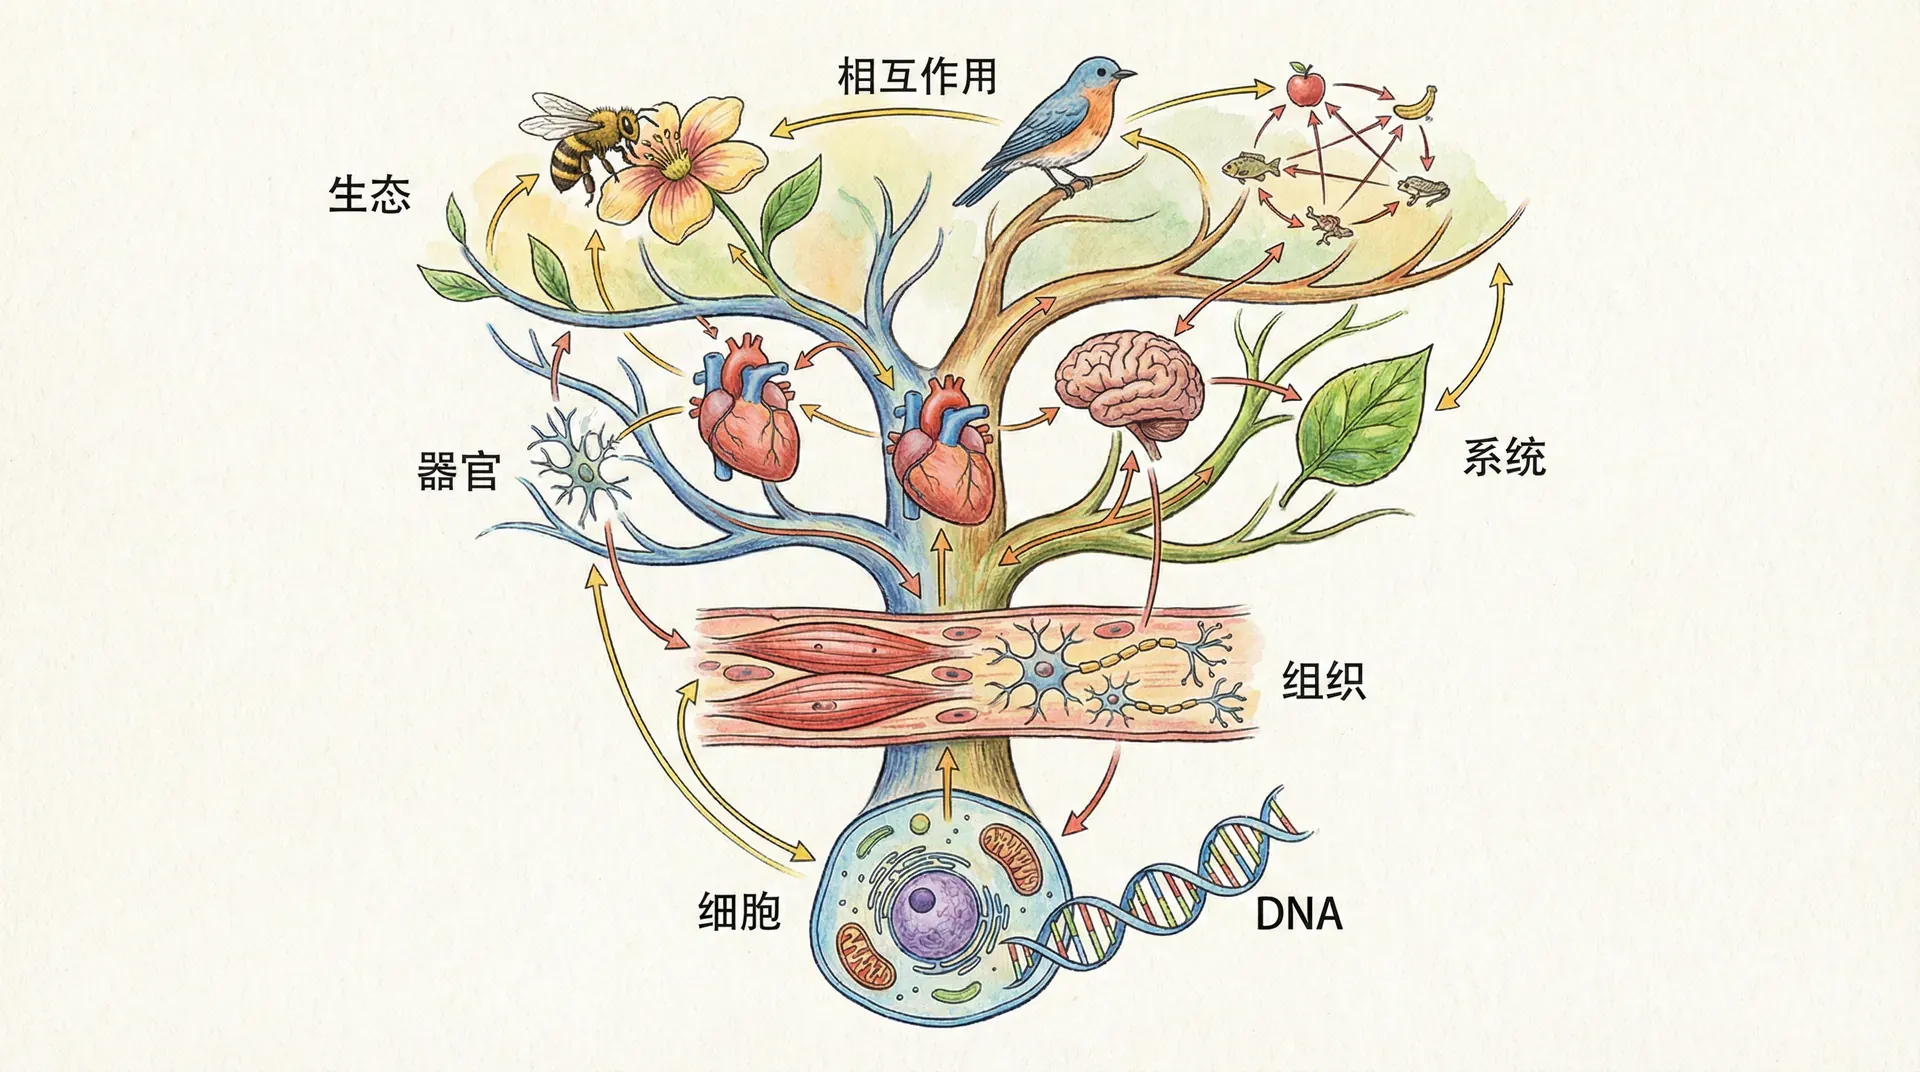
生物系统的惊人复杂性,还体现在其多层级、嵌套式的组织结构。这种层次化不仅带来功能分工和效率提升,还增强了系统的适应力和演化潜能。
从分子到生态系统,每一层次都在中国自然界中有鲜活例证:
正是这种多层次、有机衔接的组织结构,让生物能同时兼顾局部与整体的功能,从微观分子操作到宏观生态调节,展现出令人赞叹的复杂之美与生命力。
设计的表象与真实机制
传统的设计论观点
生物器官常表现出结构与功能的对应关系,人们很容易据此联想到有意设计。达尔文之前的自然神学把这种直觉发展为设计论证;它在思想史上影响深远,但“看起来像设计”本身不能说明形成机制。科学问题需要转化为可检验的比较:性状是否可遗传,不同变异是否影响繁殖,以及共同祖先和环境变化能否解释观察到的分布。
在泰山之巅发现带有规则雕纹的玉器时,结合加工痕迹、材料来源和考古环境,通常可以推断有人制作。这个判断依赖独立证据,而不只依赖“复杂”或“有功能”。把同一推理直接套到生物体,会忽略生物能够繁殖、遗传并在世代间演化这一关键差别。
- 精确的几何形状 —— 自然风化形成规整几何的概率微乎其微
- 复杂的纹理 —— 丰富的装饰性图案极难靠自然作用随机生成
- 明显的功能性 —— 例如玉石作为馈赠、祭祀或权力象征之意
鸟翼、鱼鳍、人眼和蜂巢都承担明确功能,但它们也保留祖先结构、发育约束和性能权衡。判断其来源时,应比较现生物种、化石、胚胎发育与遗传信息,而不是先把“适合功能”当成设计的证明。
设计论证把结构的复杂性与功能性解释为有意安排。演化生物学则提出可检验的自然机制:可遗传变异在种群中产生,选择、漂变和基因流改变其频率,已有结构在漫长历史中被保留或改作他用。两类解释的证据标准不同,不能只凭直觉判断。
把自然界的功能性解释为有意安排,在不同文化传统中有各自的哲学和宗教背景。“天工开物”更常用来表达自然造化或技术实践,不能简单等同于西方自然神学的设计论证。科学讨论关注的是能够产生可检验预测的自然机制。
达尔文革命
19世纪中叶,达尔文和华莱士提出自然选择理论,为适应性提供了可以用观察与比较检验的解释。现代演化理论又加入遗传学、种群过程、发育约束和分子证据。复杂结构可以在没有预设目标的情况下逐步形成,但具体性状的历史仍要逐项取证,不能用一句“自然选择造成”代替机制分析。
进化论解释复杂结构的四个关键环节:
产生差异 —— 突变与重组产生新的遗传组合,基因流还可把已有变异带入种群。
形成表型 —— 基因、发育过程和环境共同影响性状,变异未必都能遗传。
改变频率 —— 当可遗传差异影响繁殖成功时会发生选择;漂变也能随机改变频率。
积累与改作 —— 后代继承的结构成为后续变化的基础,长期可产生新功能与显著分化。
需要区分变异与选择:突变和重组不会因为生物“需要”某种性状而定向出现,但自然选择并非随机抽签,因为不同可遗传性状会造成繁殖成功差异。这个过程没有预设终点,也不保证种群越来越复杂或越来越完善。
生物进化的案例
在中国丰富的生物多样性中,我们能找到许多用进化解释而非“特殊设计”更为自然的例子:
大熊猫的拇指
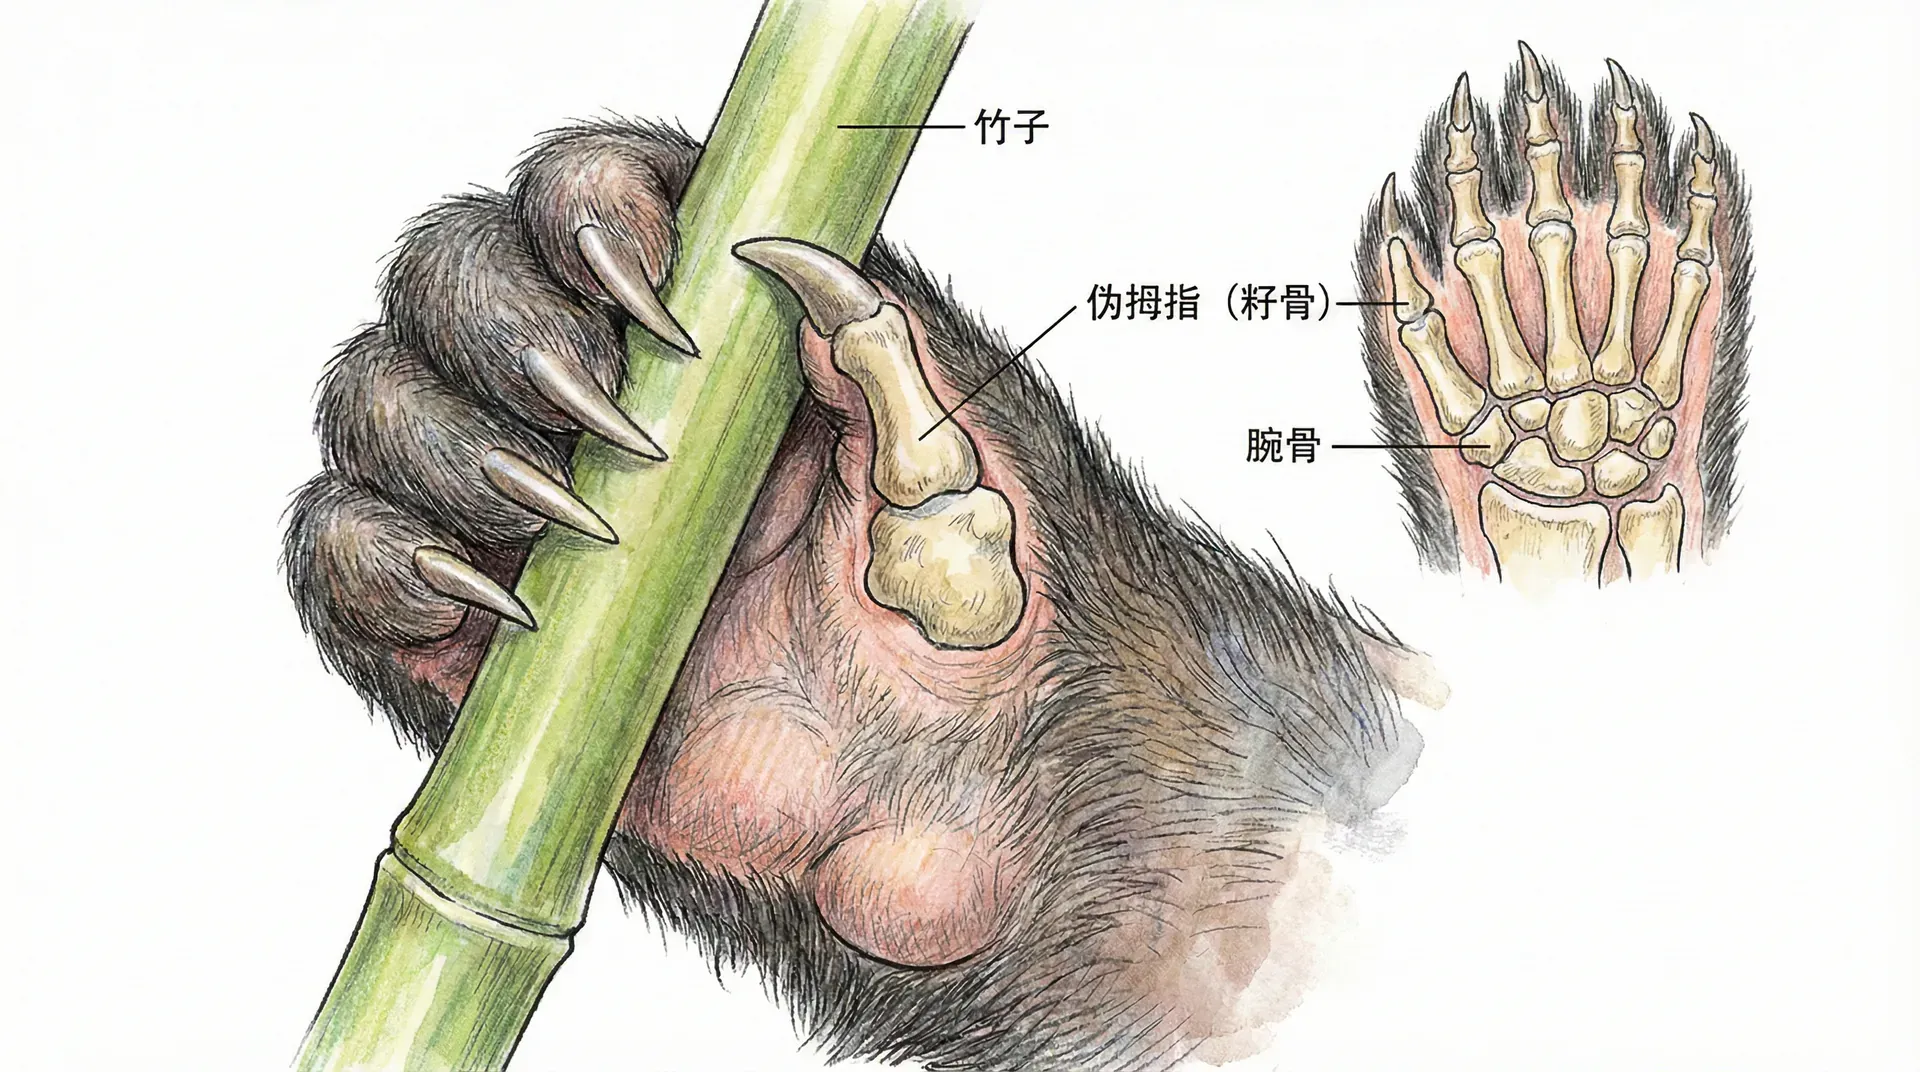
大熊猫的“伪拇指”由桡侧籽骨等腕部结构参与形成。祖先已有的骨骼、肌肉和发育途径限制了变化可以从哪里开始;在以竹子为主要食物的背景下,能够改善夹持效果的可遗传差异可能提高取食收益。现有结构够用却不如人类拇指灵活,正说明演化常在旧结构上改造,而不是从零制造理想器官。
- 进化亮点:结构并不完美,例如大熊猫的伪拇指比人类拇指灵活性差;但它已极大增进了采食竹子的效率。
- 科学意义:说明复杂器官可由“现成架构”微调演变,无需推断“专项创造”。
青藏高原生物的高原适应
青藏高原地处世界屋脊,无论是人类还是动物都面临着极低的氧气浓度。藏族人群与高原特有动物(如藏羚羊、雪豹等)分别通过遗传和生理机制适应极端环境:
- 藏族高原人群的适应涉及缺氧诱导通路、通气反应和循环等多种机制。与短期进入高原的人相比,他们通常不会仅靠大幅提高血红蛋白浓度应对低氧;某些与EPAS1、EGLN1有关的变异反而与较低的血红蛋白浓度相关,可减少过度红细胞增多的风险;
这些案例表明:生物复杂性不仅可以在达尔文进化论框架下清晰解释,而且不再需要假定有超自然的设计者。复杂结构和适应性源于亿万代的变异、筛选与积累,其“精巧”正是自然过程长期雕刻的结晶。中国生物多样性,也为进化理论提供了丰富的实证土壤。
理解复杂系统的方法
层次化还原论
分析复杂系统需要在多个尺度之间往返。研究酶时要看分子结构和反应速率,研究器官时要看细胞分工与物质运输,研究种群时还要加入个体差异和环境。分解问题有助于测量机制,重新连接各层证据才能解释整体行为。
以研究大熊猫的消化系统为例,这一系统本身就是多层次彼此嵌套、复杂联系的产物。科学家通常按从宏观到微观的顺序分层开展研究,每一层次都揭示了特定的信息和规律:
多层次研究能把取食行为、消化道结构、营养吸收和肠道微生物联系起来。大熊猫仍保留食肉目动物较短、较简单的消化道,其自身基因组没有提供完整的纤维素酶系统;它通过大量取食、选择较易消化的竹部位以及与肠道微生物的关系获得营养。不同层次的证据常会修正单看某一层得出的直觉结论。
分层研究的意义在于提出可检验的问题,并说明相邻尺度怎样连接。局部机制不能自动推出整体结果,整体模式也不能替代对组成部分的测量;模型、实验和跨尺度数据需要相互校验。
不同层次并不是孤立存在:分子水平的微小变异可能会在细胞水平累积影响,从而改变组织功能、最终影响整体表现。反过来,外部环境的变化也可能通过整体层应激,从上而下地影响基因表达与分子机制。这种“上下贯通”的动态贯穿着整个生命科学研究,也是理解复杂性的关键。
从简单到复杂的解释路径
科学的目标之一,是能够将复杂现象还原为一系列可以理解、可预测的简单原理。真正深入的科学解释,就是从基础出发,逐步构建到更复杂的层级。
下方图表说明这种“自下而上”的解释模式:
每一个层次的原理都建立在更基础层次的原理之上,但同时具有该层次特有的规律和特征。比如生物学的“自然选择”,虽然根植于物理和化学定律,但却展现出全新的复杂性和创造力。
复杂系统的科学解释
以“雪豹如何抓捕藏羚羊”为例:
- 物理层面 解释奔跑与跳跃的力学过程;
- 化学层面 涉及能量的获取和消耗;
- 生物学层面 分析猎物追踪、捕猎行为的遗传机理和神经调控。
只有将所有层级的信息整合起来,才能获得全面的解释。这种多层级的、从简单到复杂的分析路径是自然科学研究的基石。
概率与必然性

生命的统计学奇迹
讨论生命起源或复杂结构的概率时,首先要定义事件、生成过程和样本空间。把今天观察到的结构预先当成唯一目标,再计算它“一步随机拼成”的概率,会得到很小的数字,却没有描述真实历史中的化学反应、复制、遗传与选择。概率只有与明确机制相连时才具有解释力。
抛硬币可以说明“事先指定”与“事后观察”的差别。连续抛10次,任一特定序列的概率都是 ;只有在抛掷前指定“连续10个正面”,这个数字才表示对该事件的预测。看到现存结构后再把它当作唯一目标,会忽略大量同样可能但没有出现的历史路径。
生物演化不是一次随机组装。每一代都以前一代的遗传和发育系统为起点;选择、漂变、基因流与环境变化持续改变种群。因此,研究重点是哪些中间状态能够生存和繁殖,以及证据是否支持所提出的路径。
复杂适应通常由许多可保留的变化累积而成,也可能涉及结构改作、基因复制和调控网络重组。现存结果并非预先指定的终点,其他历史路径也可能产生不同但可行的结构。
累积选择的力量
进化的核心并不是要靠“幸运的一击”达成极端复杂度,而是依靠每一步小改良的积累和选择,逐步塑造适应性。这就是所谓“累积选择”的威力。
以古代建筑为例,没有哪一座雄伟的宫殿是一次铸成的:
已有结构
演化始终从当时种群已经具备的结构和遗传变异出发,不从一张空白图纸开始。
产生差异
突变、重组和基因流不断带来差异,发育过程与物理条件限制了哪些形态能够出现。
频率改变
自然选择、遗传漂变和迁移会改变变异在种群中的比例;有利与否取决于当时环境。
历史累积
被遗传下来的结构成为下一轮变化的背景,长期后可能出现显著差异,但没有预定成功概率或必然终点。
演化路径由许多能够延续的中间状态连接起来,但不能笼统声称每一步概率都高,也不能假定简单结构必然越来越复杂。研究者需要用比较解剖、化石、发育和遗传证据重建具体路径,并说明仍不确定的环节。
累积演化说明复杂结构不必一步出现。它同时提醒人们保持证据意识:提出中间状态后,还要检验这些状态是否可遗传、是否具有当时条件下的功能,以及它们在谱系中出现的先后关系。
自然界的“累积选择”例子
- 鸟类羽毛的演化:兽脚类恐龙中已出现多种丝状和分枝状皮肤附属结构,早期功能可能包括保温、展示等;后来部分羽毛形态参与形成飞行表面。羽毛与爬行动物鳞片都属于皮肤附属结构,但不能写成现代鳞片按固定阶梯直接变成羽毛。
- 哺乳动物听骨:从爬行动物下颌骨逐渐转化为专门传声的中耳听小骨,过程可在化石中明确追踪。
- 植物光合作用体系:各种层次的蛋白复合体逐步叠加,实现了高效率能量转化。
总结
生物结构常呈现功能上的协调,但科学解释要追问这种协调怎样形成。变异、遗传、选择、漂变、基因流与发育约束共同塑造种群;对具体性状,还要用比较、实验和历史证据判断各机制的相对作用。
理解生物复杂性的关键在于:即使最复杂的结构,也可以通过简单规则的长期累积效应产生。这正是进化论揭示的自然之力,不需要超自然设计者也能解释世界的精妙。
这些概念可继续用于分析健康、生态保护和生物技术问题。遇到新的性状或案例时,先界定尺度和功能,再区分可观察事实、机制假说与尚未解决的问题,能够形成持续学习的框架。
从秦岭的金丝猴到南海的珊瑚礁,从青藏高原的雪莲到东北的红松林,每一种生物都是伟大进化历程的活见证者。理解它们的复杂性,不只是学者的兴趣,也是现代社会保护多样性、可持续发展的必要前提。