生物复杂结构的渐进形成
大熊猫夹持竹子时,桡侧籽骨与掌部软组织共同发挥作用,看起来像多出一根拇指。它不是为竹食从零制造的手指,而是祖先已有腕部结构在发育和功能上的改变。复杂器官的研究重点,正是辨认旧结构、可行的中间功能,以及选择与历史限制怎样共同塑造现有形态。
复杂感知也见于齿鲸、鳄类和灵长类,但每个例子需要具体描述。中华白海豚等齿鲸利用回声定位;鳄类皮肤感受器能检测机械和其他刺激;金丝猴不同物种则适应各自的温度、食物和海拔条件。把它们并列的意义,是比较不同结构怎样在各自谱系中工作,而不是把所有适应归为同一种“奇迹”。
理解渐进进化的关键问题
研究复杂结构的形成,需要把笼统的“太复杂”拆成具体问题:祖先具有什么结构,变异怎样产生,中间状态能完成什么功能,哪些证据能排列变化次序。不同器官的答案可能来自化石、比较解剖、发育、遗传和生物力学的不同组合。
- 复杂结构不可能在一代之间凭空出现,比如中华白海豚复杂的回声定位系统是长时间积累的结果;
- 复杂结构可由已有结构逐步改变,也可能经历基因复制、功能转换和结构重组;变化不必每次都更复杂;
- 中间状态只要能正常发育和繁殖就可能存在,但化石记录并不保证保存所有过渡,现生物种也不是祖先阶段的陈列;
- 突变、重组和基因流产生遗传差异,发育过程决定这些差异怎样形成表型;
- 中间状态是否保留取决于繁殖成功、漂变、基因流和环境,微小优势并不保证一定固定。
视觉系统的进化历程
部分视觉的价值
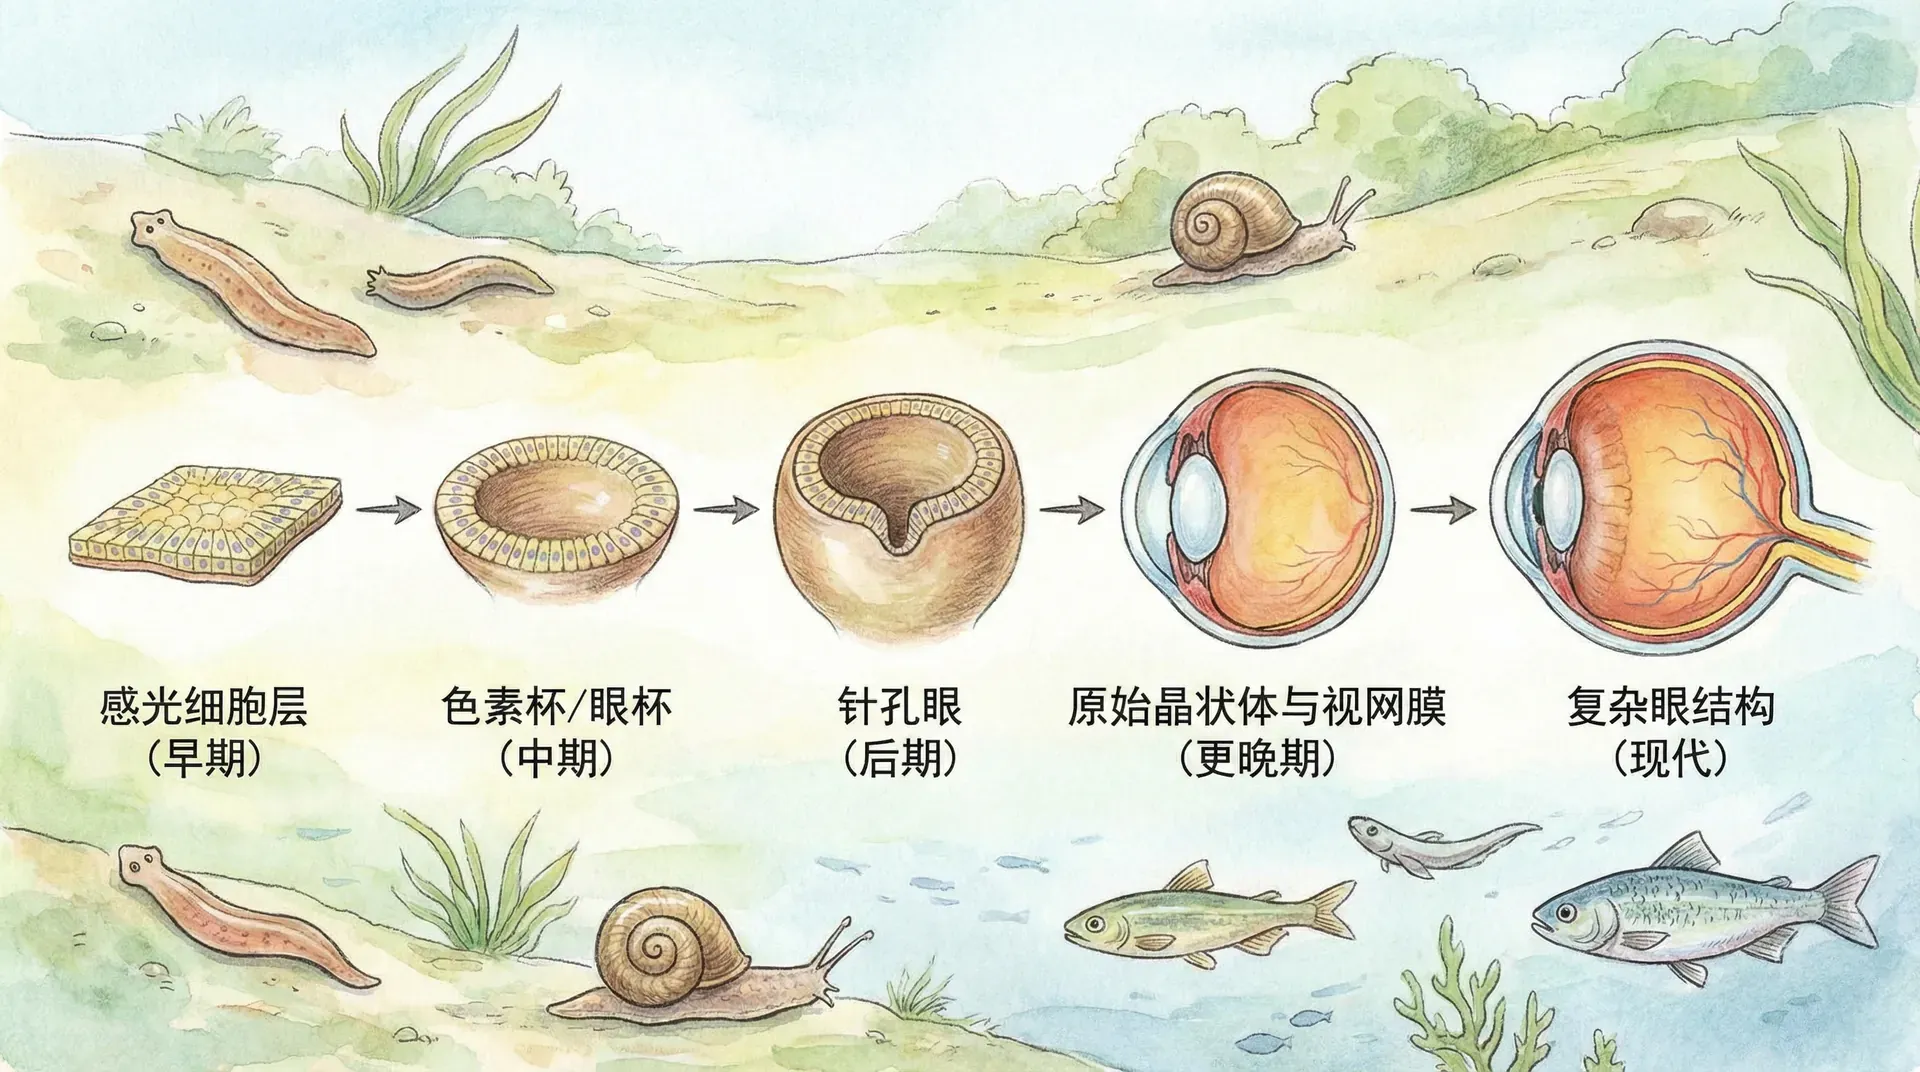
“5%的眼睛”不是严谨的生物学量词。简单光感受只能提供明暗信息,凹陷的感光面可以增加方向信息,增加透明介质和折射结构又可能改善成像。每种结构是否有利,要看动物的行为、环境和成本;自然选择作用于完整个体,而不是按百分比单独升级一个器官。
近视者摘下眼镜后仍可分辨明暗和近处轮廓,这能直观说明视觉功能不是“全有或全无”。不过,人的模糊视觉来自已形成的复杂眼睛,不能当作早期眼睛的祖先状态;它只帮助理解较低分辨率也可能提供有用信息。
简单感光能够调节昼夜活动或运动方向,方向感知和粗略成像又可支持避障、觅食与避敌。功能收益取决于生活方式和光环境,也可能伴随能量与发育成本,因此不能把“5%的视觉”当作统一指标。
比较动物学和光学模型表明,从感光斑到杯状眼、针孔眼和具有透镜的眼,可以构造连续且每步改善空间信息的路径。这类模型证明路径在物理上可行,却不是某一真实谱系的逐代录像;具体历史仍需结合发育基因、系统发育与化石证据。
中国动物的视觉系统多样性

涡虫的色素杯、部分水母的眼、昆虫复眼和鸟类相机眼展示了不同视觉系统。它们不是由低到高的一组祖先阶段:这些现生谱系彼此分化已久,每种眼型都经历了独立改变。比较结构与功能,可以提出眼睛渐进演化的可行路径,但不能据此还原某个物种的完整祖先序列。
这些现生动物展示的是眼睛的多种可行形式,并不是从“低级”到“高级”的一条阶梯。复眼与脊椎动物相机眼分别经历了很长的独立演化,不能把白鹭视为二者之间的中间类型。比较不同眼型的价值,在于识别共同的光感受基础和各谱系独特的结构改造。
针孔相机眼的演化
除了上述典型的“生物之眼”,中国海域的动物也展示了视觉进化的多样性。例如乌贼、章鱼具有人类般的透镜单眼,但鹦鹉螺却保留了“针孔相机眼”:
鹦鹉螺眼没有典型晶状体,光经小孔进入眼腔。较小孔径通常提高空间分辨率却减少进光量,体现灵敏度与清晰度的权衡。它是适应现有生活方式的现代器官,不能直接视为其他头足类或脊椎动物眼睛的“早期雏形”。
鹦鹉螺、乌贼和章鱼的眼睛都经历了长期演化。它们的差异说明眼的结构受生态条件、祖先状态和发育机制共同约束;没有晶状体不代表停止进化,也不能据此断言某条发育路线在物理上不可能。
针孔眼说明不具晶状体的视觉系统也能工作,同时展示分辨率、亮度和结构成本之间的权衡。比较不同头足类眼睛,有助于研究已有结构怎样限制或开启后续变化,而不是给眼型排出完善程度。
其他器官系统的渐进演化
翅膀的起源
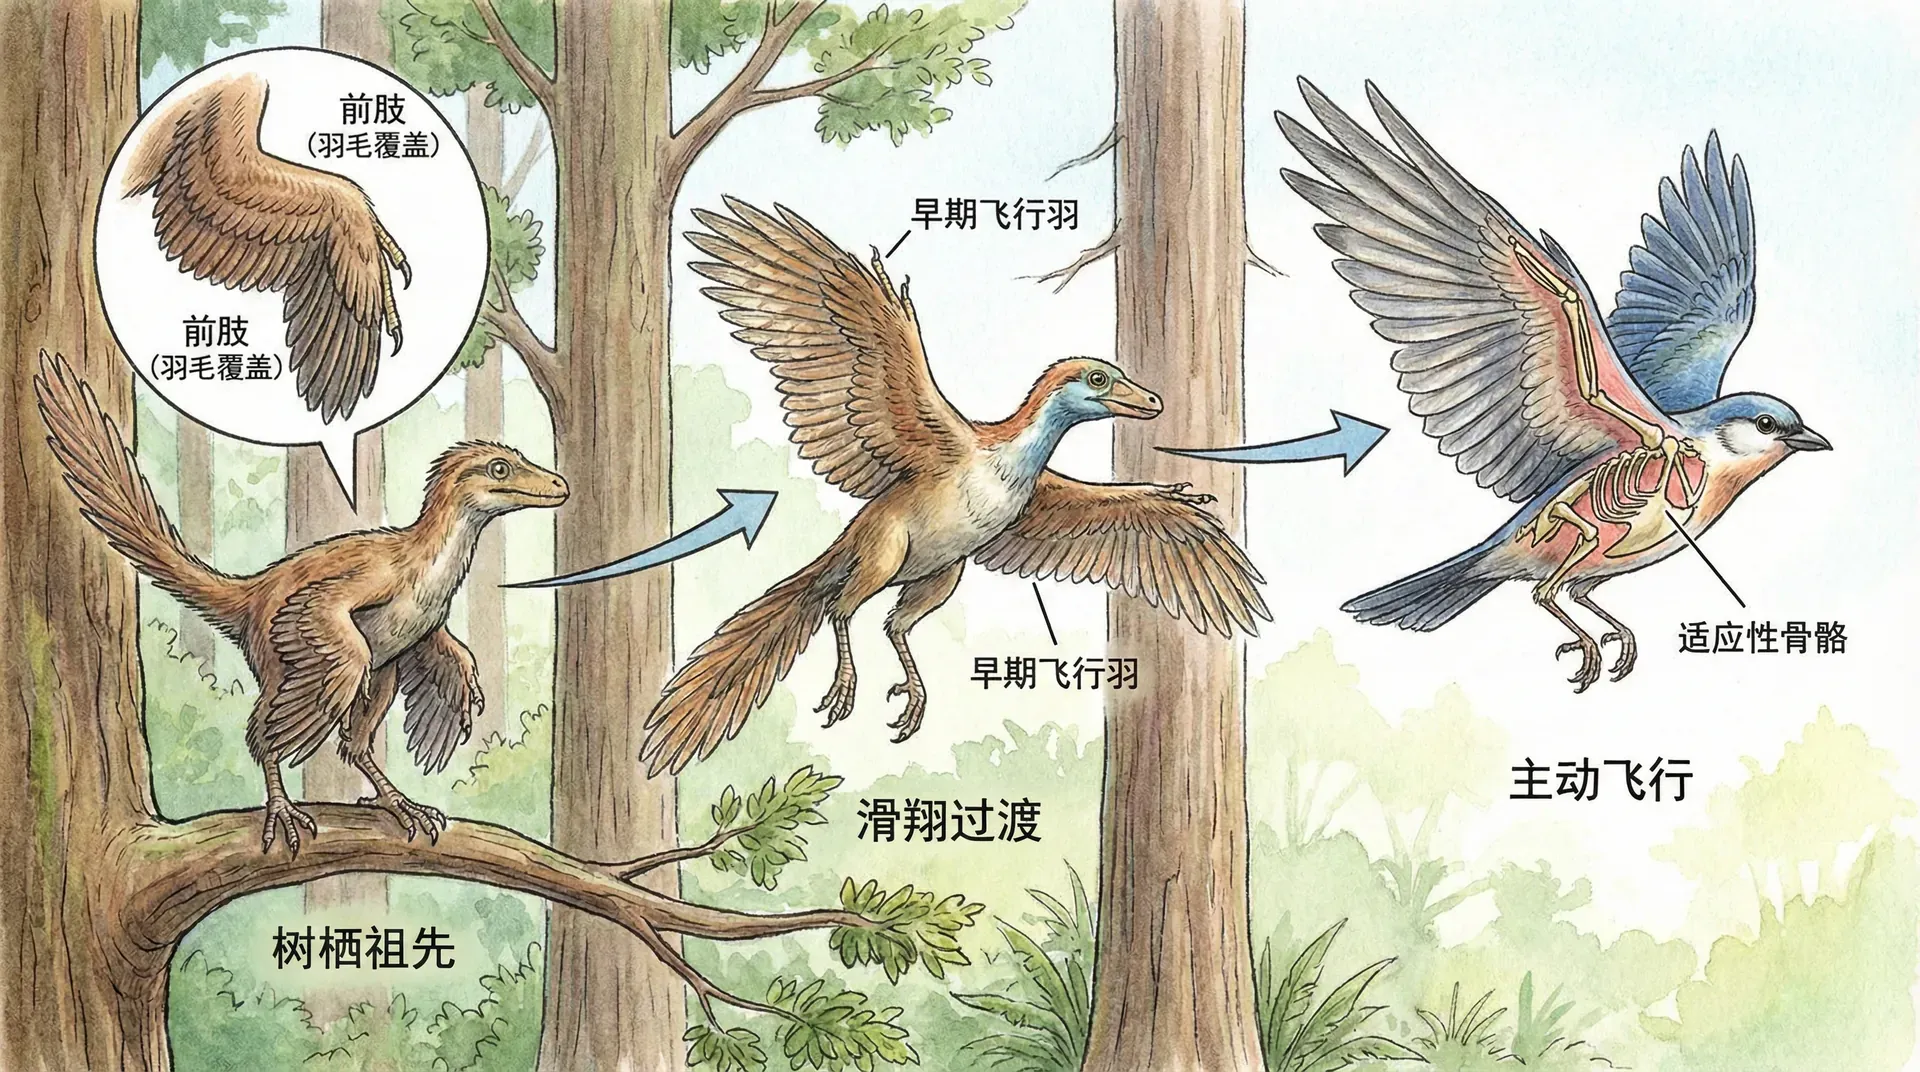
“不完全适合持续飞行的前肢有什么用”需要按具体谱系回答。羽毛在动力飞行出现前可用于保温、展示或覆盖体表,带羽前肢和尾部还可能参与平衡、减速、斜坡奔跑或滑翔。飞鼠的皮膜展示了滑翔的另一条路径,却不是鸟翼的祖先阶段;昆虫翅的起源也仍有多种发育与化石假说。
以动物为例:
实际上,很多昆虫及无脊椎动物,比如中国的竹节虫、纺织娘等,都有发育不完全的半翼,能帮助短距离游移、逃避天敌。鸟类的雏鸟翅膀也显示出滑翔——扑腾——腾飞的典型渐变过程。
肺部的演化历程
脊椎动物的肺和许多硬骨鱼的鳔与前肠的含气囊结构有关,但“肺先出现还是鳔先出现”不能用现代鱼类排成简单顺序。早期含气囊可能同时具有呼吸、浮力或其他作用,后来在不同支系中发生结构和功能分化。鲤鱼、青鱼到水面吞气的行为也不等于拥有肺的祖先形态。
中国内陆水域多缺氧,有趣的各种“初级肺”就在此广泛出现。比如:
- 黄河、长江等浑浊河流的鲤鱼、青鱼,为了对抗水中低氧,会浮到水面吸气,将空气短暂存储在口腔或鳃腔。这类简单“空气室”即为肺的演化起点。
- 原始肺的进一步演化体现在气室内壁布满血管、小突起,有效提升氧气与血液的交换效率。
- 部分鱼类继续优化这一结构,衍生出多室分隔、分支管道,极大提升了氧气利用率。
- 现代鱼鳔,原本用于辅助呼吸,后来被“征用”为调节浮力的新器官;而肺鱼类则延续了“真正肺”型呼吸系统,其后代最终发展为两栖类与爬行动物高度复杂的肺泡结构。
这一渐进过程里,每一小步都只是轻微结构和功能调整,却都能在极端环境下带来明显的生存提升。事实上,鱼类、两栖动物到爬行动物的化石序列,为这一“连续进化”提供了实证支持。
听觉系统的发展
听觉的进化同样是一级级改进的成果。最原始的生物只需要能感觉某种振动就足以获益:
- 蛇类虽然没有典型耳廓,但下巴骨通过头骨直接接触地面,可以灵敏地感知猎物或天敌带来的微振,这种“传震”感受是听觉和触觉的过渡形态。
- 蜘蛛的丝网可放大风和生物带来的振动,蛛丝上的各类感受器细胞可以分辨环境的各种信号类型,如猎物挣扎、风力大小、同类求偶等。
- 蝈蝈和纺织娘等昆虫可通过前足鼓膜器接收声音;它与脊椎动物耳的结构来源不同,是独立演化的振动感受系统。
- 哺乳动物(如蝙蝠)的听觉极度发达,外耳、内耳、听小骨到大脑声音处理区,无不是一系列微细演化积累之产物。蝙蝠更能发展出回声定位系统,实现三维空间精准导航。
胚胎发育能保存共同祖先留下的结构关系,例如哺乳动物中耳与早期脊椎动物颌弓结构之间的同源线索。但胚胎不会依次重演成年鱼类、两栖类和爬行类,“个体发育重演系统发育”已不是现代发育生物学的准确表述。共同发育程序会被各谱系重新调控和改造。
简单感受能力是否有利,取决于它提供的信息、使用信息的行为以及维持结构的成本。渐进演化要求中间状态可生存和可繁殖,并不要求给器官标注“1%”或“5%”的统一能力值。
趋同演化
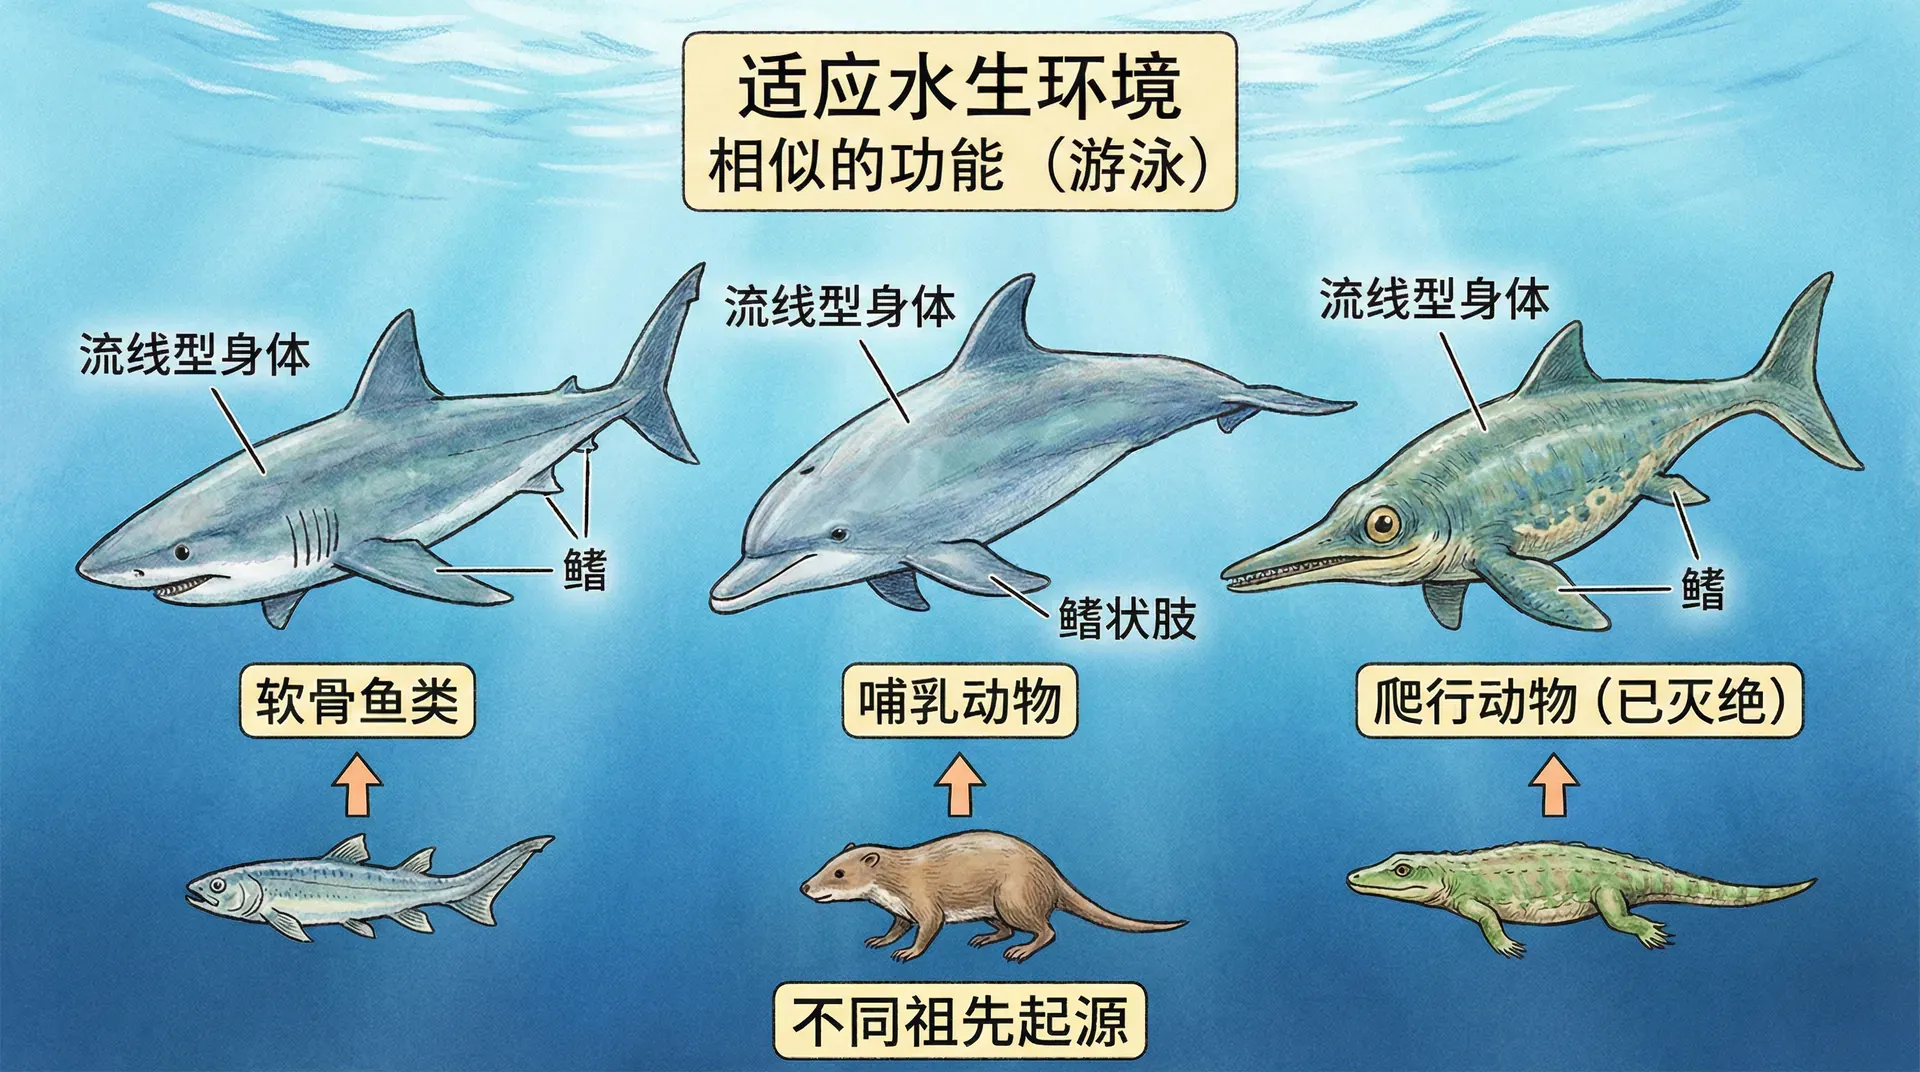
趋同演化指的是不同亲缘关系的生物,在相似环境压力下,独立演化出相似的结构或功能的现象。它展示了自然界面对类似生存挑战时所出现的“解决方案趋同”现象,是理解进化论的重要窗口。“独立创新”往往会在生物界不断上演。
回声定位的独立发明
回声定位无疑是趋同演化中极具代表性的例子。在多个与亲缘无关的动物门类中,这一复杂感官系统都以各自独特的方式被“发明”出来,大大增强了它们在极端环境下的感知能力。
在中国,可以观察到至少两类具有回声定位能力的动物:
1. 中华白海豚
栖息于珠江口等浑浊水域,水下能见度极低。传统视觉根本无法定位猎物。
进化出发达的回声定位系统,包括:
- 精密的发声结构(额部的“声波聚焦器”):可发出高频超声
- 特殊的接收器官(下颌里的脂肪垫,能导声至内耳)
- 神经处理系统:大脑相关区域极度发达,可将回声讯号还原为空间图像
海豚依靠回声定位实现高精度导航、觅食和族群交流。甚至能通过回声分辨出鱼群密度、个体形状和大小。
2. 食虫蝙蝠
生境类型多样,包括山洞、丛林乃至城市。夜间活动,光线极弱。
进化出高度发达的回声定位能力,但结构与海豚完全不同:
- 发声方式:通过喉部(而非头额部)发出超声波,经口鼻喷出
- 接收方式:外耳巨大、灵活,能“追踪”声波;下颌骨参与导声,但机制不同
- 大脑处理机制:听觉区域专门化,适应信号处理,与海豚具有本质差异
蝙蝠依靠回声定位避障、捕猎飞虫,有的种类还能检测到微小昆虫的翅膀振动。
对比分析
除蝙蝠和齿鲸外,油鸱以及部分金丝燕也会用可听声或高频点击在黑暗环境中定向。金枪鱼没有声呐。回声定位在多个谱系中独立出现,说明相似的感知任务可能形成相似功能,但发声器官、信号频率和神经处理并不相同。
如果某种设计极为有效,自然界就会在不同进化分支中反复地“独立发现”它。
电场感知的趋同演化
类似地,不同动物还独立进化出“电场感知”这种几乎不可见的第六感。
1. 长江中华鲟
- 生活在水流湍急、泥沙众多的长江水域,依赖电感受器协助发现猎物。
- 感知机制:主要是皮肤头部和体侧特殊细胞,被动感知水中微弱电场变化。
- 主要功能:定位猎物、导航迁徙,在能见度极差时依然能精准行动。
2. 南美亚马逊的刀鱼和电鳐(如电鳗)
- 独立进化出强大的电生理系统。有些鱼类甚至能主动产生电场,通过检测自发电场的扰动主动感知世界。
- 感知器官:全身散布电感受器,部分可主动发电,部分被动物用于捕食或防御
- 脑部处理:专门神经区域强化处理电信号
- 功能相似:精准觅食、避障和水域导航
趋同演化不仅发生于感官系统。比如大熊猫的“伪拇指”与鼩鼱(袋熊等)的类似结构、沙漠中不同植物门类的多肉化、狼与袋狼的形态趋同等,都是自然选择多次“独立走通相似路径”的例证。
渐进演化的时间尺度
理解演化的渐进性,必须结合“地质时间”的广阔尺度。人类微观的时间观人们难以想象生命可以在数百万年间由简单逐步走向复杂。
示意图用于表现变化可以跨代累积。真实种群中,并非每代都有优势变化,选择也可能被漂变、基因流或环境改变抵消;显著结构差异通常需要在具体谱系中检验其遗传与功能基础。
哺乳动物中耳听小骨与合弓类祖先颌部骨骼的同源关系有丰富化石和发育证据。叶片气孔、维管系统、昆虫翅和动物眼则属于不同谱系的问题,各自的速率与路径需要独立研究。“变化细小、时间足够”是必要线索,却不能替代机制证据。
地质时间为变化积累提供机会,但不保证任何“突破”。复杂结构能否形成,取决于可遗传变异、种群历史、环境条件和发育约束;演化还可能造成结构简化或功能丧失。
理解演化的原理
现代生物学分析复杂结构时,通常关注变化的连续性、可行功能、时间尺度和谱系比较。以下原则是提问框架,不是对所有器官都适用的固定配方。
-
连续性
后代来自前代,结构变化必须经过可发育、可繁殖的中间状态;变化幅度与速率可以因机制而异。 -
功能与改作
中间结构可能保留部分原功能,也可能先承担另一种功能,之后被改作新的用途;并非每一步都增加复杂度。 -
时间与种群过程
漫长时间增加变化与分化的机会,但结果仍取决于变异、选择、漂变、基因流和环境历史。 -
趋同演化
相似选择压力和物理约束可使不同谱系独立形成相似功能,但内部结构与历史通常留下可辨认差异。
这些原理帮助分析大熊猫伪拇指、齿鲸回声定位、候鸟导航和高原生理等性状。具体解释还要加入遗传漂变、基因流、功能转换和发育约束;并非所有结构都能还原为一串只受选择推动的微小改良。
渐进演化关注可行中间状态,趋同演化关注相似功能为何在不同谱系独立出现。二者都需要比较证据来检验,不能把时间或随机变异本身当作足以保证复杂结构出现的答案。