生物进化的节奏之谜
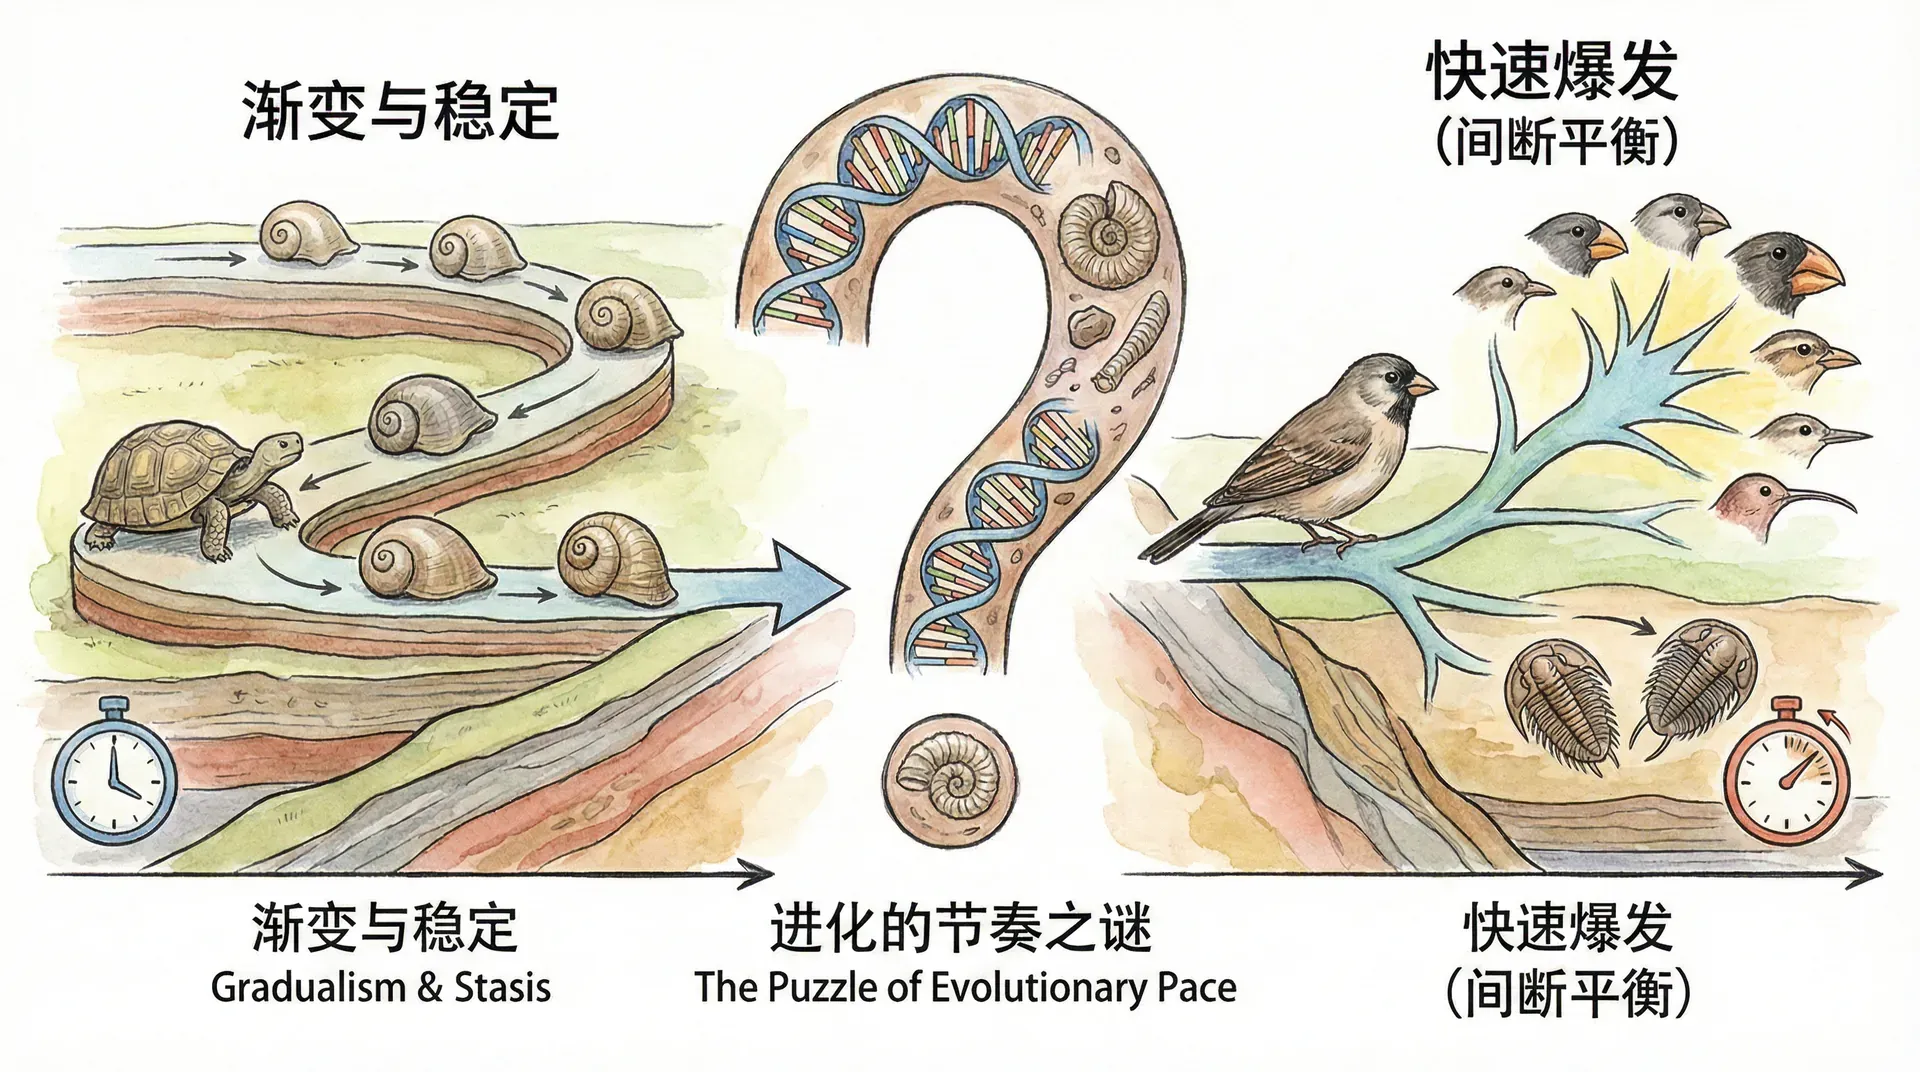
商队的长途行程包含赶路、补给、停留和季节等待。若只用总距离除以总天数,会得到一个平均速度,却看不到各阶段差异。化石记录也把漫长历史压缩成离散层位,因此研究演化速率必须考虑时间分辨率、沉积间断和采样密度。
实际上,商队的行进模式远比平均数复杂得多。他们会在荒漠与戈壁中快速穿行,争分夺秒赶路,只为在水源有限的困难地带及时抵达绿洲。而每到一个绿洲,商队则会长时间停留,补充补给,修整行装,甚至因各种突发原因(如天气、边境动荡、贸易商议等)被迫滞留数周乃至数月。每一次完成休整再出发,往往又是高效而迅速的“冲刺”。因此,丝绸之路的实际行进轨迹,是由频繁的“停顿”与间或的“快进”交错构成,呈现出“阶段性停滞-短暂冲刺”的节奏。只看整体平均,反而遮蔽了这其中的动态细节与独特节律。
平均值可能掩盖短期变化,但化石中的“间断”也不自动代表快速演化:物种迁入、缺层或样本不足都能造成突然出现。区分这些解释,需要连续地层、年代控制和形态统计。
这就引出了生物进化中的一个核心争议:生物进化到底是像钟表一样匀速进行,还是像丝绸之路商队那样,经历长期的静止和偶发的快速变化?生物的历史是一条平滑上升的曲线,还是一连串“停滞-突变-再停滞”的阶梯?
间断平衡论
1972年,尼尔斯·埃尔德里奇与斯蒂芬·杰伊·古尔德系统提出间断平衡模型,用来解释化石种内形态长期相对稳定、形态变化又常与物种形成相联系的模式。这里的“平衡”指形态停滞,“间断”指在地质尺度上较短的分化期;它描述速率分布,并不主张基因或个体突然跨越多代。
- 静态阶段:同一化石种在相当长时间内可保持主要形态范围,但种群仍可能发生遗传、生态和生理变化。形态停滞不等于停止演化。
- 分化阶段:较明显的形态变化常与地理隔离和物种形成有关。相对于数百万年的地层跨度,这段时间较短,但仍包含许多代连续变化。
- 记录模式:祖先种可在一段时间内与新分支并存,化石剖面又受沉积间断、迁入和采样不足影响。因此,间断平衡是需要用具体地层和统计模型检验的模式,不是环境剧变必然触发的周期。
这个理论形象地揭示了进化史中的两个世界:一个缓慢、稳定、几乎原地踏步;另一个则在某些时期急速激变,走完了常人想象中几万年甚至几百万年才能完成的演化之路。许多地质记录都能看到这种“阶梯式”的变化轨迹。下表和图示进一步阐释了这两种进化观的差别:
与传统观点的区别
间断平衡论与传统观点的主要区别可归纳如下:
- 对渐进性的态度:间断平衡论并不否认达尔文的渐进进化思想(gradualism),也不是认为进化“存在飞跃”,它强调的是进化速度在时间上分布不均,而非线性渐变。
- 传统观点:
- 认为生物进化是一个持续、缓慢累积的过程。
- 物种形态沿着“平滑斜坡”不断变化和完善。
- 间断平衡论:
- 基于大量化石和地质证据,发现物种在很长一段时期基本保持稳定,仅在特定环境剧变、迁徙或小种群隔离等关键事件时才会发生较快的进化“跃迁”。
- 进化过程整体表现为“静止-突变-再静止”式的阶梯变化。
- 进化节奏的突出特点是:大量的静止阶段夹杂短暂的快速变化期,这种不均匀性与生态、遗传、地理等事件密切相关。
需要注意的是,这里的“间断”并非指进化中有突然的、超自然的飞跃或颠覆性变化。即使在快速变化期,物种演化依旧依赖代际间自然选择与遗传变异的逐步积累。只不过在地质时间尺度下,这些累积被压缩进更短区间,在化石记录中给人“突然出现新类型”的印象。实质上,这种“突变”依然符合生物学规律和自然法则。
中国生物多样性的证据
中国地域辽阔、地形多样,拥有丰富的自然生态系统,这使得中国不仅成为世界生物多样性最为丰富的国家之一,也为研究进化过程特别是间断平衡论提供了宝贵的天然样本。中国的生物多样性在植物、动物、真菌等多个门类上均表现出极为突出的特征,许多“活化石”、地理隔离现象与快速物种分化的经典实例,都成为验证和拓展进化理论的真实案例。
活化石现象
“活化石”是科普用语,通常指现生类群保留了一些在古老化石中也能看到的形态,或其近缘现生种较少。它不表示今天的物种就是远古物种原封不动地存活下来,也不代表基因、生态关系和全部器官都停止变化。用这些类群讨论形态停滞时,应明确比较的是哪些性状和哪段谱系。
表中的类群都具有较长的化石记录,但“谱系古老”“现生近缘种少”和“某些形态保守”是不同概念。只有把同源性状在连续地层中量化比较,才能讨论停滞持续多久;名称本身不能证明间断平衡。
形态保守也不等于适应任何环境。孑遗类群往往分布狭窄、更新缓慢,面对栖息地破坏和气候快速变化可能尤其脆弱。讨论其存续原因需要比较生态位、种群历史和灭绝的近缘支系。
- 银杏的启示:银杏类叶片在长时段内保留可识别的基本构型,但叶脉、繁殖结构、物种组成和地理分布均发生过变化。现生银杏不能与二叠纪植物画等号。
- 扬子鳄与中华鲟:它们所属的大类群有古老化石记录,现生种却有自己的近期演化史。保护困境主要来自栖息地、河流连通性和人类活动,不能解释为“静态无法适应社会变化”。
这些例子提醒人们,某些外部形态可以长期相对稳定,同时分子、行为和生态性状继续变化。它们可用于提出形态停滞的问题,但是否符合间断平衡,仍需连续化石样本和谱系分化证据。
地理隔离与物种快速分化
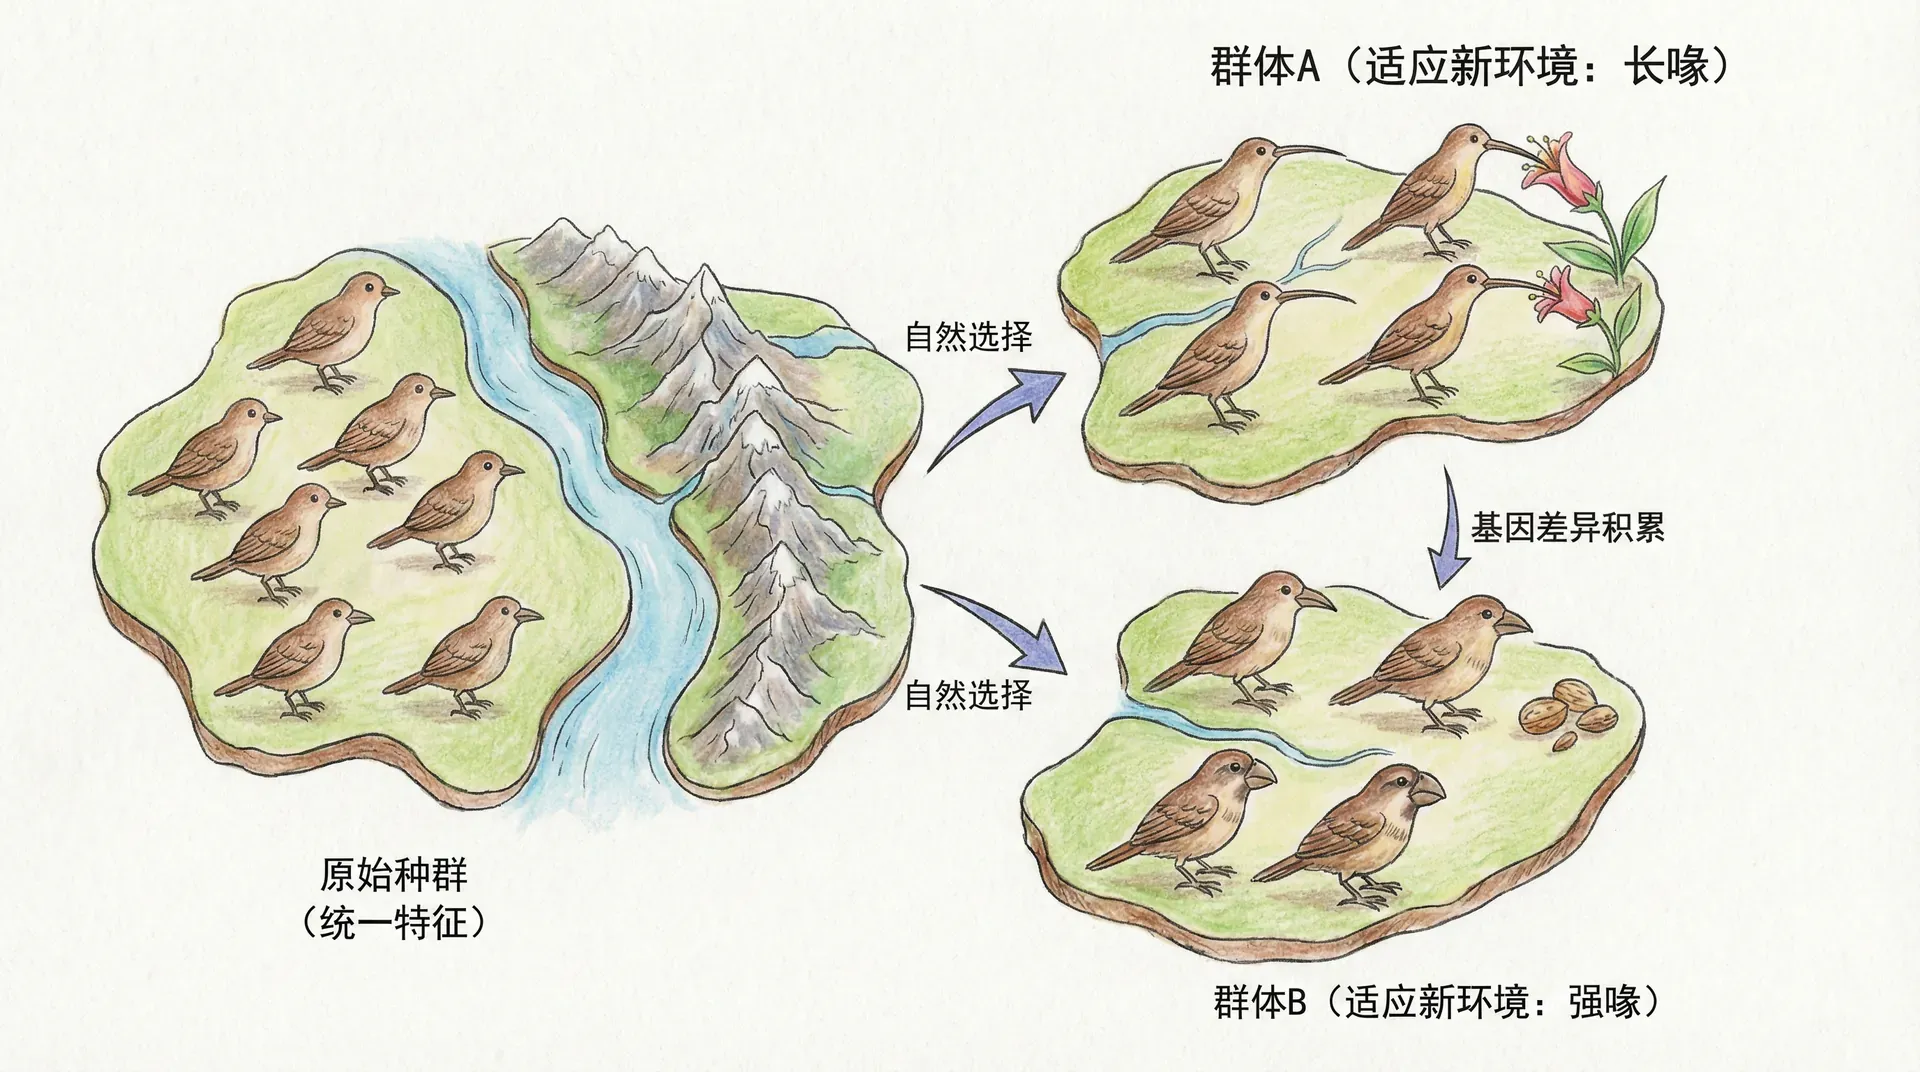
中国复杂的地形地貌(高山、河谷、盆地、荒漠)为生物的地理分化提供了天然平台。不仅秦岭-淮河线分隔了南北气候生态,更有青藏高原、横断山脉、台地河谷等形成独特生态屏障。不少物种正是在这些地理隔离条件下实现了快速分化,成为间断平衡论下“间断—平衡”机制的优质案例。
大熊猫的种群分化
秦岭与岷山等山系的大熊猫种群存在遗传和形态差异,长期地理隔离、第四纪气候变化与近代栖息地破碎化都可能参与其中。秦岭亚种的提出有形态与遗传依据,但“30万年前秦岭快速隆起后在10至15万年完成分化”不是可以据现有材料直接确认的单一路径,更不能称为间断平衡的标准范式。
大熊猫的分化过程揭示了间断平衡论的三个核心机制:
- 地理隔离的建立:秦岭的隆起在短时间内形成了强隔离屏障,阻断基因交流。
- 快速分化期:隔离后10~15万年内,受到气候和植被差异影响,两地种群迅速呈现遗传与形态差异。例如,秦岭大熊猫体型更小、头骨更圆、毛发密度更高,适应山地多云湿冷环境;四川大熊猫则体型稍大,更适于亚热带密林生存。
- 新的平衡状态:分化完成后,两亚种进入新的相对“静态期”,各自稳定适应环境。
基因组与形态数据可以检验不同大熊猫种群的分化和基因交流。把这些结果与间断平衡联系起来,还需要连续化石序列、分化速率和物种形成证据,不能只凭现生种群差异下结论。
同时,中国境内还有许多类似案例:比如金丝猴(滇金丝猴、川金丝猴)、朱鹮种群等在横断山脉与秦岭区域的分化历史,都有力说明了地理隔离在推动快速进化中的作用。
青藏高原
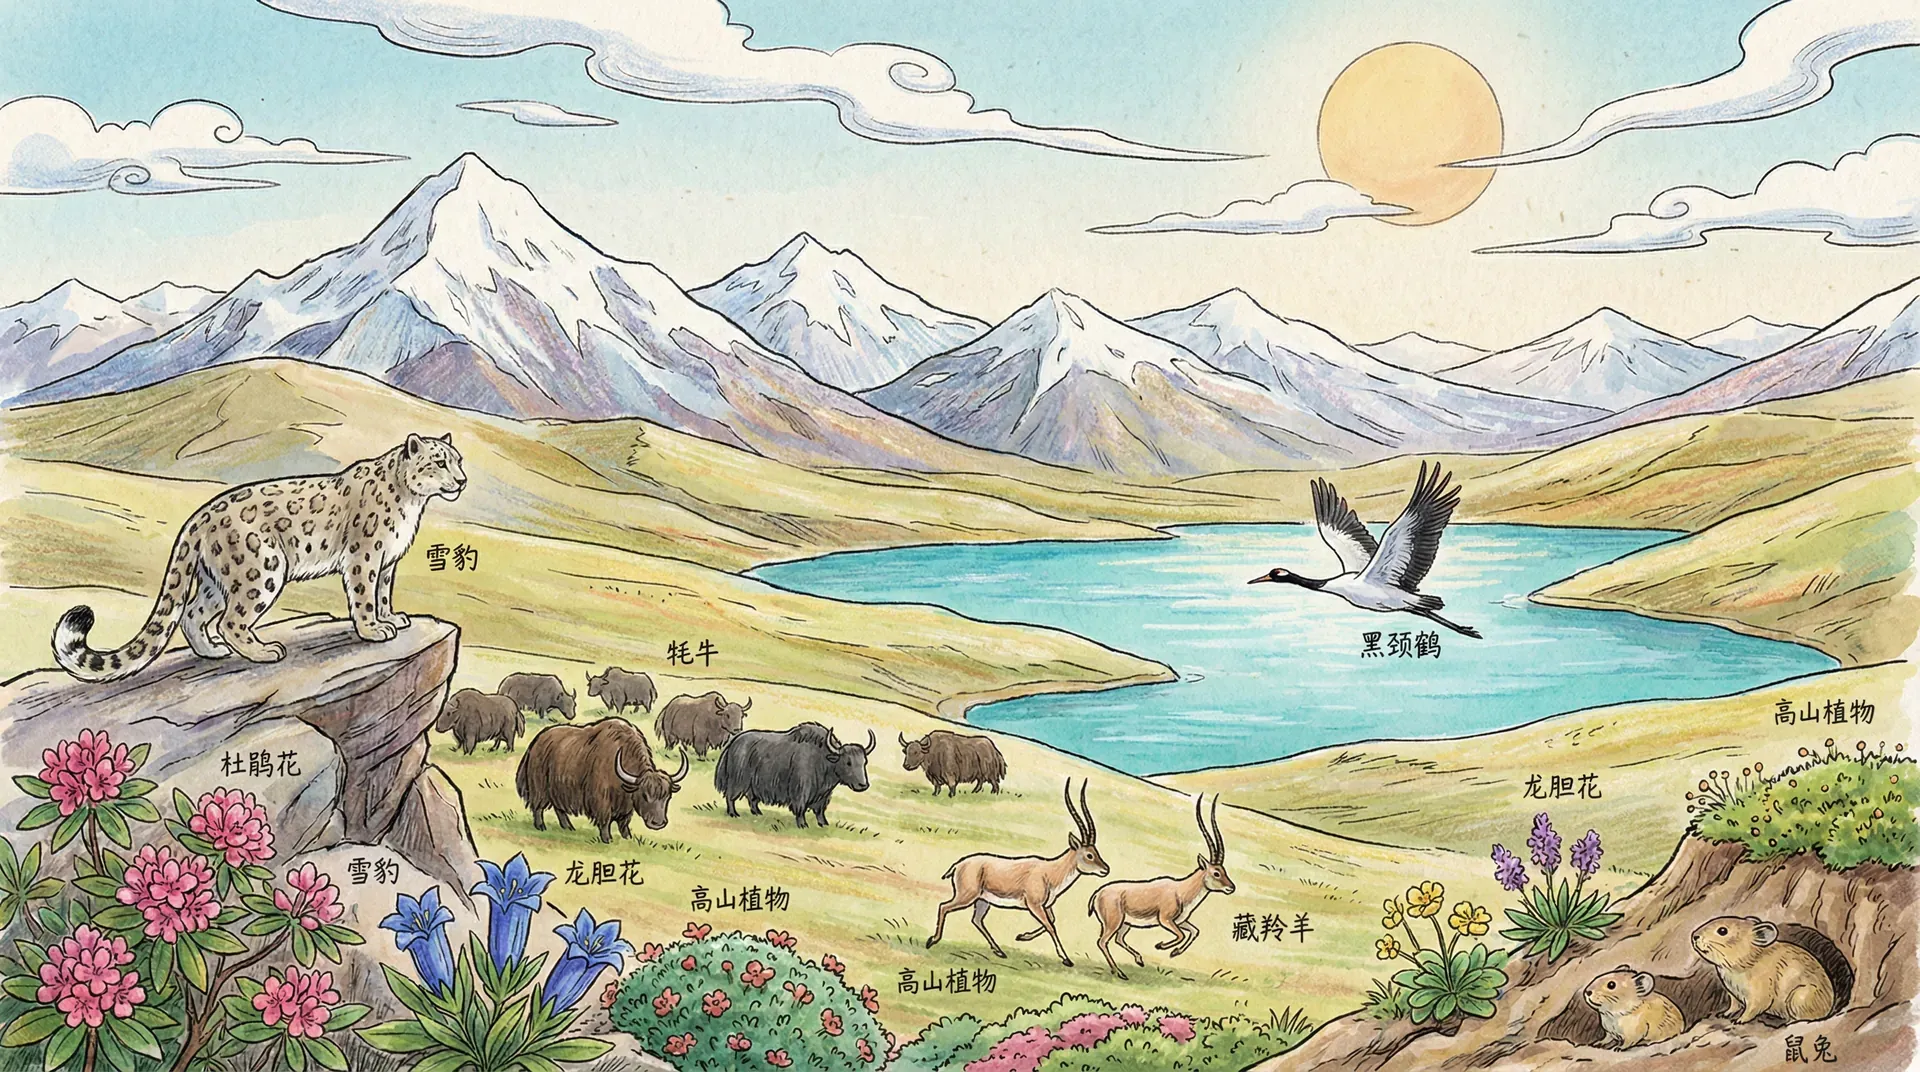
青藏高原的隆升是跨越数千万年、不同区域不同步的复杂过程,不能归结为约300万年前一次整体快速抬升。地形变化重塑了温度、降水和隔离格局,为研究物种分化提供重要背景,但某个类群的演化速率仍需独立测年和比较。
藏羚羊的高原适应革命:
藏羚羊的高原适应涉及缺氧感知、能量代谢、呼吸循环、体温调节和迁徙行为。不同高原动物对血红蛋白浓度和氧亲和力的调整并不相同,不能预设都通过提高血红蛋白完成。候选基因出现选择信号,只说明相关区域的变异频率偏离中性预期,还需要功能实验建立基因与性状之间的因果关系。
-
氧运输调节
血红蛋白浓度、氧亲和力和血流之间存在权衡,过高浓度会增加血液黏度,不同物种的适应方向并不相同。 -
呼吸与循环
通气、肺部交换面积、心输出量和微循环都可能参与低氧适应,不能只用“肺更大、心脏更强”概括。 -
缺氧信号通路
EPAS1等候选基因可显示选择信号,但具体变异的功能需要表达和生理实验确认。 -
保温与行为
毛被、体形、活动时间和迁徙共同影响热量收支,任何一项都不是单独出现的万能方案。 -
能量代谢
高原适应还涉及食物可得性和代谢底物利用,结论应来自跨海拔、跨季节比较。
在这一过程中,基因组检测显示,藏羚羊的耐高原、耐缺氧遗传位点(如HBB、EPAS1等)都发生了快速的扩散,体现出“突变—适应—定向选择”在短时间内完成进化的节奏。这些适应性特征的出现与青藏高原的地质剧变高度同步,成为“环境剧变—进化加速—新平衡”理论的重要实证。
藏马鸡、高原鼠兔和雪豹等类群都可用于研究高原适应,但它们的分化时间、基因流和生态位不同。地形变化可能促进隔离,也可能建立迁移通道;是否发生快速物种形成,必须针对每个谱系检验,不能笼统断言“大批物种在数万年内爆发”。
理论争议与科学证据
不同进化速度理论的对比
进化生物学对于进化节奏存在不同的理论流派,比如传统的“常速渐变论”、强调突变和爆发的“间断平衡论”,以及兼顾多速率变化的“变速进化论”等。这些理论不仅在全球范围有大量探讨,在中国丰富的地质遗迹和生物观测数据中,同样能够找到相应的证据与案例。
实际上,不同理论在中国的生物多样性研究中各有体现。例如,在高原动物的快速适应、高原隔离导致的新物种形成,以及部分地区生物长期稳定缓慢演化等实例,均为这些理论的发展提供了实证支撑和本土化注解。
这些理论往往并非绝对对立,而是在不同物种、不同生态压力、不同时间尺度和遗传层级上各有适用。中国繁复的生态与进化历史,为多种理论的比较研究提供了理想平台。
人工选择实验的启示
中国农业育种历史悠久,人工选择的实验对理解进化速度和模式至关重要。相比许多西方经典案例,中国丰富的农作物和家养动植物育种史是检验间断平衡论的宝库。
人工育种与自然物种形成需要区分:
杂交水稻利用遗传差异与杂种优势提高产量,为遗传重组、数量性状和强人工选择提供了案例。新品种在数代内发生明显性状变化,并不等同于产生新物种,也不能直接验证化石记录中的间断平衡。它更适合说明选择响应可快可慢,速度受遗传变异、育种目标和环境影响。
- 快速响应:强选择压力下,水稻产量、抗倒伏、抗病等性状在短短几代内显著提升,表现为阶段性跳跃式变化而非渐变。
- 阈值与突破:经过反复杂交优选,某一特定遗传组合达到“阈值”,性状发生明显分化,实现“突变”式提升。
- 新稳定期:突破后新品种表现出较强遗传稳定性,可以连续代次遗传,体现为“新平衡期”。
茶树的地方性分化:
中国多样的地貌和气候孕育出龙井、铁观音、普洱等极具地方特色的茶树品种。这种品种分化往往在若干十年或百年内发生,且性状分化阶段性强,具有鲜明的“间断性”特征。例如:
- 龙井茶只在杭州一带形成特有茶多酚比值、香味物质;
- 普洱则发展出耐高温、耐湿热的遗传特征;
- 铁观音发源于安溪,遗传多样性极高,展现出地方性多样化非常典型的“分步进化—稳定—再进化”分化模式。
这些快速变异和品种的固化,说明在人工和环境压力耦合作用下,生物性状的改变可以远比传统“渐变论”预期更快、更分阶段。
现代分子证据的佐证
分子数据可以估计谱系分化时间、种群大小变化和基因组不同区域的选择信号,但“分子钟”速率会因基因、谱系、世代时间和选择而异。所谓基因家族扩张也通常跨越较长时间,不能一概称为短期跃升。分子证据与化石模式需要在同一时间框架下比较。
注:不同理论和分子现象可在同一物种及其不同历史阶段交替或共同出现,为理解中国物种多样性和进化速度提供多维本土证据。
中国丰富的化石、地形与现生多样性为研究演化速率提供了材料,但不同案例支持的问题并不相同。化石序列可检验形态停滞,地理隔离可检验种群分化,人工选择展示选择响应,分子数据用于估计谱系历史;不能把它们全部直接算作间断平衡的证据。
误解与澄清
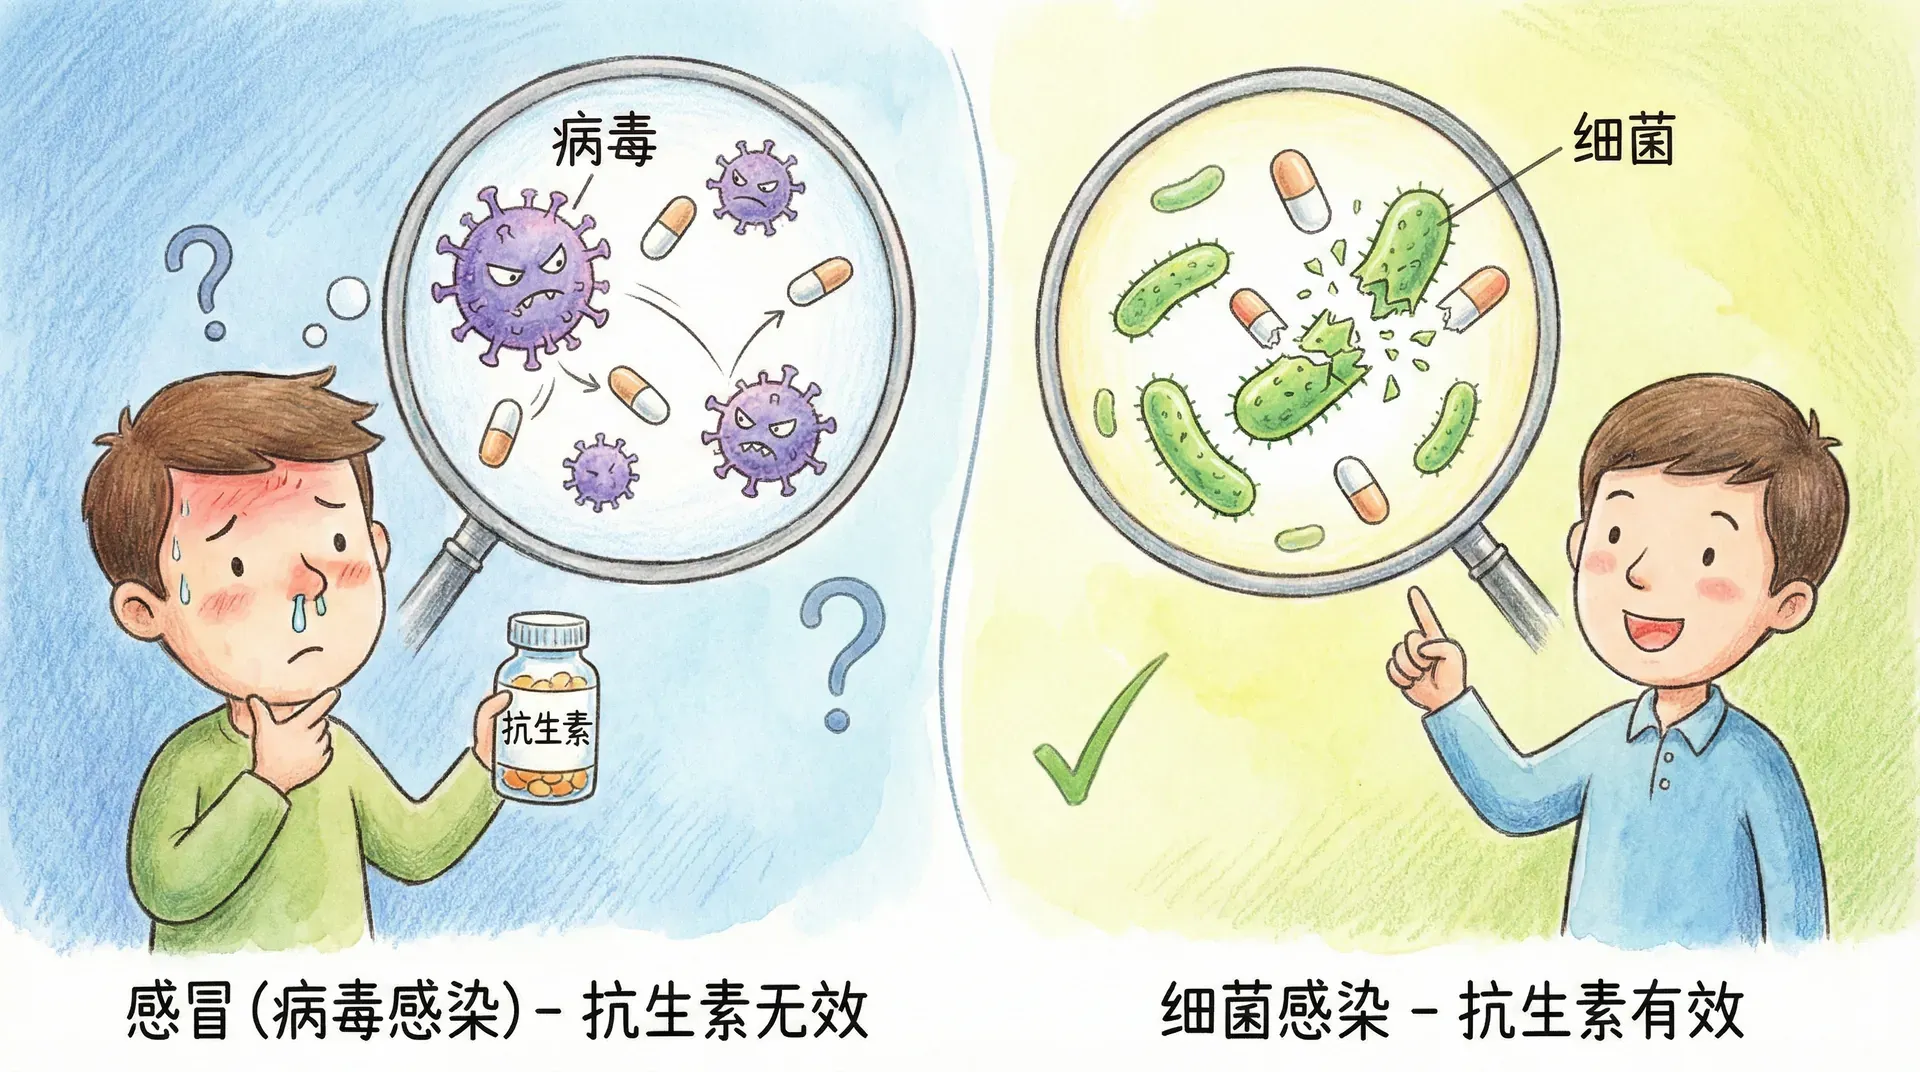
常见的误解
间断平衡论自提出后,常常在学术界与大众传播中被误解、简化甚至被神秘化。例如,有人将其错误视为完全否定达尔文的渐变进化,或以为只要观察到化石记录中的“断层”就是对该理论的直接支持。实际上,许多观点在流传过程中被夸大、割裂,使间断平衡被贴上了不准确的标签。
以下梳理了学界与社会中最常见的两大误区,并对其进行简要澄清,帮助读者厘清理论本意和真实应用范围:
其他常见误区:
- 间断平衡最初讨论化石物种中的形态停滞与物种形成;将它用于植物需要相应化石和物种概念,将它直接套到病毒短期适应则容易混淆时间尺度与研究对象。
- 较快的表型变化不等于突变率升高。它可能来自选择强度、种群结构、已有遗传变异或环境效应;不能断言主要来源必然是某一种机制。
科学争论的价值
间断平衡论的提出,一度在进化生物学界引发了长期、激烈甚至是带有个人色彩的学术争论。从70年代首次提出至今,关于物种形成速率、化石记录可信度、遗传机制解释、统计方法等方面,学界产生了丰富而细致的讨论。这种争论的过程深刻体现了科学发展的动力机制:
建设性的争论推动了理论创新和研究工具的进步:
- 促进了对化石记录时空分辨率的再思考,以及对“化石间断性”的多角度解释;
- 推动了进化速率的新数学模型发展,包括分支点过程、变速模型、计算流行遗传学的应用;
- 激发了跨学科合作,例如结合分子生物学与古生物学、统计物理方法等,从更细致的尺度检验和拓展理论边界;
- 鼓励了长时间尺度、高时间分辨率的实验设计,以及野外-实验室联合、纵向队列等多样化研究范式。
正因为有争论、质疑、补充,科学才不断迈向更真实和全面的理解。
总结
回到商队的类比,平均速度会掩盖停留与行进的差异;同样,演化速率也应在适当时间分辨率上测量。间断平衡提醒研究者认真对待形态停滞和与物种形成相关的变化,但具体谱系可能表现为持续渐变、间断变化或二者组合,不能把所有环境事件都当作跃迁按钮。
间断平衡自1972年提出后经历了持续讨论,促使古生物学家更明确地测量形态停滞、物种形成和采样偏差。它与种群遗传和系统学可以相互检验,但并没有取代渐变变化或自然选择理论。
生命历史没有固定的“停滞—爆发”循环。不同谱系可表现为长期稳定、持续渐变、与物种形成相关的较快变化或多种模式组合。间断平衡提供了一组可检验预测,结论必须来自具体地层与数据。
化石记录让研究者比较不同谱系在不同时间尺度上的变化速度。间断平衡的价值在于把长期形态停滞也视为需要解释的数据,并提醒人们把物种形成、地理分布与采样偏差纳入分析。它是一种可检验的演化模式,不是自然“积蓄智慧后突破”的哲学故事。