新陈代谢导论
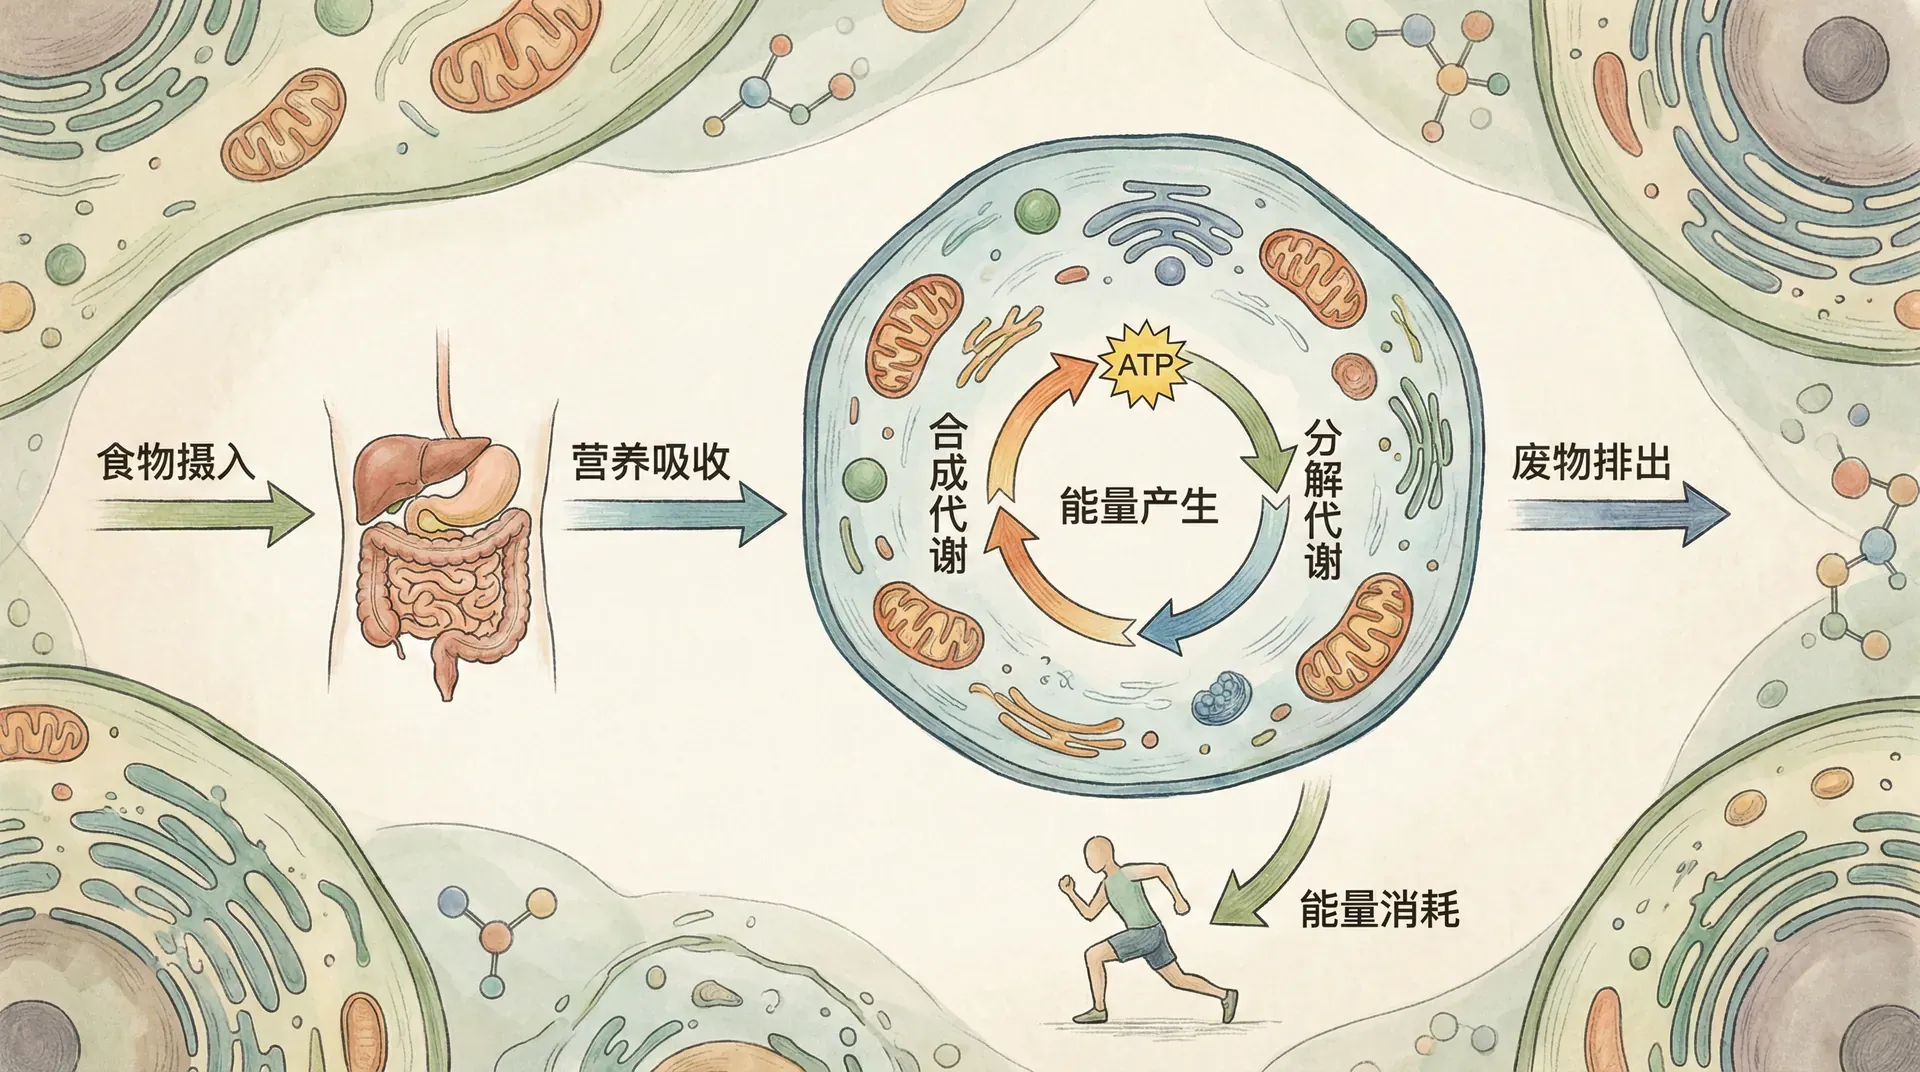
细胞内的化学反应彼此连接:食物分解产生的小分子可以继续氧化,也可以成为合成新物质的原料;一个组织产生的代谢物还可能进入血液,被其他组织利用。理解这些反应怎样衔接,比单独记住每条反应式更能说明细胞如何分配物质和能量。
细胞呼吸把有机物氧化释放的自由能转移到ATP等可直接参与细胞工作的形式,为主动运输、机械运动和物质合成等过程提供能量。
在东海和南海的夜晚,海浪常常闪闪发光,这种现象被称为“海火”。造成这种奇观的是一种叫做甲藻的单细胞海洋生物。甲藻能够将储存在有机分子中的能量转化为光能,这个过程叫做生物发光。大多数发光生物生活在海洋中,不过陆地上也有,比如夏夜里常见的萤火虫。
生物发光和其他代谢活动都依赖酶、底物与能量供给的协调。代谢研究关注物质怎样在反应网络中转化、自由能怎样改变,以及细胞如何根据营养和环境条件调节反应速率。
生物体的新陈代谢
生物体内发生的所有化学反应的总和被称为新陈代谢。新陈代谢不仅包括物质的合成和分解过程,还涉及能量的转化与利用,是细胞和生物体维持生命活动的基础。
代谢并不是彼此孤立的反应清单。反应的产物常是另一条途径的底物,酶活性又会受到能量状态、底物浓度和信号分子的调节。正是这种网络关系,使细胞能够在环境变化时重新分配物质和能量。
代谢途径的组织结构
我们可以将细胞的新陈代谢想象成一张复杂的道路网,包含数千种化学反应,排列成相互交叉的代谢途径。一条代谢途径从特定分子开始,经过一系列限定的步骤,产生特定的产物。途径中的每一步都由特定的酶催化:
葡萄糖(Glucose)是细胞呼吸的起点,是一种稳定的六碳糖分子,为代谢过程提供原材料。
在第一个关键步骤中,葡萄糖利用一个ATP分子的能量,被磷酸化生成6-磷酸葡萄糖(G6P)。这一变化使葡萄糖被“锁定”在细胞内部,无法通过细胞膜扩散出去。
接下来,6-磷酸葡萄糖在酶催化下异构化为6-磷酸果糖(F6P)。反应改变了羰基的位置,使分子更适合后续的磷酸化与裂解;只把它理解为环大小变化并不能概括反应的实质。
第二次磷酸化消耗另一个ATP,把F6P转化为1,6-二磷酸果糖(FBP)。这一步由磷酸果糖激酶催化,是糖酵解的重要调节点,也为六碳分子随后裂解为两个三碳分子做好准备。
最后,1-6-二磷酸果糖裂解成两个三碳化合物——最终将加工生成丙酮酸,为细胞后续的能量释放和利用打下基础。
调节这些酶的机制平衡着代谢的供给和需求,就像城市交通信号系统中的红、黄、绿灯控制车流一样。
新陈代谢管理着细胞的物质和能量资源。一些代谢途径通过分解复杂分子为简单化合物来释放能量,这些降解过程称为分解代谢途径。分解代谢的主要途径是细胞呼吸,其中葡萄糖和其他有机燃料在氧气存在下被分解为二氧化碳和水。
与之相对,合成代谢途径消耗能量来从简单分子构建复杂分子,有时称为生物合成途径。合成代谢的例子包括从简单分子合成氨基酸,以及从氨基酸合成蛋白质。
分解代谢和合成代谢是代谢景观中的“下坡”和“上坡”路径。分解代谢“下坡”反应释放的能量可以储存起来,然后用于驱动合成代谢的“上坡”反应。
能量转换定律

研究物质集合中发生的能量转换的学科称为热力学。热力学关注能量在不同物质系统之间的转移与变化,以及这些能量转换带来的后果。科学家通常用“系统”一词表示所研究的特定物质(比如一个化学反应容器或一个细胞),用“环境”来表示系统之外的宇宙其他部分。系统和环境之间的关系可以根据能量和物质的交换分为不同类型。
生物体被视为开放系统。与封闭系统或孤立系统不同,开放系统能够与环境之间不断地交换能量和物质。例如,生物体能够吸收能量(如太阳光能,或者食物中有机分子的化学能),同时将生成的热量以及代谢废物(如二氧化碳、水等)释放到环境中。细胞和生物体之所以能够维持生命活动,正是依靠这种持续的能量流动和物质交换。
热力学第一定律
根据热力学第一定律,宇宙的能量是恒定的:能量可以转移和转换,但不能创造或销毁。第一定律也被称为能量守恒定律。
就像国家电网不制造能量,只是将能量转换为便于我们使用的形式。植物通过将阳光转化为化学能,充当能量转换器,而不是能量生产者。
例如,大熊猫将食物中有机分子的化学能转换为动能和其他形式的能量来进行生物活动。这些能量在执行工作后会发生什么?热力学第二定律帮助我们回答这个问题。
热力学第二定律
如果能量不能被销毁,为什么生物体不能简单地循环利用它们的能量?事实上,在每次能量转移或转换中,一些能量变得不可用于做功。在大多数能量转换中,可用形式的能量至少部分转换为热能并以热的形式释放。
在进行各种工作的化学反应过程中,活细胞不可避免地将其他形式的能量转换为热。系统只有在存在温度差异,导致热能从较热位置流向较冷位置时,才能利用这种能量做功。如果温度均匀(如在活细胞中),化学反应产生的热量只会加热物质,比如使生物体升温。
能量转换会受到方向性的限制。熵常被通俗描述为“无序程度”,更准确地说,它与能量在微观状态中的分散方式有关。判断一个过程能否自发进行,需要同时考虑系统与环境的总熵变化。
热力学第二定律指出,自发过程使系统与环境的总熵增加。局部结构可以变得更有序,但这种变化必须与能量输入和环境中更大的熵增加相伴。
生物有序与无序
生物系统增加其环境的熵,正如热力学定律所预测的。细胞确实从较少组织化的起始材料创造有序结构。例如,简单分子被组织成氨基酸的更复杂结构,氨基酸被组织成多肽链。
生物体建立和维持有序结构并不违反第二定律。细胞是开放系统,在获得能量和物质的同时向环境释放热和代谢产物;只要系统与环境的总熵增加,细胞内部就可以保持或增加局部有序。
自由能变化
热力学定律适用于整个宇宙。作为生物学家,我们想了解生命的化学反应——例如,哪些反应自发发生,哪些需要来自外部的能量输入。
自由能变化 ΔG
在恒温、恒压条件下,吉布斯自由能变化可以用来判断过程的热力学方向。它把焓变与熵变联系起来,回答的是反应在给定条件下是否具有自发进行的趋势,而不是反应实际上会进行得多快。
自由能变化ΔG可以用以下方程计算:
其中:
- ΔH表示系统的焓变
- ΔS是系统熵的变化
- T是绝对温度(开尔文单位)
在给定温度、压力和组成下,ΔG<0表示过程具有自发进行的热力学趋势,ΔG>0表示正向过程需要与其他放能过程偶联;ΔG=0表示系统处于平衡。即使ΔG<0,反应也可能因活化能较高而非常缓慢,酶能改变速率,却不改变反应的ΔG。
放能反应和吸能反应
基于自由能变化,化学反应可以分为放能("能量向外")或吸能("能量向内")。放能反应伴随净自由能释放进行,因为化学混合物失去自由能(G减少),所以放能反应的ΔG为负值。
我们可以用细胞呼吸的总反应作为例子:
这个数值描述标准条件下总反应的自由能变化。活细胞中的温度、浓度和分压并不等同于标准条件,而且自由能是通过许多反应逐步转移的,其中只有一部分被捕获用于合成ATP和完成细胞工作。
吸能反应的ΔG为正,正向反应本身不具有自发趋势。细胞通常把它与ATP水解、离子顺梯度移动或其他放能过程偶联;只要各过程的ΔG之和为负,整体过程就能在热力学上向前进行。
新陈代谢与平衡
封闭反应体系达到平衡后,正反应与逆反应速率相等,不再产生可利用的净变化。活细胞通过持续摄取营养、排出产物并把反应分隔在不同区室,使许多代谢过程维持远离平衡的稳态;稳态中的浓度可以相对稳定,但物质仍在不断流动。
ATP
细胞进行三种主要工作:化学工作(推动不会自发发生的吸能反应)、运输工作(将物质逆着自发运动方向泵送跨膜)、机械工作(如纤毛摆动、肌肉细胞收缩)。
细胞管理能量资源来完成这些工作的关键特征是能量偶联,即利用放能过程驱动吸能过程。ATP负责介导细胞中的大多数能量偶联,在大多数情况下作为为细胞工作提供能量的直接来源。
ATP的结构和水解
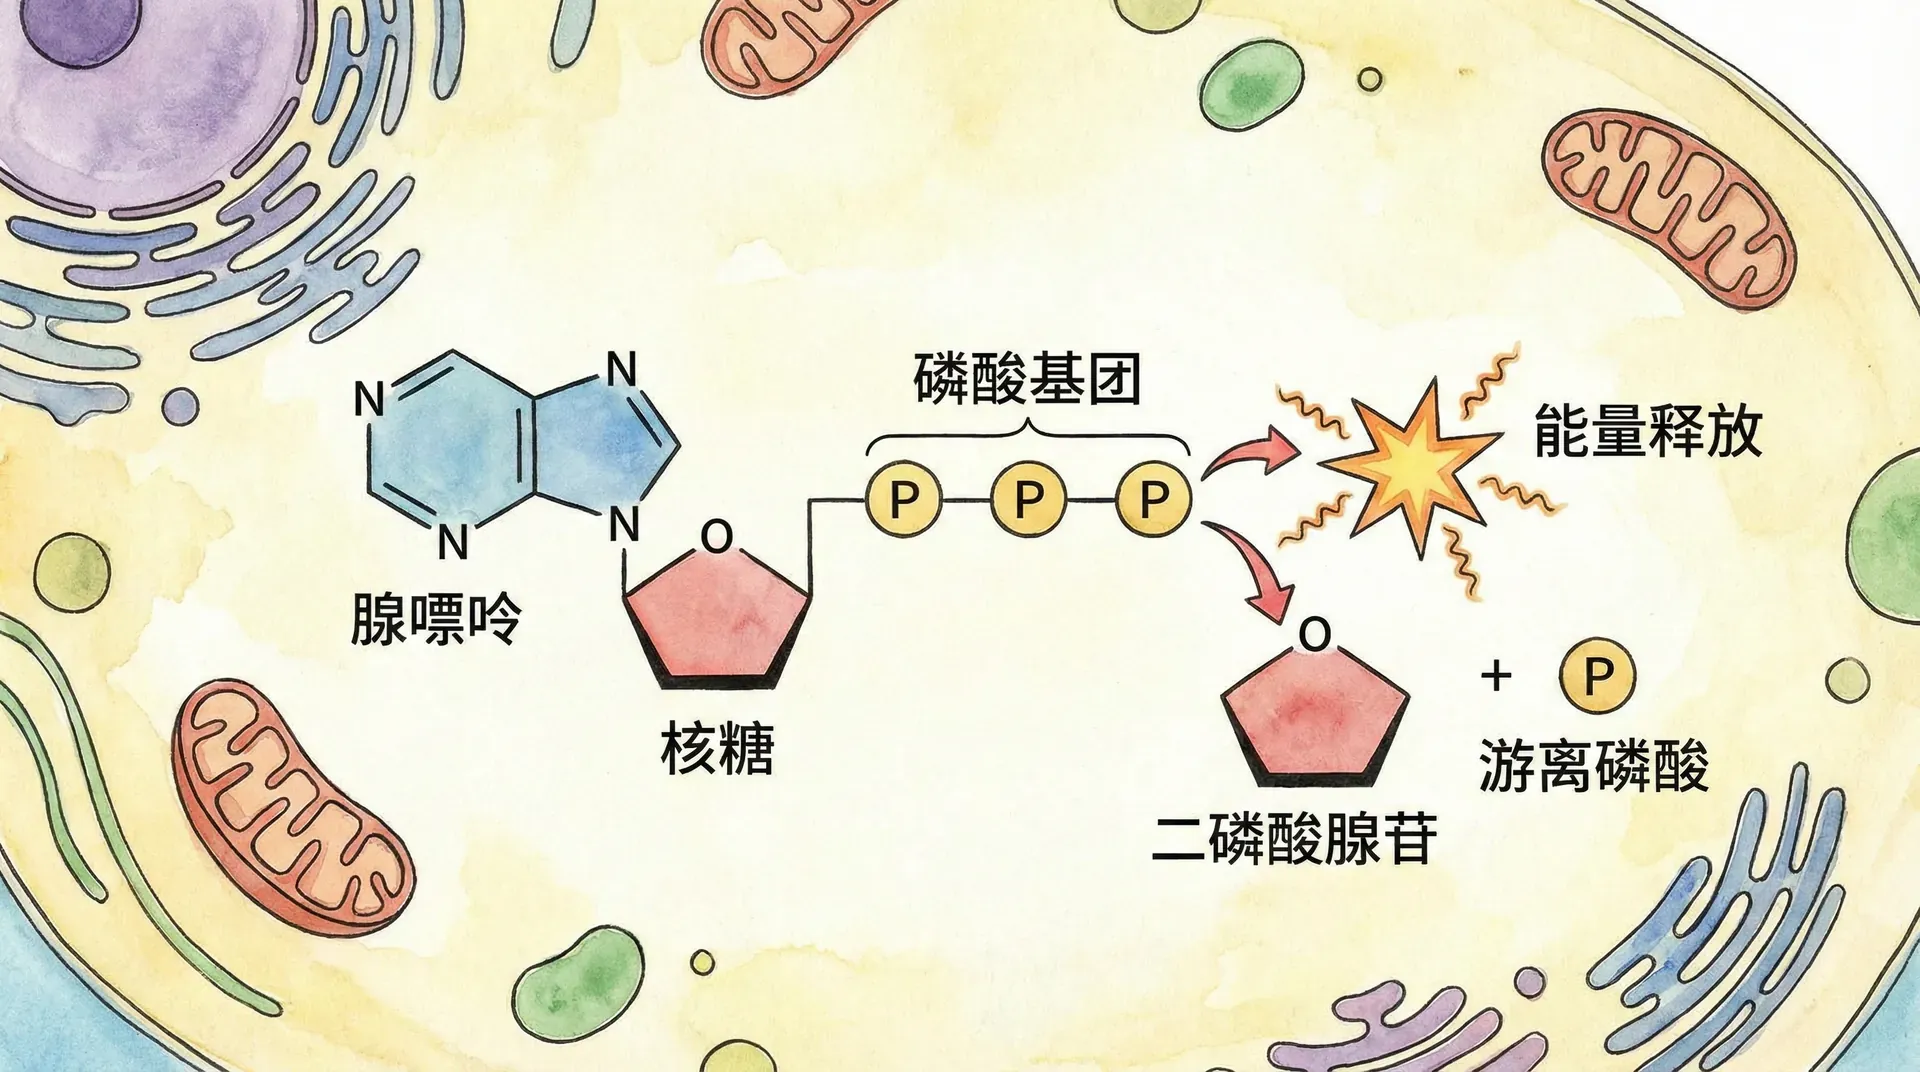
ATP(三磷酸腺苷)含有糖类核糖,连接着含氮碱基腺嘌呤和由三个磷酸基团组成的三磷酸基团。
ATP水解之所以总体放能,并不是“断键本身释放能量”,而是因为断键需要的能量小于形成新键及产物稳定化带来的能量收益。电荷排斥减弱、无机磷酸共振稳定和产物水合等因素共同降低了产物的自由能。
ATP水解时生成ADP和无机磷酸。下面的ΔG数值对应生化标准状态;细胞内的实际ΔG还会随ATP、ADP、无机磷酸以及其他条件的变化而改变:
ATP水解如何执行工作
在试管中,ATP水解释放的自由能仅仅加热周围的水。在生物体中,这种产热有时是有益的。例如,颤抖过程利用肌肉收缩中的ATP水解来温暖身体。
然而,细胞的蛋白质以几种方式利用ATP水解释放的能量来执行三种类型的细胞工作。细胞能够利用ATP水解释放的能量直接驱动本身是吸能的化学反应。如果吸能反应的ΔG小于ATP水解释放的能量,则两个反应可以偶联,使得总体上偶联反应是放能的。
许多主动运输和机械工作由ATP水解直接驱动,另一些则利用ATP先建立的离子梯度,或使用其他核苷三磷酸和电化学势。例如,细菌鞭毛可以由跨膜离子梯度驱动。能量输入通常通过改变蛋白质构象和结合状态完成做功。
ATP的再生
生物体连续使用ATP,但ATP是可以通过向ADP添加磷酸来再生的可再生资源。无机磷酸和能量的这种穿梭称为ATP循环,它将细胞的产能(放能)过程与耗能(吸能)过程偶联。
ATP在细胞中不断水解和再生,周转速度会随细胞类型和活动状态变化。剧烈收缩的肌细胞用能速度远高于静息状态,因此不能用一个固定的“每个细胞每秒”数值概括所有细胞。
由ADP和无机磷酸合成ATP在相同条件下具有正的自由能变化,需要与细胞呼吸中的氧化过程或光合作用中的能量转换相偶联:
分解代谢(放能)途径,特别是细胞呼吸,为ATP的吸能形成过程提供能量。植物也利用光能产生ATP。
酶活性调节
如果细胞内所有代谢途径在同一时间、同一地点不加选择地同时进行,会造成资源浪费、能量紊乱,甚至危及生命活动的稳定性。因此,细胞通过精细调控代谢途径,有条不紊地安排各类化学反应的进行。
这种调节依赖于对各种酶活性的严格控制。细胞可以根据自身状态及外界环境变化,决定哪些酶在何时何地发挥功能,确保细胞内的代谢活动协调、有效地进行,维持内部环境的平衡。
酶的变构调节
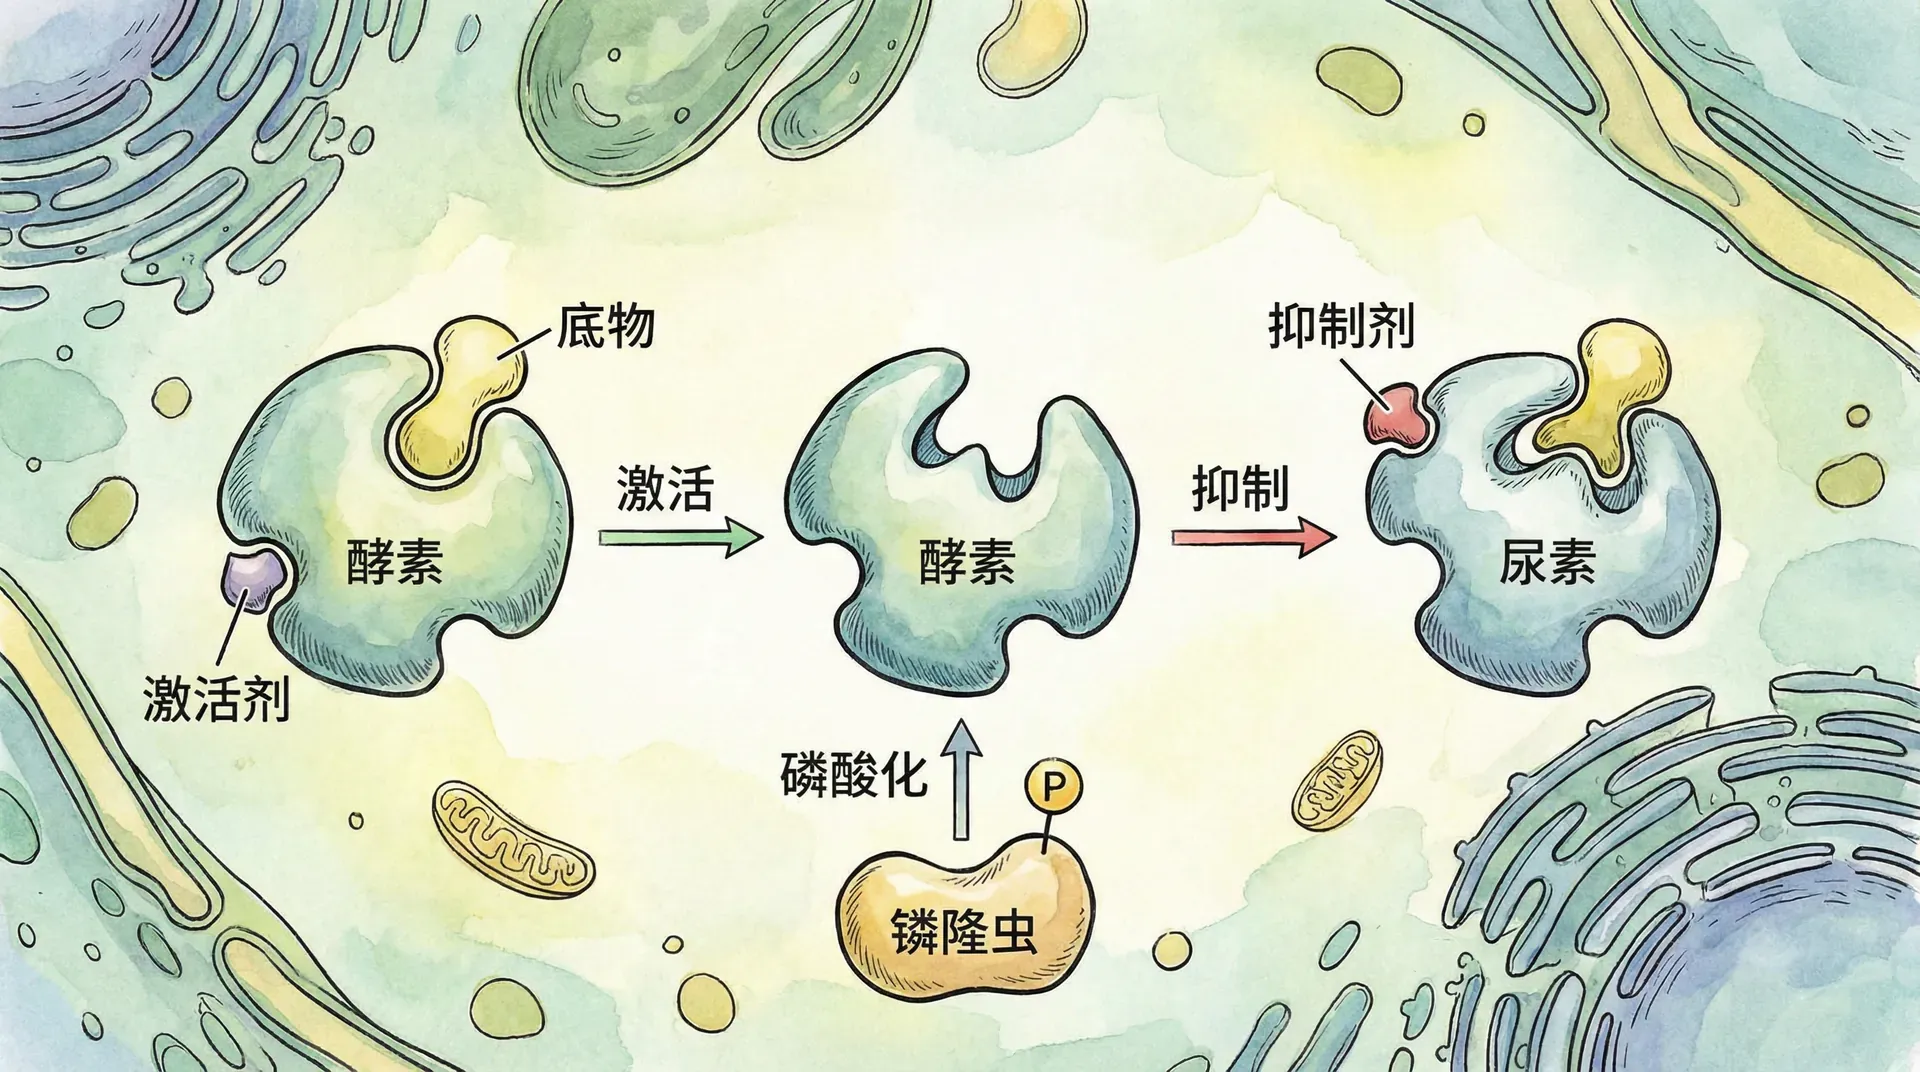
变构调节分子结合在活性位点之外的位点,引起蛋白质构象或构象分布改变,进而影响底物结合或催化步骤。变构抑制与经典非竞争性抑制并不完全等同,其动力学表现取决于酶的结构和调节机制。
变构调节(Allosteric regulation)是指调节分子通过结合到蛋白质(如酶)的非活性位点,改变酶的构象,从而影响其催化活性。其主要特点包括:调节分子可以是激活剂,也可以是抑制剂。
- 调节方式分为两类:
- 激活剂:结合后,稳定酶的活性构象,增强酶结合底物并催化反应的效率。
- 抑制剂:结合后,使酶的活性位点结构不适合底物结合,从而降低催化活性。
这种调节可以导致酶活性的抑制或增强,使细胞根据需要灵活控制代谢反应速度。
变构调节在多聚酶(即包含多个亚基的酶)中尤为常见。例如,酶的不同亚基可以相互影响,一旦某一亚基结合了调节分子,其他亚基的活性也会随之改变。许多关键的代谢途径酶,如磷酸果糖激酶(PFK)和天冬氨酸转氨酶,都受到变构效应的调节,从而保证细胞代谢灵活而高效地运行。
反馈抑制
反馈抑制是常见的代谢调节方式:途径末端产物积累后,抑制较早步骤中的关键酶,使合成通量下降。它通常是可逆的速率调节,并不意味着整条途径被永久“停止”。
一些细胞用这个五步途径从苏氨酸(另一种氨基酸)合成氨基酸异亮氨酸。当异亮氨酸积累时,它通过变构抑制途径第一步的酶来减慢自身合成。因此,反馈抑制防止细胞制造超过必需的异亮氨酸,从而避免浪费化学资源。
细胞内酶的定位
细胞不只是一袋化学物质,其中数千种不同的酶和底物随机混合。细胞是分室化的,细胞结构有助于使代谢途径有序化。
在某些情况下,代谢途径几个步骤的酶团队被组装成多酶复合体。这种排列促进反应序列,第一个酶的产物成为复合体中相邻酶的底物,依此类推,直到释放终产物。
一些酶和酶复合体在细胞内有固定位置,充当特定膜的结构组件。其他酶在特定膜包围的真核细胞器内的溶液中,每个细胞器都有自己的内部化学环境。因此,新陈代谢概念将继续在我们理解生命过程中发挥重要作用,特别是在学习细胞呼吸这一主要分解途径时,它分解有机分子并释放可用于生命关键过程的能量。