生物扩散与休眠的进化
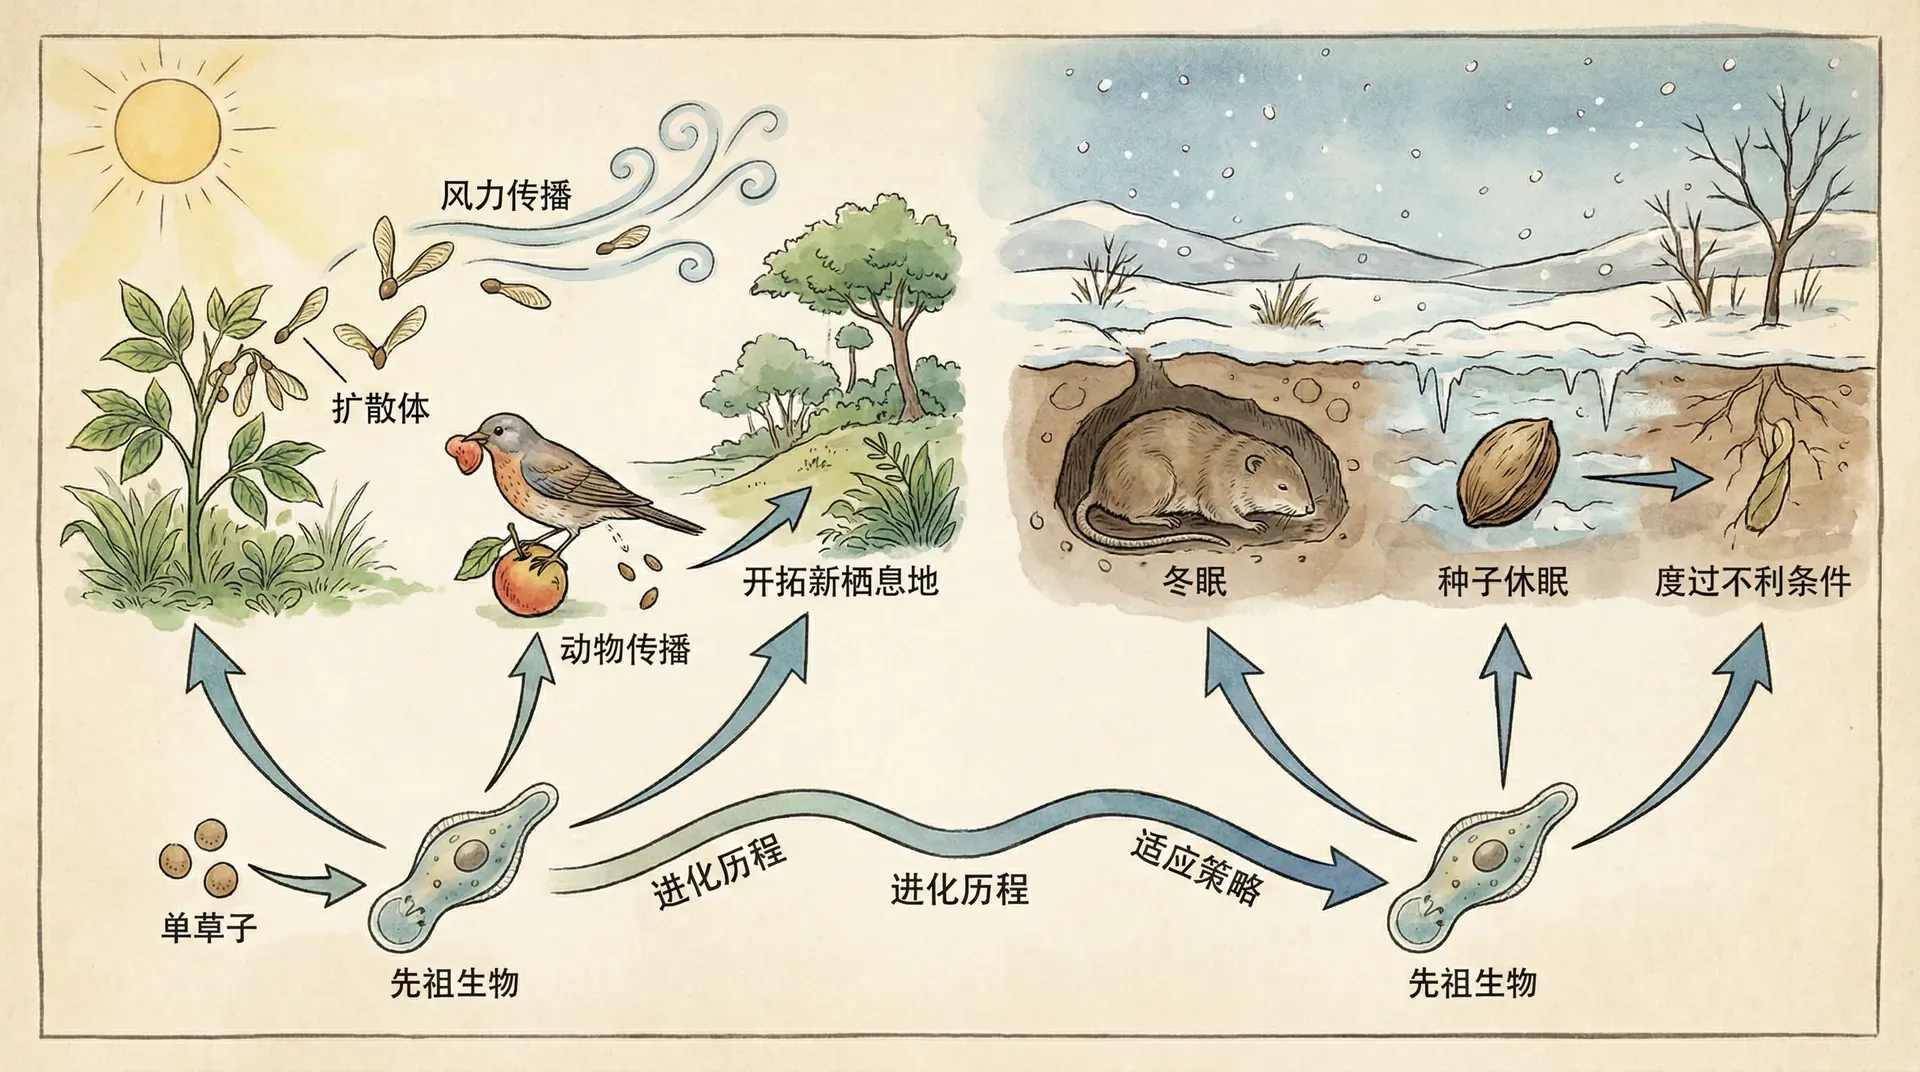
扩散把个体或繁殖体带到新的地点,休眠则把萌发或活动推迟到未来。两者都可能分散局部环境恶化的风险,也都要付出代价:扩散可能死亡或落入差生境,休眠会延迟繁殖并面临储存期死亡。研究重点不是哪种方式更“聪明”,而是不同条件怎样改变成本与收益。
表面上,迁徙和休眠是两种完全不同的生命现象,一个选择“走出去”,一个选择“留得住”。实质上,它们的共同点在于都避免了“把所有希望押在一个时空”,从而增加了物种持续繁衍的机会。不同生物甚至在同一物种内,也常结合使用这些策略,比如鱼类产下可耐干旱的卵,真菌孢子随风扩散。
扩散与休眠的频率会受环境时空变异、亲缘竞争、种群密度和生理约束影响。只有性状存在可遗传差异,并造成存活或繁殖差异时,种群才可能发生相应演化。
“风险分散”还需要满足一个关键条件:不同地点或不同年份的环境不能完全同步。如果所有斑块同时遭遇同样灾害,空间扩散帮助有限;如果连续多年都同样不利,短期休眠也难以降低风险。研究者会估计环境相关性,再判断扩散或休眠是否真的减少后代成功的方差。
扩散行为的进化难题
20世纪60年代,温-爱德华兹曾用群体利益解释动物扩散。这个历史案例适合训练层级选择思维:某行为即使有利于种群延续,也必须说明携带该行为的个体或其亲缘者为何不会被不扩散的变异取代。
如果整个种群都遵循“为集体牺牲”的策略,那么一个“投机者”突然出现了——它不参与扩散,只享受别人扩散带来的好处。这个投机者的生存率更高,后代也更多。经过几代繁衍,投机者的基因会迅速扩散,最终取代那些“无私”的个体。这就是为什么单纯的群体选择理论站不住脚。
自然选择不会主动寻找“对个体”或“对群体”最好的方案。应先明确适合度在什么层级测量,再检验个体收益、亲缘间接收益和群体差异各有多大;不同层级的选择方向可能一致,也可能冲突。
进化稳定策略的诞生
进化稳定策略是一个模型概念:当大多数个体采用某策略时,罕见替代策略是否能获得更高适合度。它的结论取决于斑块数、竞争方式、迁移死亡率和亲缘结构等假设,不能脱离模型直接当成自然界的固定扩散率。
1977年,汉密尔顿和梅提出了一个简洁而强大的数学模型。他们设想一个简化的世界:环境由许多相同的栖息地斑块组成,每个斑块住着一个成年个体。每年,成年个体死亡,它们的后代竞争这些空出的斑块。一部分后代选择扩散到其他斑块,另一部分留在原地。
在汉密尔顿—梅模型的特定假设下,扩散率可写成关于扩散存活率的函数。公式展示了亲缘竞争如何使有风险的扩散仍能保留;它不是适用于所有物种的经验定律,参数变化或加入斑块质量差异后,预测也会改变。
为什么会这样?关键在于亲缘竞争。留在原地的后代会和自己的兄弟姐妹竞争,它们携带相同的基因。而扩散的后代虽然面临死亡风险,但一旦成功,就能占领新的斑块,与非亲缘个体竞争。从基因传递的角度看,让一部分后代扩散,实际上是一种明智的"投资组合"策略。
以下是扩散率与存活率的关系:
在该模型的特定条件下,决定“最佳扩散率”的因素,往往在不同层次出现分歧:单个个体实现最大化存活概率的扩散策略,可能与整个种群长期持续存在所需的扩散率并不一致。个体更倾向于在短期、局部条件下调整行为,而种群维持则要顾及遗传多样性和异地风险,因此二者所面对的选择压力是不同的。
现实生态系统更加复杂。要真正解释或预测某类生物在野外展现出的扩散率,我们还必须综合考虑斑块质量的差异、种群密度的限制效应,以及实际的迁徙路线和障碍。这些生态与空间的约束条件,决定了理论与观察之间可能的偏差方向:比如,高质量生境或迁移障碍较多时,观察到的扩散率往往会低于理想模型的预期;而在斑块异质性较少、连通度高的环境中,种群更可能展现出接近模型推导的扩散水平。
环境变化
时间的不确定性
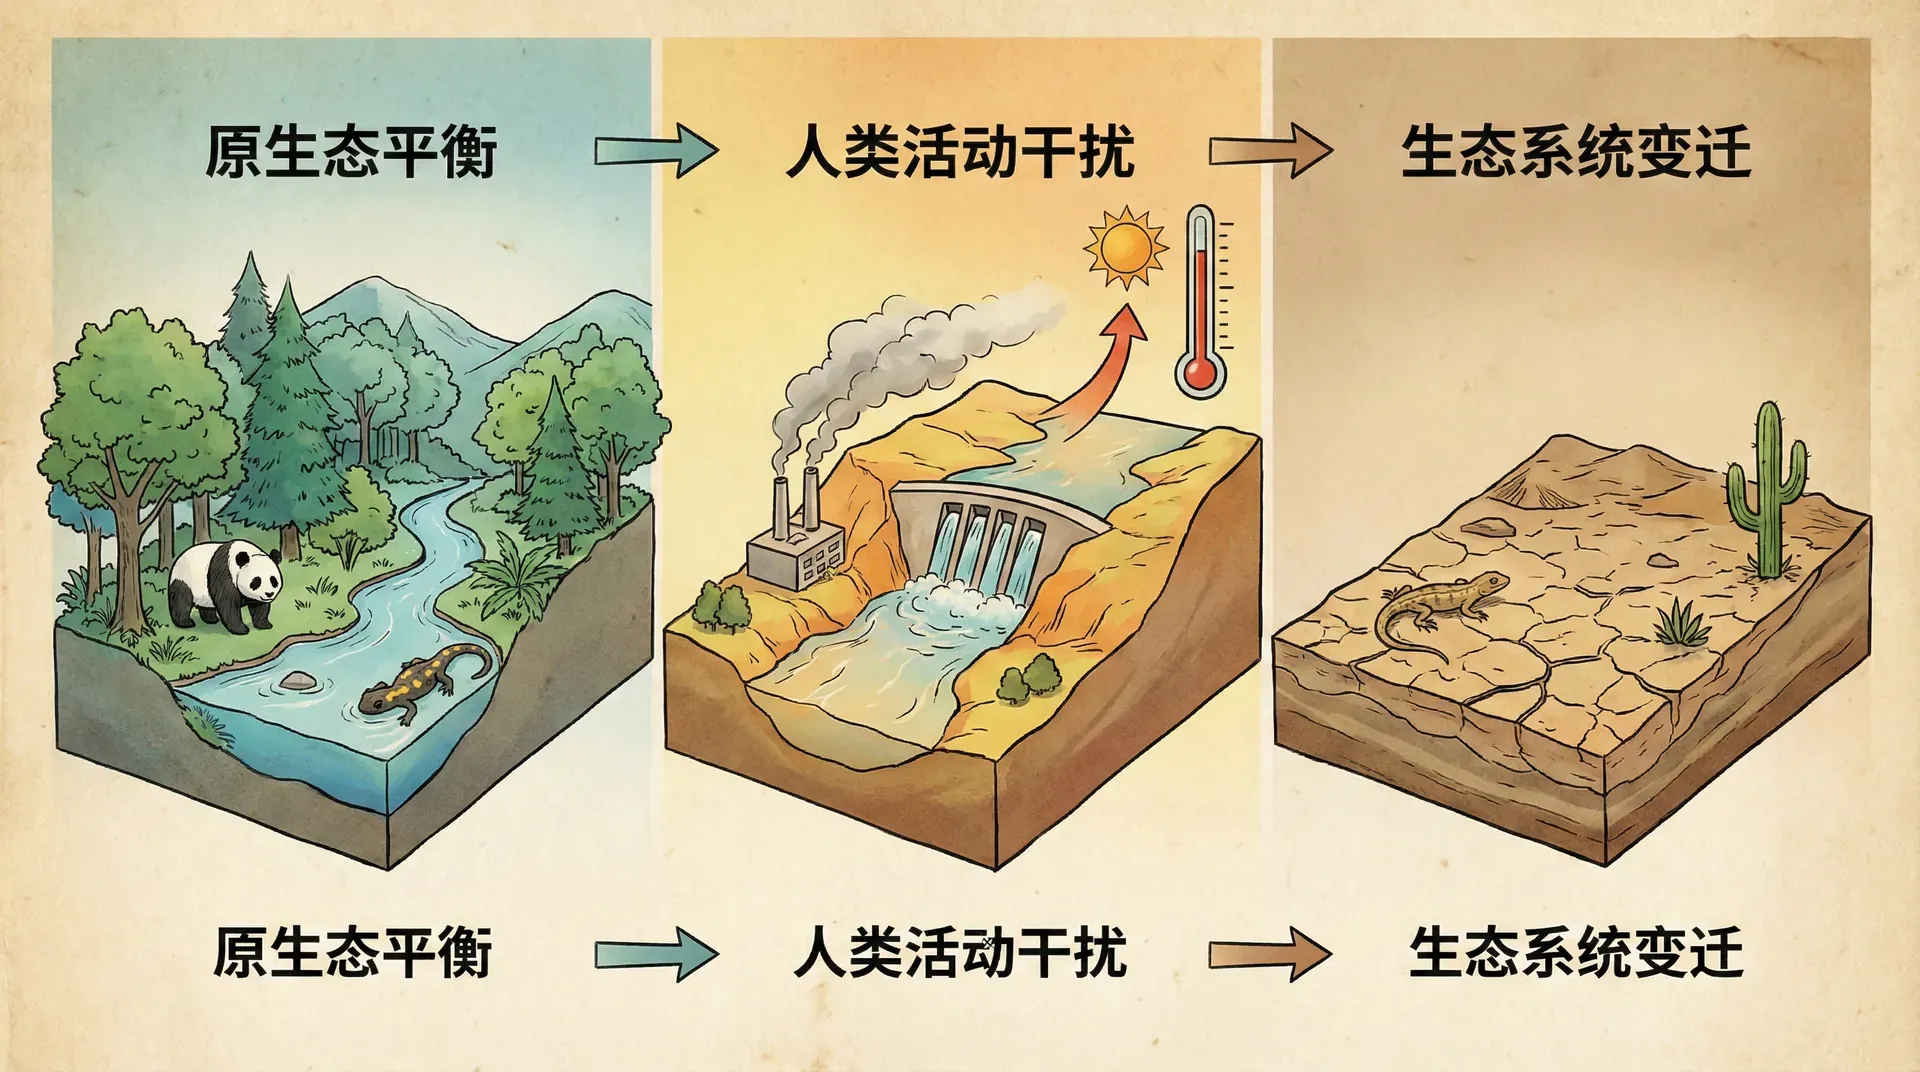
如果环境是恒定的,今年适合生存的地方明年依然适合,那么扩散的意义就大打折扣。但现实世界充满变化。一个今年风调雨顺的草原,明年可能因干旱变得不适宜生存;一棵今年结实累累的树,明年可能遭遇病虫害。
时间上的变化促进了扩散行为的进化。这就像投资理财中的“不要把鸡蛋放在一个篮子里”。把后代分散到不同的地方,就是在对冲环境波动的风险。即使父母所在的栖息地今年条件很好,也不能保证明年依然如此。
不同类型的时间变异及其对扩散行为的影响:
内蒙古草原上的东亚飞蝗就是典型例子。在降雨充足的年份,草原植被茂盛,蝗虫密度较低,大多数个体翅膀较短,不太飞行。但一旦遭遇干旱,植被稀疏,蝗虫密度激增,新一代蝗虫就会发育出长翅膀,形成蝗群迁飞。这种可塑性正是对环境时间变异的适应。
云南的部分竹种会在几十年后集体开花死亡,这让依赖竹林的动物(如大熊猫)必须迁移到其他竹林。这种现象被称为“扬森-康奈尔假说”:父母周围积累的天敌和病原体,使得原地对后代不再适宜,从而强烈选择扩散行为。
空间的异质性
与时间变异相反,空间上的差异往往抑制扩散。如果栖息地之间质量差异很大,那么待在好地方的个体如果扩散,更可能落到质量较差的地方,得不偿失。
中国海岛上的生物为这个理论提供了有力证据。舟山群岛、南海诸岛上的许多鸟类和昆虫,相比大陆同类,飞行能力明显退化。比如,台湾岛上有多种特有的无翅昆虫,它们的大陆近缘种都具有完整的翅膀。原因很简单:在岛屿上,飞行能力强的个体更容易被风吹到海里,留下来的都是那些飞不动或者不爱飞的。经过无数代选择,岛屿物种的扩散能力就这样退化了。
青藏高原的特有物种也呈现类似模式。高原环境相对稳定,但被周围的低海拔地区“包围”。对高原物种来说,向外扩散意味着进入低海拔的不适宜环境。长期下来,许多高原特有种的扩散能力都比较弱。
下方对比了不同栖息地类型中物种的扩散倾向:
我们可以看到,临时性强、变化快的栖息地(如农田)中的物种更倾向于发展强扩散能力,而稳定、孤立的栖息地(如海岛、洞穴)中的物种扩散能力普遍较弱。
性别与扩散
在许多哺乳动物中,雄性比雌性更爱“离家出走”。这是为什么?答案与交配制度有关。
在一夫多妻制的物种中,雄性之间为了交配权展开激烈竞争,而雌性主要竞争食物等资源。如果雄性留在出生地,就会与自己的兄弟争夺交配机会,这种竞争尤其激烈,因为它们携带相似的基因。而扩散到新地方,虽然仍要竞争,但对手是非亲缘个体,从基因传递角度更有利。同时,雄性扩散降低了近亲繁殖的风险,让留守的雌性受益。
但在一夫一妻制且雄性需要占据领地资源才能吸引配偶的物种中,情况可能逆转。此时雌性之间对资源的竞争可能更激烈,反而是雌性更倾向于扩散。
性别偏向扩散可由交配制度、资源竞争、近交回避和亲代照料共同影响。不同类群甚至同一物种的不同种群都可能出现相反模式,因此表格应当作为提出预测的框架,再用标记追踪或遗传数据检验。
来自野外的证据
昆虫的飞行能力
理论预测是一回事,自然界的真实情况又是另一回事。那么,野外观察支持这些理论吗?
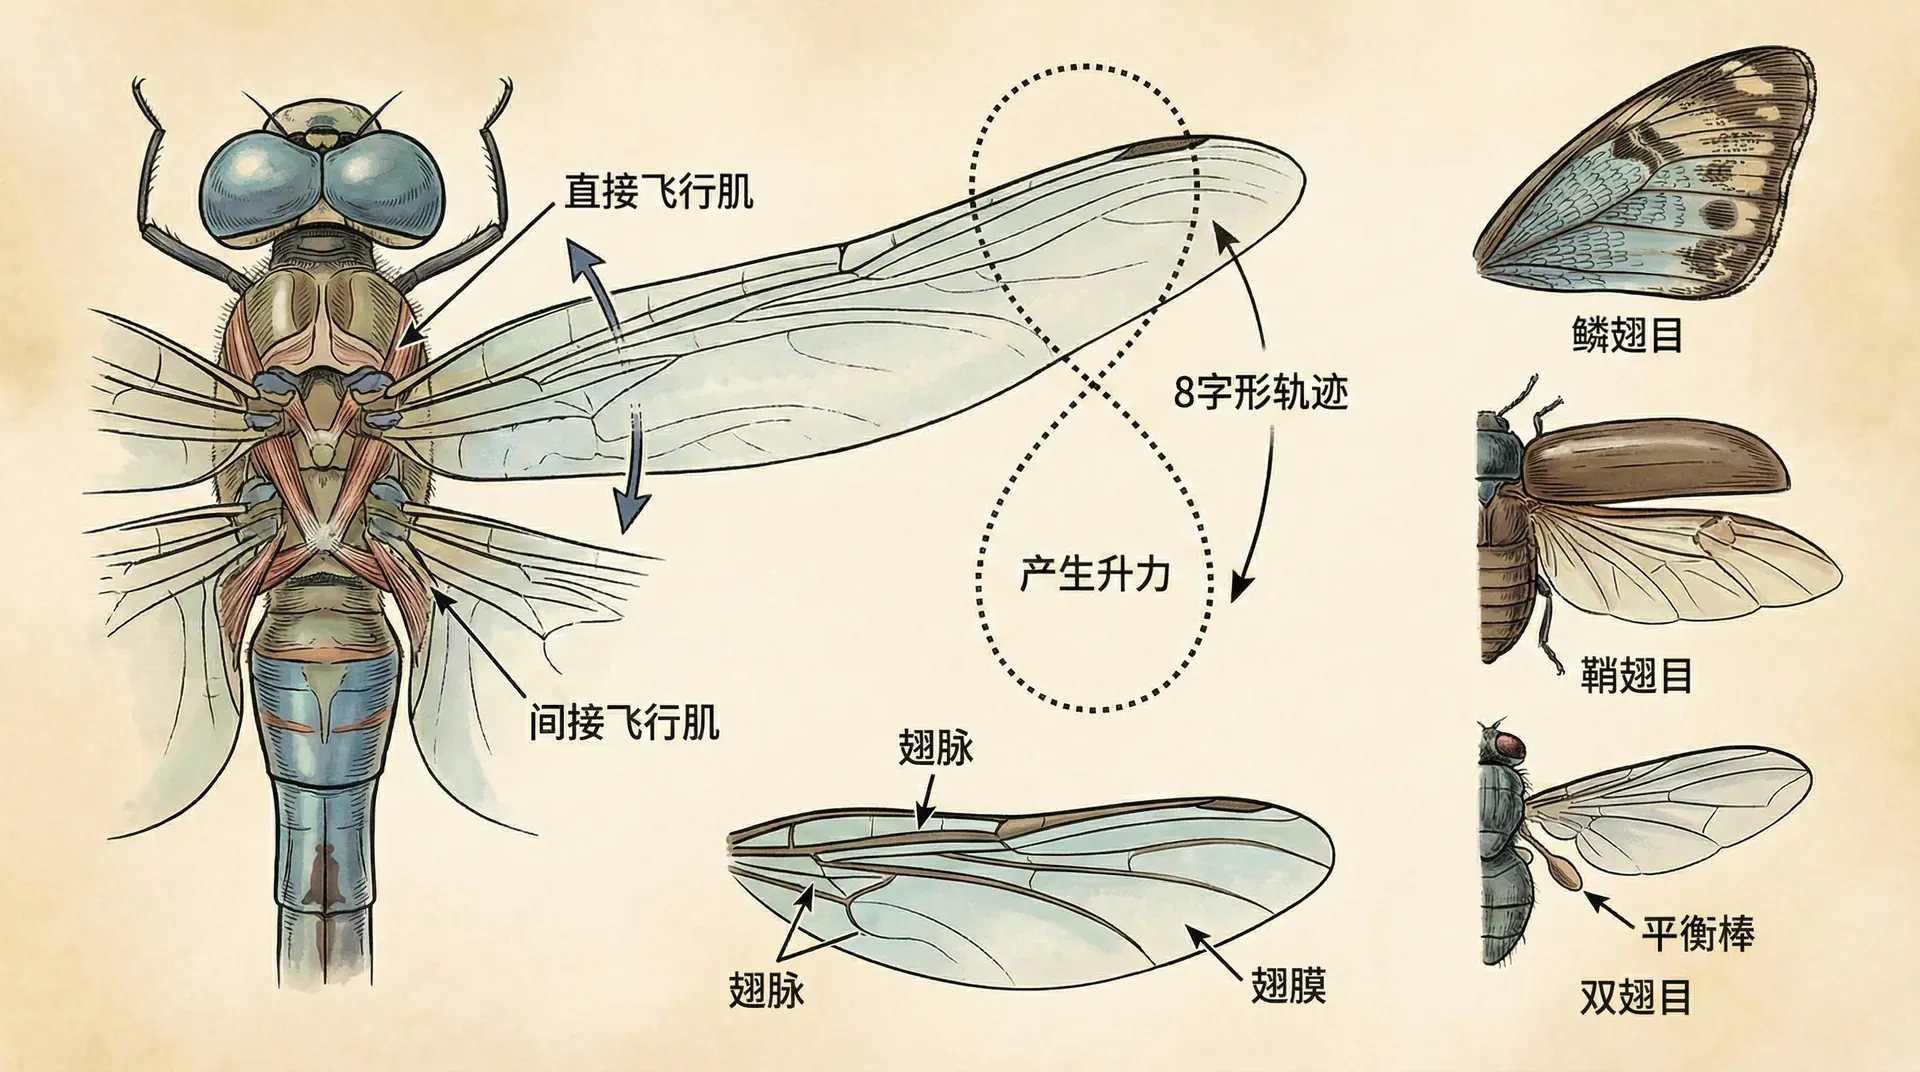
临时性农田中的飞虱和叶蝉常具有长翅、短翅或翅型可塑性,这适合检验生境持续时间与扩散的关系。具体物种比例需要统一调查和明确样本,缺少来源时不宜写成“超过80%”的普遍结论。
更有趣的是,一些昆虫物种内部出现了“翅二型”现象:同一个物种的不同个体,有的长翅有的短翅。这种可塑性让它们能根据环境条件灵活调整策略。比如,褐飞虱在食物充足、密度较低时倾向于发育短翅,节省能量用于繁殖;而在食物不足、密度过高时,新一代主要发育长翅,准备迁飞到新的稻田。
蜻蜓的迁飞模式也验证了理论预测。中国有记录的迁飞性蜻蜓,如黄蜻和蓝额疏脉蜻,主要栖息在临时性水体,如季节性湖泊和水坑。而那些生活在溪流、永久性池塘中的蜻蜓物种,很少进行长距离迁飞。
植物的种子传播
植物无法移动,但它们的种子可以旅行。中国植物区系为研究扩散进化提供了理想的自然实验室。
蒲公英属植物在中国分布广泛,从东部平原到青藏高原都有分布。具体研究发现:
-
低海拔地区的蒲公英:
- 种子冠毛发达(就是那些白色的“小伞”)
- 随风可飞出上百米,扩散能力强
-
青藏高原上的高山蒲公英:
- 冠毛明显退化,有些种类几乎没有冠毛
- 扩散能力弱,种子更倾向于“留在原地”
这种现象正好印证了空间异质性理论:高原环境孤立且特殊,种子飞出高原后很难存活,自然选择更有利于那些留在本地的植株后代。
海南岛上的植物也展现出类似模式。与大陆近缘种相比,许多海南特有植物的种子失去了翅、毛等助飞结构,变得更重、更难被风带走。这是典型的岛屿化效应:强扩散能力的种子容易被吹到海里,留下的都是扩散能力弱的后代。
下图是栖息地稳定性与扩散能力的关系:
生态学研究发现,环境越是波动、越不稳定,生活在这里的物种越容易演化出增强的扩散能力。这一规律在昆虫和植物中均得到验证。像临时水塘的昆虫常具发达的飞行器官,能够迅速前往其他水域;而频繁遭遇干旱或破坏的地区,植物往往拥有便于风力传播的轻质种子。这样的扩散性状,让它们可以在局部恶化时离开原地,寻找新的栖息地。
换句话说,无论动物还是植物,扩散能力的增强是对不确定环境的一种适应性策略。这不仅是在空间上规避风险,也为种群提供了跨越环境变化的重要机会,提升了生存和繁衍的可能性。
分布区边缘的快速进化
近年来气候变暖,许多物种的分布区正在向北、向高海拔扩张。这为研究扩散进化提供了难得的“实时”机会。
扩张前沿可能因空间排序和自然选择富集扩散较强的个体,但并非每次范围扩张都会发生遗传演化。判断变化是否属于演化,需要共同园实验、遗传数据或跨代重复测量,以排除温度和营养造成的表型可塑性。
在收缩种群中,栖息地破碎化既可能选择较低扩散,也可能因需要跨越斑块而有利于较强扩散,方向取决于扩散死亡率和可用斑块。保护管理应测量连通性与实际迁移,避免把一种理论结果概括为必然的“演化自杀”。
种子的三种策略
休眠的代价与收益
说完扩散,我们再来看另一个有趣的现象:种子休眠。许多植物的种子成熟后并不立即萌发,而是在土壤中“睡上一觉”,甚至一睡就是好几年。
休眠显然有代价,主要包括:
- 种子在土壤中每年都会存在一定的死亡风险,可能被真菌感染、被动物吃掉,或者逐渐失去活性。
- 在种群数量增长阶段,早繁殖意味着代数增加,基因传播得更快。休眠会延迟繁殖,从这个角度看是不利的。
但休眠也有明显的好处:
- 它在时间维度上实现了“风险分散”。例如,某一年可能遭遇干旱,全部萌发的种子都会死亡;但如果部分种子选择休眠,等到未来雨水充足时再萌发,就有可能避开不利环境。
- 这种机制与扩散在空间上分散风险的逻辑类似,只不过休眠是在时间上进行“下注”。
中国西北干旱区的植物普遍具有较强的种子休眠性。对索诺兰沙漠植物的研究(虽然不在中国,但原理相通)表明,降雨量年际波动越大的地区,植物的种子休眠比例越高。这符合理论预测:环境越不可预测,“押注”未来的策略就越有价值。
另一个促进休眠的因素是亲缘竞争。如果种子全部在父母植株附近萌发,兄弟姐妹之间的竞争会非常激烈。通过休眠,一部分种子错开竞争时间,可以提高家族整体的成功率。
种子大小的意义
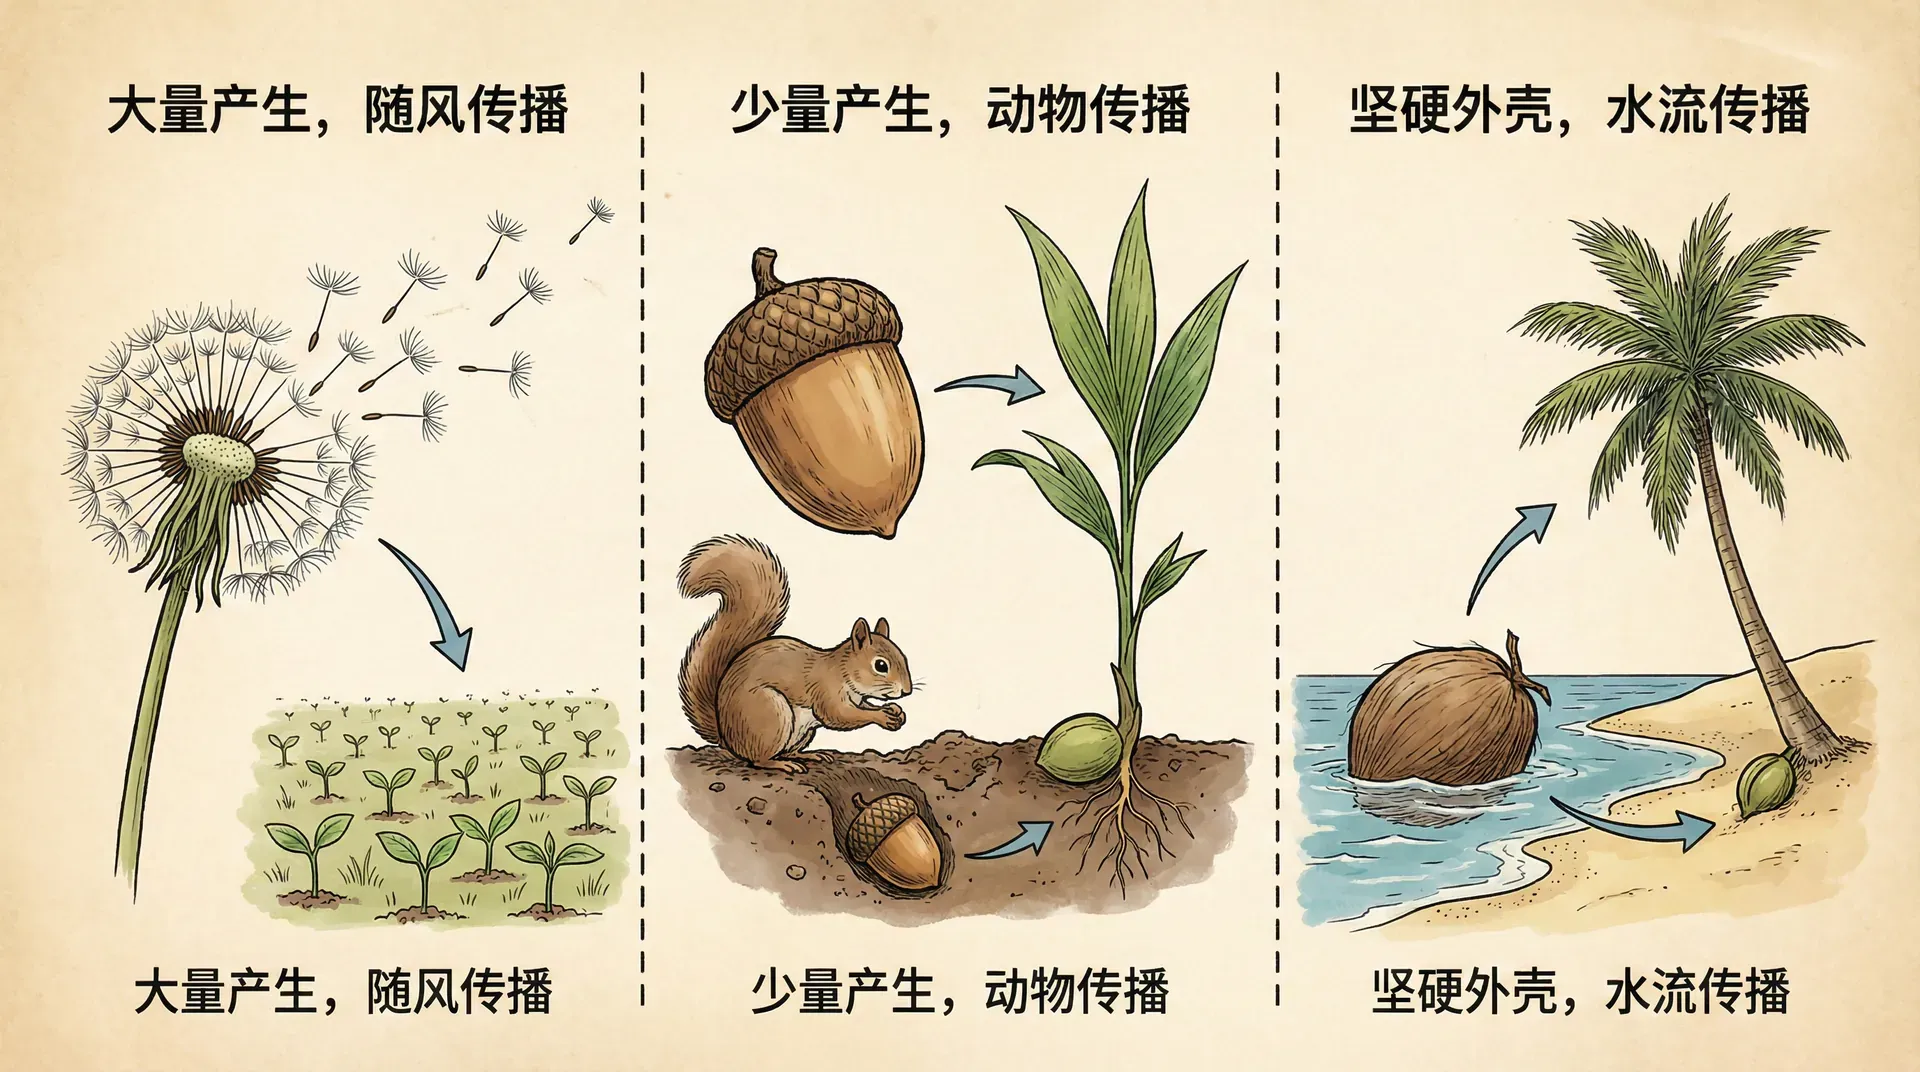
除了扩散和休眠,种子还有第三个选项:改变大小。大种子储存更多养分,幼苗能更好地应对不利环境,比如干旱、贫瘠土壤、或浓密的竞争者。但大种子意味着母株必须投入更多资源,同样的资源只能生产更少的种子。
那么,一个植物应该生产少量大种子,还是大量小种子?答案取决于环境条件。在竞争激烈、资源贫瘠的环境中,大种子有优势。但在开阔、资源丰富的环境中,小种子数量多反而更有利。
三角权衡关系
现在问题变得复杂了:植物面临三个选择——扩散、休眠、还是增大种子?有趣的是,这三个策略实际上在功能上相互替代。
扩散是在空间上逃避不利环境;休眠是在时间上逃避不利环境;而增大种子是在原地“硬扛”不利环境。如果把资源投入到扩散(比如发育更大的翅或冠毛),就没有足够资源用于休眠机制或增大种子。这就是所谓的“生活史权衡”。
1988年,维纳布尔和布朗发表了一篇经典论文,从理论上分析了这三个性状如何共同进化。他们的模型预测:
为便于比较不同生境类型植物在扩散和休眠策略上的差异,我们可以用以下信息概括:
可以看出:
- 沙漠植物偏向于时间上的赌注——高比例休眠以抵御年际极端干旱;
- 湿地植物则倾向于空间上的赌注——扩散距离远,抓住短暂适宜条件;
- 森林植物相对均衡,休眠和扩散适中,但更注重提升种子本身的竞争力。
扩散结构、休眠和种子大小都需要资源,但三者的相关方向还会受亲缘关系、种皮生理和传播媒介影响。模型给出可检验预测,野外相关性则需要排除体型和系统发育等混杂因素。
真实世界的验证
跨物种资料可用于检验种子质量、传播距离和休眠倾向之间是否相关。解释结果时要报告测量方法和系统发育校正;负相关能够支持资源权衡,却不能单独证明三种性状互为替代。
- 扩散能力强的物种:
- 种子往往较小
- 休眠性较弱
- 种子大的物种:
- 扩散距离短
- 休眠比例低
- 休眠性强的物种:
- 扩散距离短
- 种子大小偏小
岛屿植物中既有传播结构退化,也有保持或增强远距传播的例子。海椰子种子极大、自然分布受限,说明定殖、幼苗竞争与母株投入之间可能存在权衡;一个极端案例不能证明所有岛屿植物都放弃扩散和休眠。
若要比较岛屿与大陆近缘植物,应在同一测量方法下记录种子质量、传播结构、休眠和定殖成功,并控制亲缘关系。缺少明确数据来源时,不宜给出平均增重或结构减少的精确百分比。下面总结了不同环境因素如何影响这三个性状:
种子的扩散、休眠和大小并非独立演化,而是在资源限制下的联合优化。环境的细微变化会同时重塑这三个性状,形成不同的生活史策略组合。
总结
扩散和休眠把生态条件、个体差异与种群后果连接起来。阅读模型时先列出假设,阅读野外案例时再问性状是否可遗传、是否提高了后代贡献;两类证据相互补充,却不能彼此替代。
从汉密尔顿和梅的简洁模型,到维纳布尔和布朗的多性状权衡理论,进化生物学家们用数学语言刻画出生命策略的内在逻辑。而大自然用千百万个物种的真实表现,验证了这些理论的预测。从内蒙古草原的飞蝗,到青藏高原的特有植物,从候鸟的迁徙路线,到沙漠种子的休眠周期,都能找到进化理论的印记。
这些认识可用于提出保护问题:破碎化会怎样改变迁移收益,气候变化是否让原有休眠线索失去可靠性,人工斑块是否位于物种能够到达的距离。管理方案需要跟踪性状和数量的实际变化。
保护实践可以据此提出更具体的问题:斑块是否仍可到达,迁移途中死亡率多高,种子库能维持多久,管理是否改变了选择压力。答案来自监测和实验,而不是假定物种会朝某个最优方向自动调整。
扩散者、留居者与休眠者可能在同一种群中长期共存,因为年份、地点和个体状态不断改变各自收益。把模型假设、野外相关和跨代遗传证据分开,才能判断观察到的差异是短期可塑性还是演化变化。