当生态遇上演化
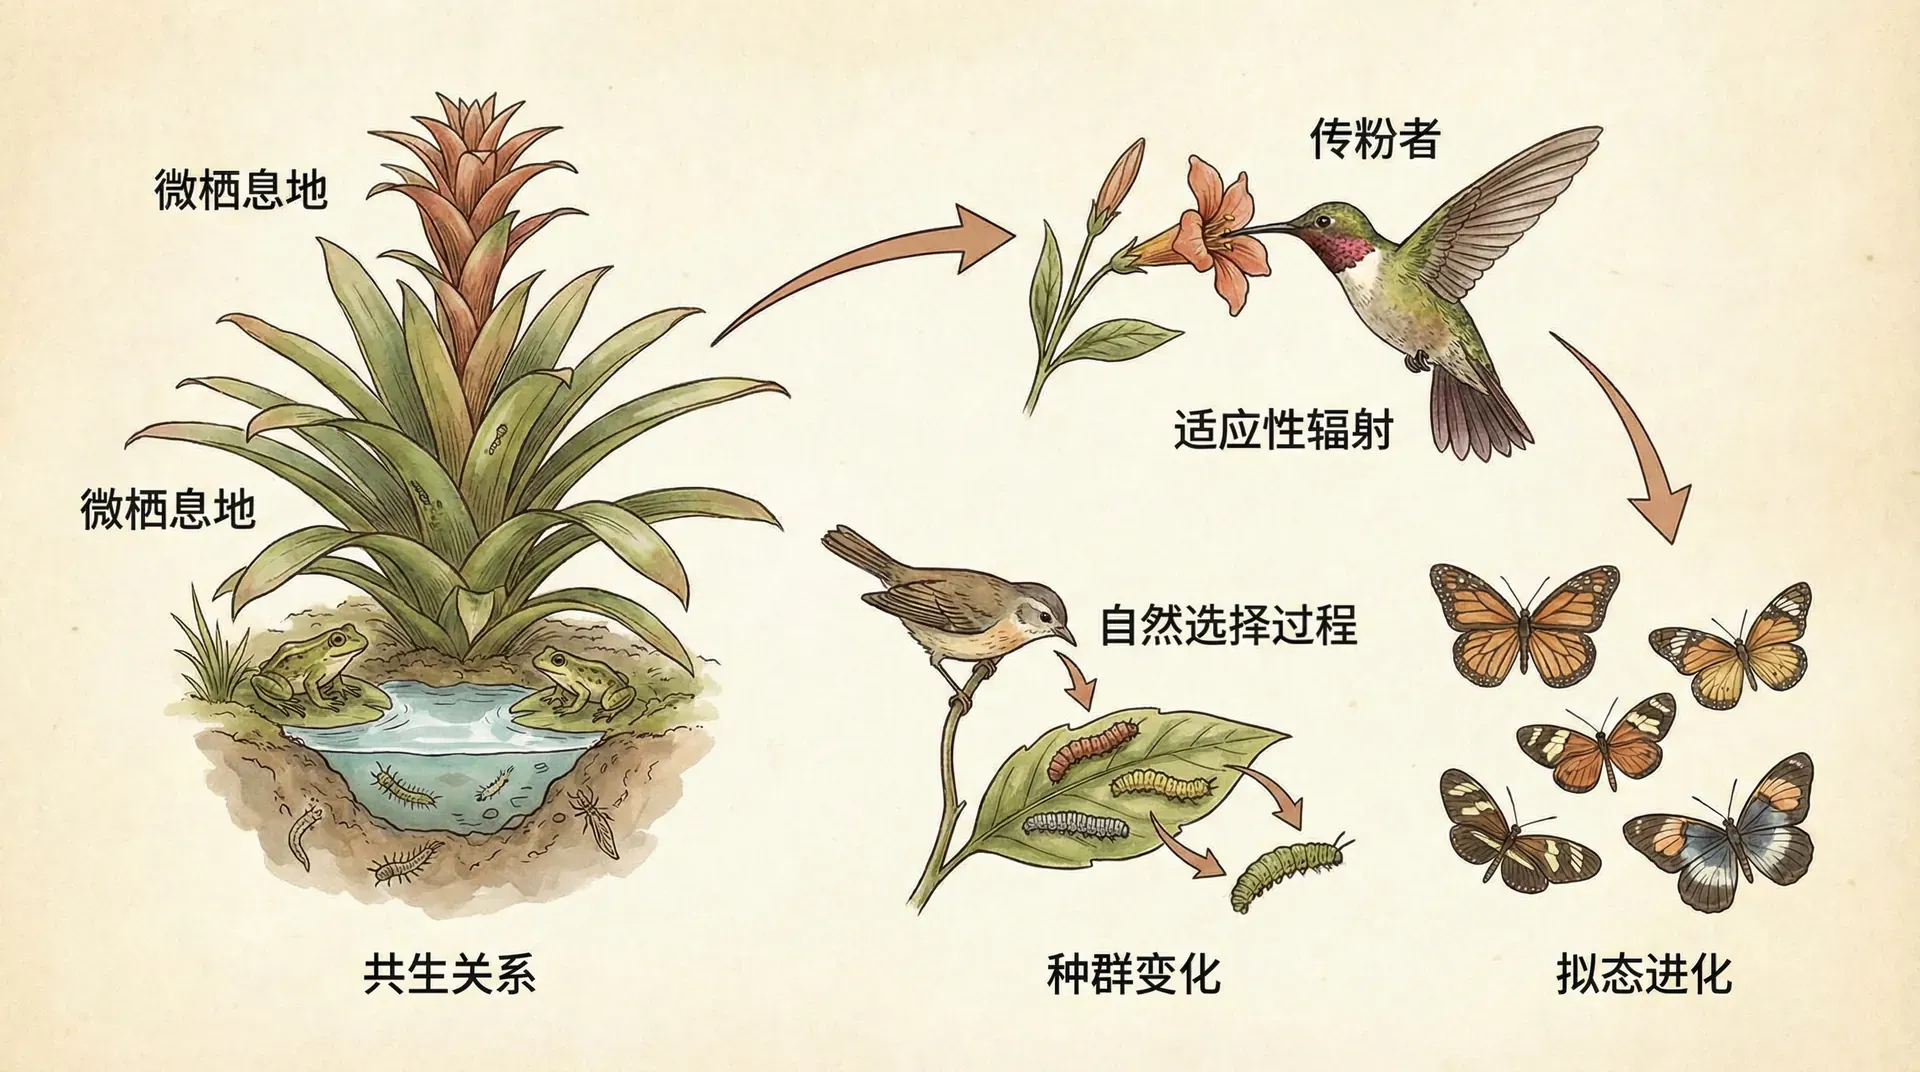
云南高原湖泊彼此隔离、形成时间和水环境不同,因而保存了各具特色的鱼类群落。观察这些湖泊时,需要把两类变化分开:污染、捕捞和外来种会在较短时间内改变种群数量与群落组成;可遗传性状在世代间发生频率变化,则属于演化过程。两类过程发生在不同时间尺度上,却会彼此影响。
青海湖提供了另一种对照。高海拔、低温、盐碱度波动和季节性河流,使青海湖裸鲤面临与低海拔淡水鱼不同的选择压力。研究者只有结合形态、生理、遗传和环境数据,才能判断种群差异是可塑性反应、遗传分化,还是两者共同作用的结果。
特有种(endemic species)指的是只在某一特定地理区域自然分布的物种。云南高原湖泊因其地理隔离,孕育了大量特有鱼类。
比较湖泊时,面积只是背景变量,不能直接推出多样性高低。更有学习价值的做法,是同时记录连通性、水深与水化学、栖息地类型、鱼类名录及调查年代,再检验不同解释是否符合证据:
这些对照提醒我们:物种数是历史、环境和调查方法共同留下的结果。湖泊更大,并不必然拥有更多鱼类;湖泊较小,也不能仅凭“古老”或“封闭”就解释其特有性。可靠结论需要多个相互独立的证据相互支持。
湖泊鱼类可能来自历史水系连接、跨流域扩散或人类引入,进入湖泊后还可能继续发生种群分化。重建多样性的来源,需要把地质记录、系统发育关系和现生生态差异放在同一时间框架中。
上图展示了滇池鱼类多样性的急剧下降。从1970年代开始,由于水质污染、外来物种入侵和过度捕捞,滇池土著鱼类经历了灾难性的衰退。这个真实的案例提醒我们:物种多样性的形成需要漫长的时间,但破坏却可能在几十年内完成。
物种是如何形成的
物种形成是种群之间的基因交流逐步减少,并积累遗传、生态或行为差异的过程。这里先建立判断框架:看到两个群体不同,不等于已经形成两个物种;还要考察差异能否遗传、是否持续,以及生殖隔离达到什么程度。详细证据将在“物种是如何诞生的”中展开。
简单来说,物种的产生意味着一群原本属于同一种类的生物,通过各种方式逐渐演变成彼此无法自由繁殖的不同种群。这个过程是生物多样性不断涌现的核心动力,也是自然界演化故事的起点。
地理隔离
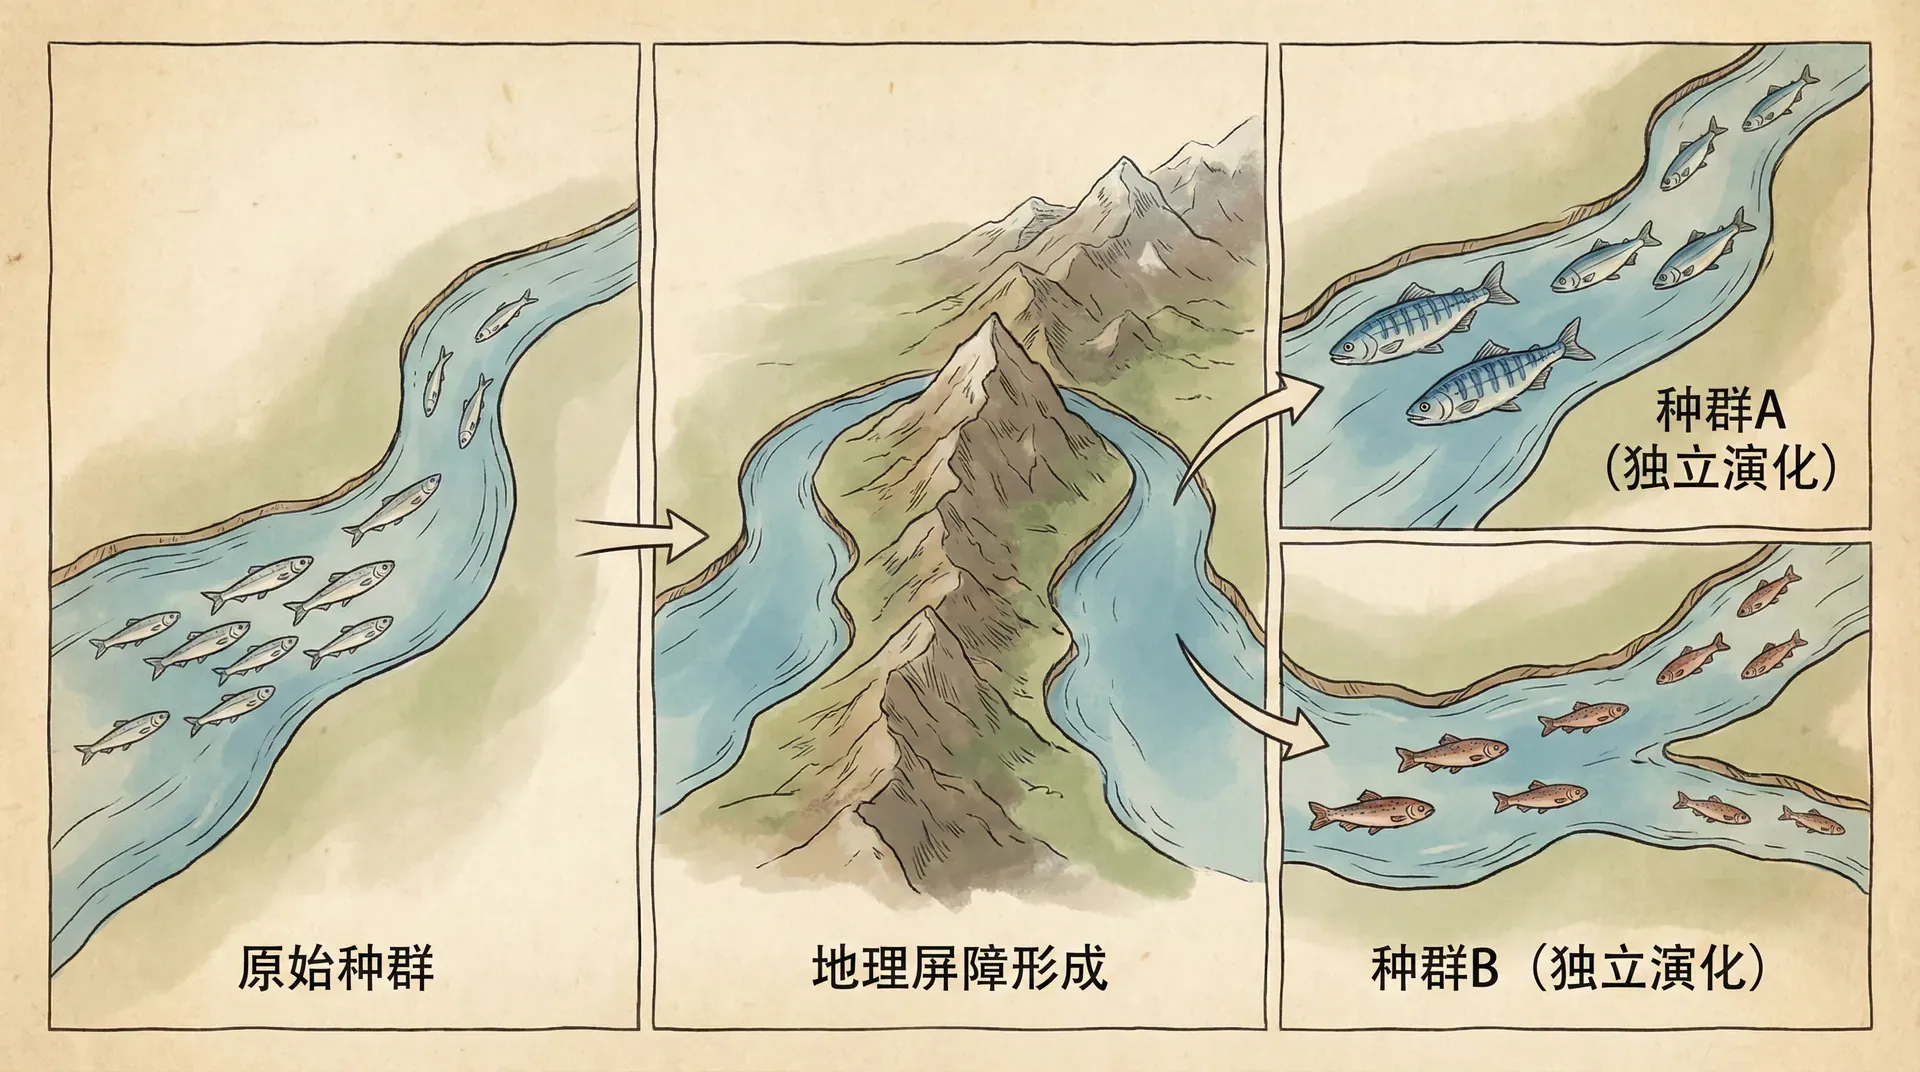
地理屏障会减少种群间的基因交流,使漂变和不同环境中的选择有机会积累差异。屏障并不自动产生新物种:隔离持续多久、种群多大、是否仍有迁移,以及差异是否影响交配或后代适合度,都会改变结果。
青藏高原隆升与水系重组曾多次改变鱼类种群的连通性。青海湖裸鲤与黄河水系近缘类群的关系,可以通过系统发育和古水文证据检验;具体分离时间会随样本、分子钟和地质解释而变化,不宜用单一年代把复杂历史定死。
地理隔离导致的物种形成称为“异域物种形成”(allopatric speciation)。这是最常见也最容易理解的物种形成方式。
就地分化
但地理隔离并不能解释所有现象。在同一个湖泊中,为什么会存在这么多共同生活、却保持各自独立的物种?它们明明有机会相遇和交配,为什么没有混合成一个物种?
这就涉及到更有趣的机制了:在没有地理隔离的情况下形成新物种,我们称之为“同域物种形成”(sympatric speciation)。这个过程需要克服两个关键挑战:
-
生态分化:两个正在分化的种群必须占据不同的生态位,否则它们会因为竞争而无法共存。比如,一群鱼以浮游生物为食,另一群以藻类为食,它们虽然生活在同一片水域,但不会为同样的食物资源激烈竞争。
-
生殖隔离:即使两个种群占据不同的生态位,如果它们还能自由交配,基因就会不断混合,无法形成独立的物种。所以必须有某种机制阻止或减少种群间的交配。
同域分化的难点,是生态差异和择偶差异必须足以抵消持续的基因交流。研究者通常比较寄主或食物利用、交配偏好、杂交后代适合度与基因组分化,判断分化是否正在形成生殖隔离。
配偶选择的力量
在鱼类中,一个重要的生殖隔离机制是配偶选择。许多鱼类在繁殖季节会展现出鲜艳的婚姻色,雄鱼用这些色彩吸引雌鱼。如果雌鱼有强烈的颜色偏好,比如有些雌鱼特别喜欢红色雄鱼,而另一些偏爱蓝色雄鱼,那么久而久之,种群就可能分裂成不同的类型。
颜色和择偶偏好的共同变化可以作为一个理论情景:若颜色差异可遗传、雌性偏好也可遗传,而且同类交配长期强于异类交配,基因交流可能逐步下降。任何一个条件不成立,颜色差异都未必会走向物种形成。
说明:页面展示的是条件化的理论过程。颜色突变本身不会直接产生新物种;只有可遗传偏好、非随机交配和较低的群体间基因交流长期同时存在,分化才可能累积。
当颜色性状与择偶偏好产生遗传关联时,偏好可能放大性状差异,这类机制常用性选择模型研究。它能否造成稳定分化,要用野外配对、光环境、遗传结构和杂交适合度等数据检验,不能由颜色不同直接推出两个物种。
一旦通过配偶选择形成了生殖隔离,两个种群就可以各自适应不同的食物资源或栖息地,发生生态分化。这样,同域物种形成就完成了。
环境因素的关键作用
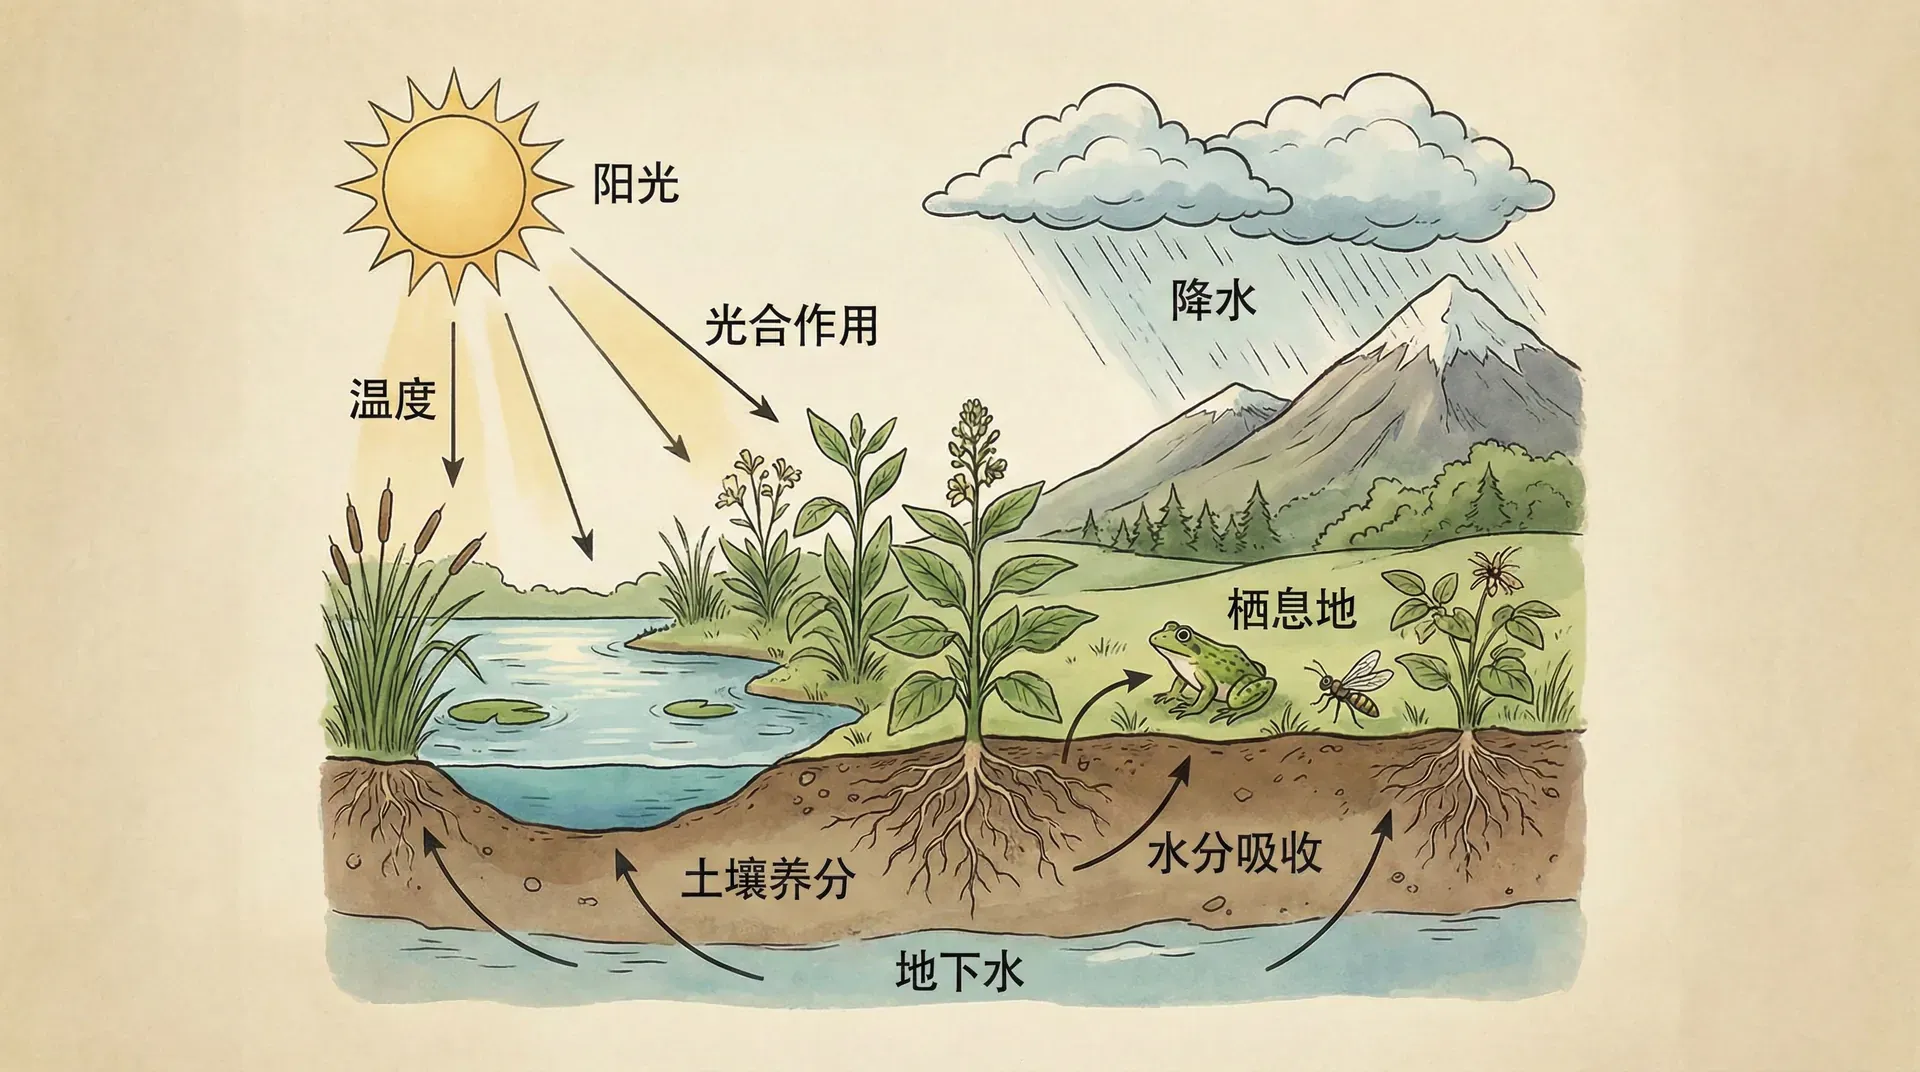
环境会改变资源、死亡风险和感官信号,从而改变选择压力与基因交流,但不会按预定方向“制造”物种。同一环境变化也可能带来多种结果:种群衰退、迁移、表型可塑性、遗传适应,或几种过程并存。
水质透明度的影响
清澈度影响水下光谱和视觉信号。东非维多利亚湖慈鲷研究表明,富营养化造成的浑浊可能削弱基于颜色的择偶识别,并在部分地点增加杂交。不过,这一机制依赖物种的感官系统和繁殖行为,不能直接套用于滇池鱼类。
在具备颜色择偶的鱼类中,浑浊水体可能降低不同颜色信号的可辨识度,进而减弱交配前隔离;是否真的发生“物种融合”,仍需杂交率和遗传数据证明。滇池土著鱼衰退有污染、栖息地改变、过度捕捞和外来种等已知压力,现有材料不足以把它解释成视觉隔离崩溃。
页面中的数值用于比较“清澈度改变时,视觉识别可能怎样变化”的关系,不能当作滇池实测的物种数。阅读时应区分三层信息:变量之间的理论关系、特定湖泊的观测数据,以及能够支持因果机制的实验或遗传证据。
这给我们一个深刻的启示:环境质量不仅影响物种能否生存,还影响物种能否保持各自的独立性。滇池的悲剧不仅是鱼类数量的减少,更是物种多样性的消失。当水体富营养化导致水质浑浊时,不同物种之间的界限变得模糊,特有种群消失了。
环境退化对生物多样性的影响是多方面的,它不仅直接导致物种死亡,还会破坏维持物种多样性的机制,让物种之间的界限消失。
生态机会的作用
为什么有些生物类群特别容易产生多样性,而另一些则相对单调?除了配偶选择,生态机会也很重要。
许多鲤科鱼类具有咽齿,口部摄取与咽部处理食物可以承担不同功能。不同物种的咽齿形态与食物硬度、处理方式常有关联,但摄食还受鳃耙、口型、肠道和行为共同影响,不能只凭一处结构判断食性。
这种生态灵活性意味着,当鱼类进入一个新的湖泊环境时,可以迅速分化去利用各种可用资源。如果同时再加上强烈的配偶选择,物种形成的速度就会非常快。
生态与演化的交响
现在我们可以回到最初的问题:为什么要把生态学和演化生物学放在一起讨论?
两个领域的交汇
生态学研究生物与环境的相互作用。它关心的问题包括:为什么某种生物生活在这里而不是那里?一个地区能容纳多少个体?哪些物种会共同生活?生态系统是如何运转的?
演化生物学研究生物谱系如何随时间变化、分支和灭绝。它关心的问题包括:某种特征是如何演化出来的?为什么某些类群特别多样?物种是如何起源的?
这两个领域看似关注不同的问题,但它们紧密相连,因为:
- 生态过程(如资源可利用性、环境压力)推动演化,筛选出适应环境的性状。
- 演化产生的多样性和性状又反过来影响了生态系统中的能量流动、物种分布和相互关系。
示例如下:
| 驱动方向 | 具体案例 | 结果 |
|---|---|---|
| 生态→演化 | 湖泊变清澈,鱼类颚部结构分化 | 物种多样化加快 |
| 演化→生态 | 鱼类咽喉齿结构、体型多样,形成不同生态位 | 群落结构复杂,多物种共存 |
生态与演化之间存在反馈:生态条件改变选择压力,性状频率的变化又可能改变种间关系和物质循环。这里的关键词是“可能”和“可检验”,因为环境不会单独决定演化方向,演化变化也不会独自决定整个生态格局。
从个体到生态系统
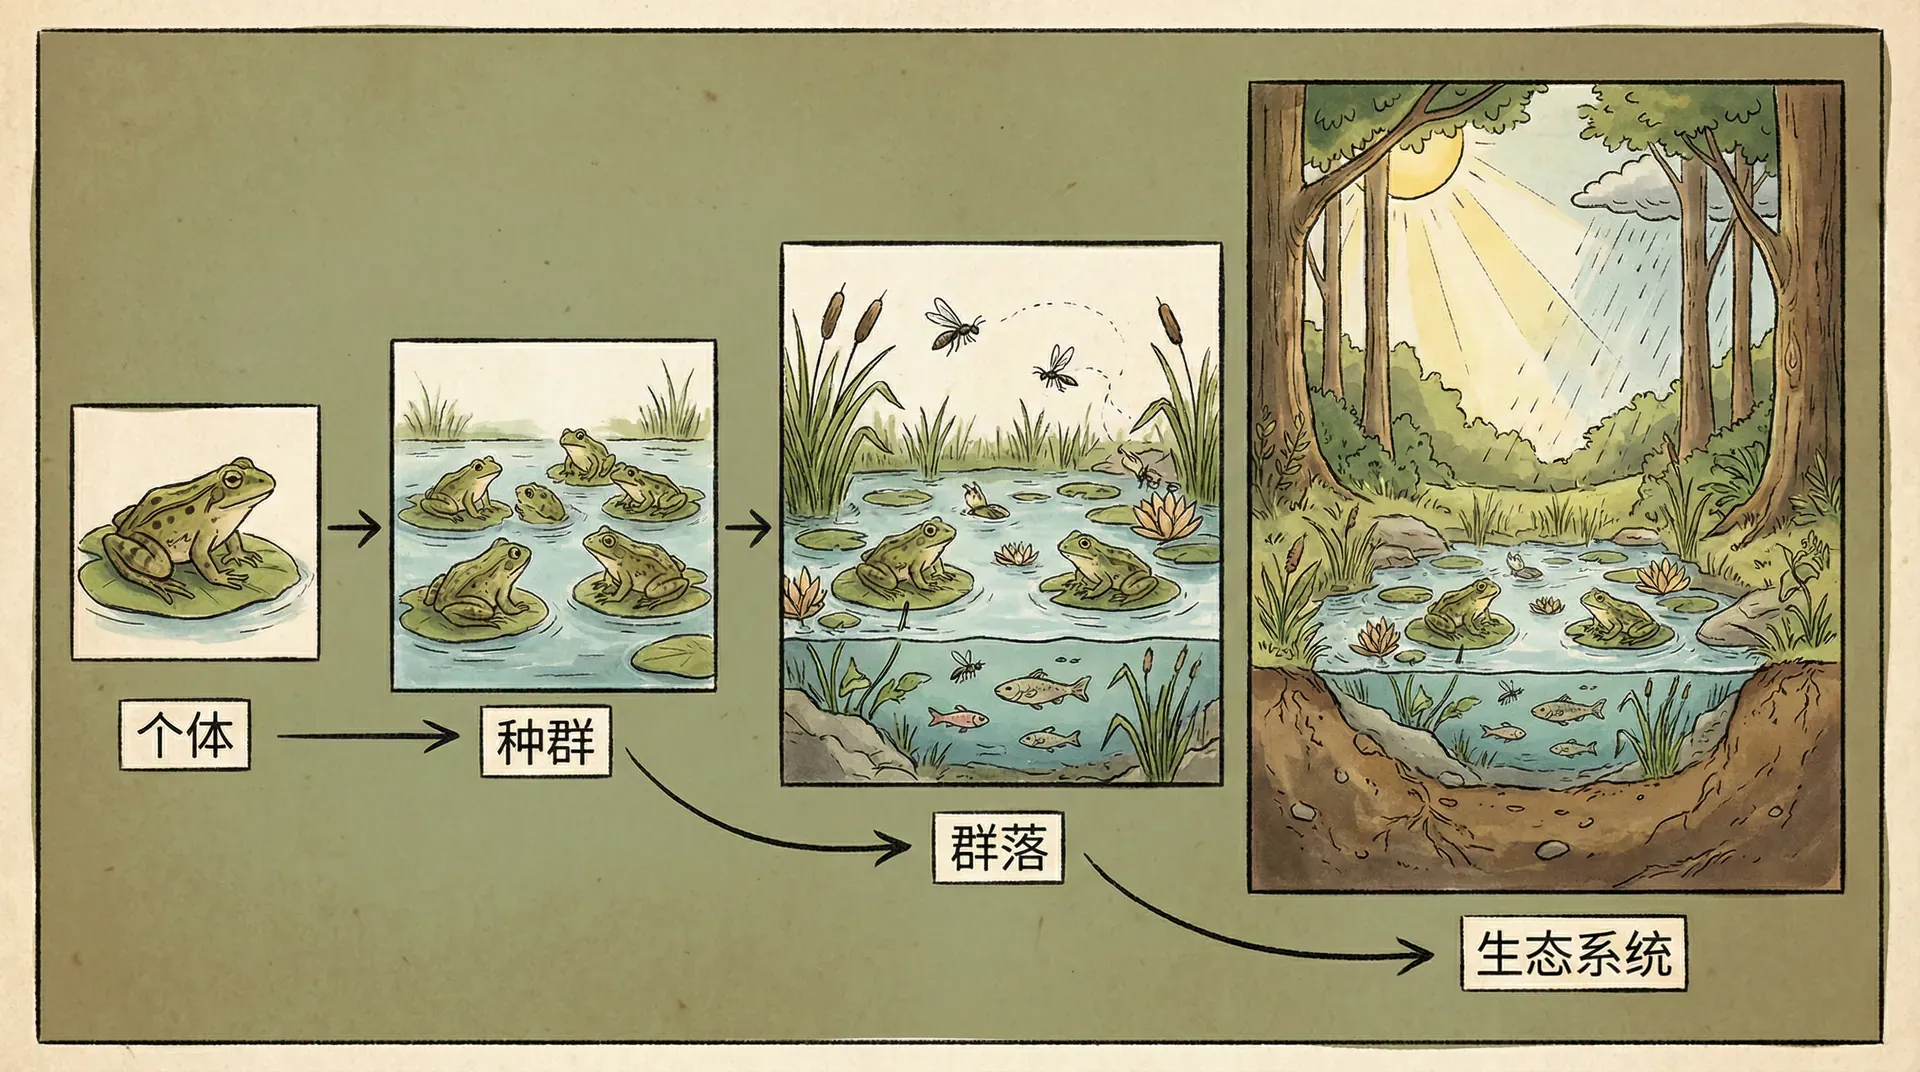
让我们看看演化如何影响不同层次的生态学问题。
个体层面:为什么某种鱼长着特定形状的颚?为什么在繁殖季节展现鲜艳的色彩?为什么偏好某种配偶?这些都是演化的结果。行为生态学专门研究生物的行为如何适应环境——什么样的行为策略在什么样的环境中最有利。我们讨论的配偶选择行为,就是行为生态学的经典问题。
种群层面:成熟时间、繁殖数和存活率共同影响种群增长与波动。这些生命史性状有演化历史,也会随当下营养、密度和年龄结构改变,因此需要人口统计数据区分原因。
群落层面:一个湖泊能容纳多少物种,这些物种如何相互作用?这既取决于生态因素(有多少种资源、环境有多稳定),也取决于演化因素(物种形成的速度、生态特化的程度)。我们看到,具有特殊性状(如解耦的咽喉齿、强烈的配偶选择)的类群更容易产生高度多样的群落。
生态系统层面:物种的功能性状会参与塑造食物网、营养循环和能量流动,但生态系统结果还取决于物种组成、非生物环境和扰动,不能由单个性状直接推出。
从湖泊到世界
云南湖泊的鱼类只是一个小小的例子,但它展示的原理具有普遍性。在世界各地,我们都能看到生态与演化的相互作用。东非大湖泊的慈鲷鱼,加拉帕戈斯群岛的达尔文雀,夏威夷群岛的果蝇,每一个案例都讲述着相似的故事:在特定的地理和生态条件下,在特定的演化机制作用下,生命迸发出惊人的多样性。
理解这些过程不仅满足我们的好奇心,也有实际意义。当我们知道物种多样性是如何产生和维持的,就更能理解如何保护它。滇池的教训告诉我们,破坏生态环境不仅会导致个别物种灭绝,还会摧毁整个演化过程。我们失去的不仅是现在的物种,更是未来产生新物种的可能。
保护生物多样性,不仅要保护现有物种,还要保护产生和维持多样性的生态与演化过程。
总结
阅读湖泊案例时,可以依次追问:群体是否被隔离,差异是否可遗传,基因交流是否下降,生态或择偶差异是否能维持。这个顺序能避免把外形差异、种群衰退或一项环境相关性过早解释为物种形成。
环境既能影响存活和繁殖,也能改变生物信号与种间关系。东非慈鲷的视觉择偶研究说明水下光环境可能参与维持生殖隔离;滇池鱼类则应依据当地污染、捕捞、栖息地和外来种证据解释,不能把不同湖泊的机制混为一谈。
把生态过程和演化过程放在一起,目的在于提出能被数据回答的问题:环境变化是否造成繁殖差异?性状差异能否遗传?这种变化又是否改变种群增长或群落功能?区分观测、机制假说和检验结果,才是理解生态—演化反馈的起点。