地球生态的演变历程
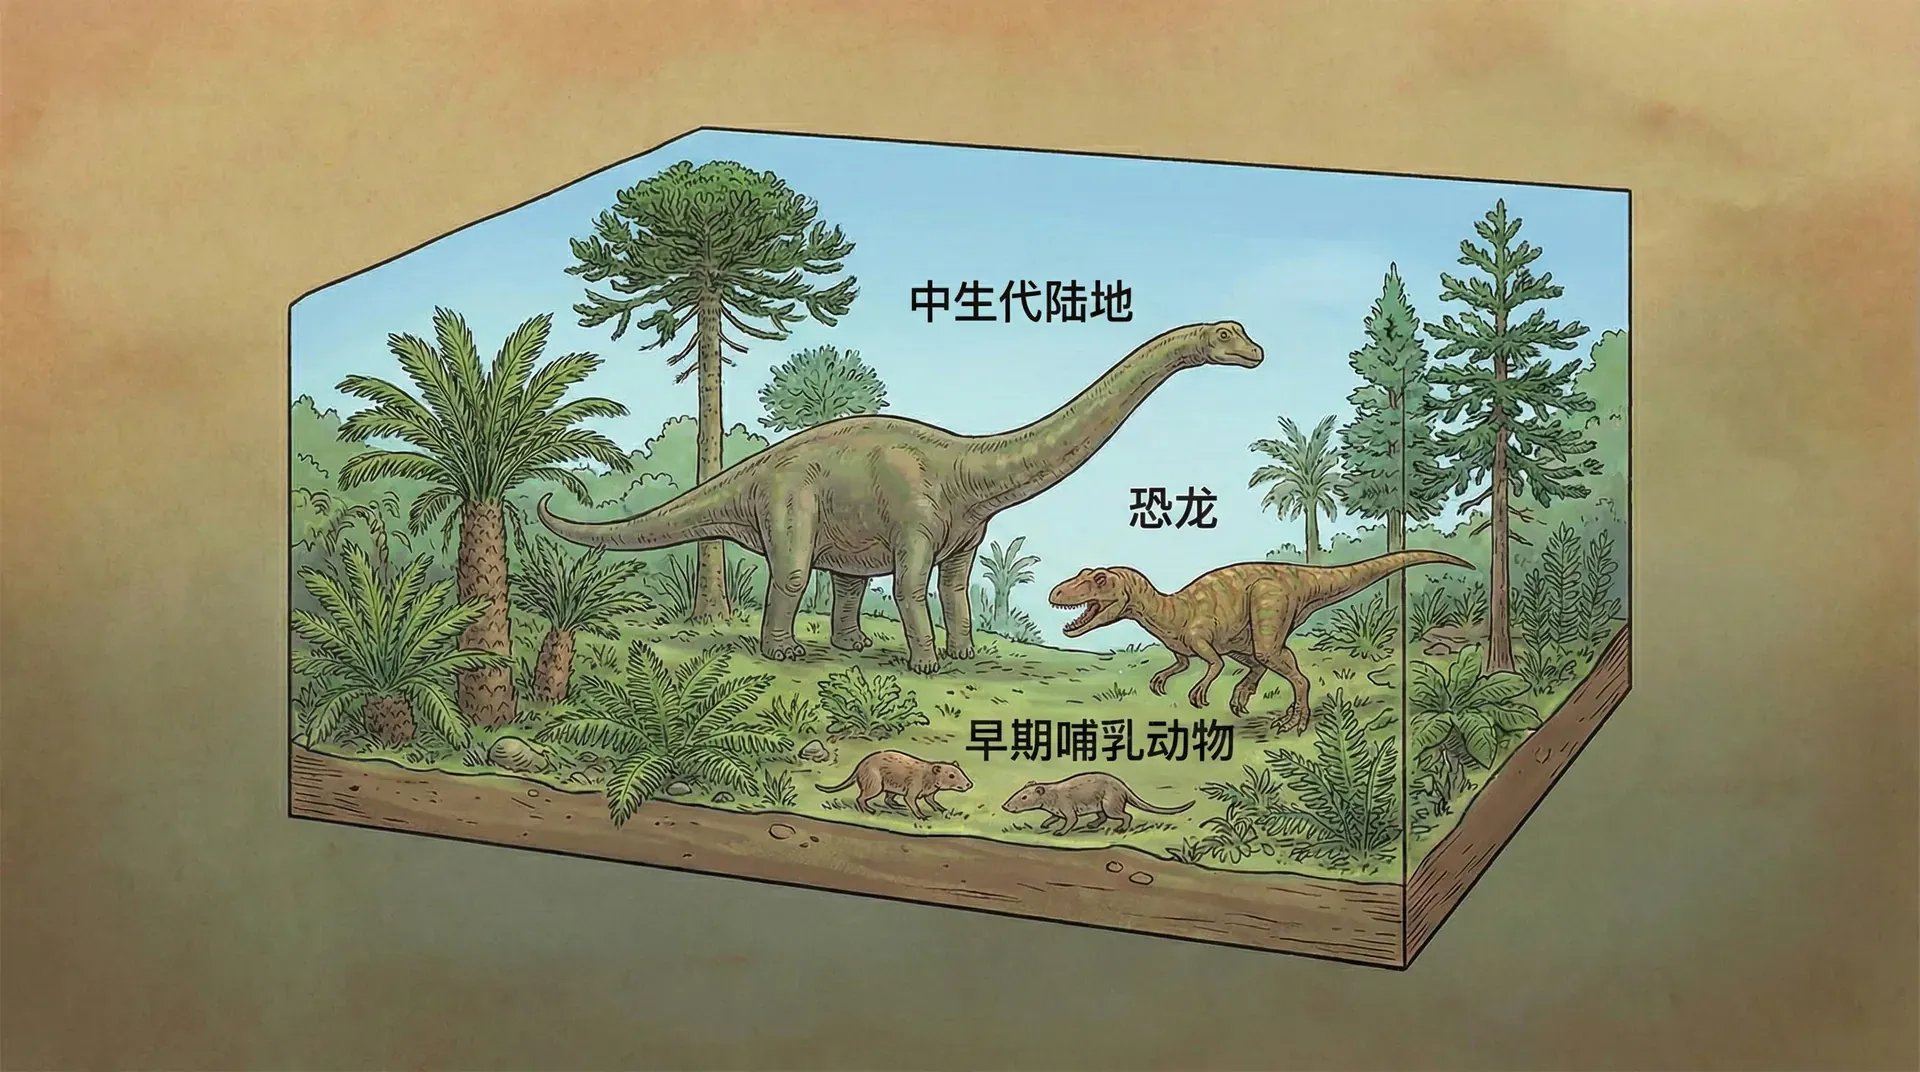
站在今天中国广袤的土地上,从东部的长江三角洲到西部的青藏高原,从南方的云南热带雨林到北方的大兴安岭针叶林,我们能看到丰富多样的生命形式。昆虫种类繁多,绿色植物覆盖大地,各种脊椎动物和无脊椎动物在不同的生态位中繁衍生息。这些生命几乎遍布地球的每个角落:海洋、淡水、陆地、甚至是缺氧的泥潭、高盐的湖泊、火山温泉、沙漠沙丘,乃至南极冰冻的岩石和地下数百米深的岩层中。
今天的高生产力与高多样性系统分布在陆地和海洋:热带森林、湿地、河口、珊瑚礁和沿岸上升流各受不同限制。陆地初级生产者以植物为主,海洋初级生产很大部分来自浮游植物;少量生态系统还以化学能为基础。碳在大气、海洋、土壤、岩石与生物之间循环,不能只概括为从大气进入植物再返回大气。
生物圈的演化历程
生命的起源与早期演化
地球上至少在约35亿年前已经存在生命证据,更早线索仍有争议。生命起源研究包含多种假说,例如有机分子在不同环境中合成、代谢网络先形成或可复制分子先形成;“最初生命是异养还是自养”尚不能靠现有证据二选一。
不同证据回答不同问题:碳同位素异常提示可能存在生物代谢,微体化石提供形态,叠层结构记录微生物群落与沉积物的相互作用,分子钟估计谱系分离时间。任何一类证据都可能有非生物解释或模型误差,因此生命早期历史通常用时间范围和证据强弱表达。
- 原始细胞膜通透性有限,难以直接摄取大分子有机物;
- 自我强化并可自发出现的代谢循环有可能早于生命出现。
早期能量代谢可能利用地球化学反应,也可能很早出现光能利用。由于直接化石稀少,研究者会比较现代代谢通路、同位素信号与地质环境。哪一种代谢最先出现尚无定论,不能把化能自养群落写成已经确定的第一套生态系统。
RNA既能储存信息,也能催化部分反应,因此“RNA世界”是重要假说;但这不意味着早期生命确定没有蛋白质催化。现代叶绿素合成由蛋白质酶完成,不能把分子与RNA的关系直接当作远古RNA催化的遗迹。光合作用后来把太阳能大规模引入生物圈,并改变了地球的氧化还原环境。
| 主要自养类型 | 能量来源 | 电子供体 | 产物 |
|---|---|---|---|
| 光能自养 | 光能 | H₂O、H₂S、H₂等 | O₂, 硫, 或无 |
| 化能自养 | 无机化学反应 | H₂, Fe²⁺, NH₄⁺等 | 多种(NH₃等) |
早期光合生物可能利用硫化氢或分子氢作为电子供体,而非水。用水作为电子供体时才会释放氧气。
蓝细菌是重要的产氧光合生物。关于其起源年代,不同化石和分子钟研究给出的范围并不一致;较可靠的地球化学证据显示,大气氧在约24亿年前的大氧化事件中持续上升。此前生成的氧可被还原性矿物、火山气体和海洋中的还原物质消耗。
氧作为高电势电子受体,使需氧呼吸在许多条件下获得较高能量收益,但厌氧代谢并未因此消失,在缺氧沉积物、肠道和地下环境中至今仍十分重要。氧化环境的扩展改变了元素循环,并为高能量需求的生态关系提供了新的条件。
真核生物的出现
较可靠的真核化石至少可追溯到约十几亿至二十多亿年前,具体年代和判据仍在讨论。现有证据支持真核细胞包含古菌相关宿主与细菌来源线粒体的复杂历史;“最早分支的现生生物一定保留祖先状态”是系统发育中需要避免的推断。
吞噬作用、细胞骨架和内膜系统扩展了真核细胞处理颗粒和形成复杂营养关系的方式。线粒体为多数真核生物的能量代谢提供重要支持,但也有适应缺氧环境的真核生物;生态系统复杂化不能归因于单一细胞器。

寒武纪生命大爆发
寒武纪始于约5.39亿年前,动物化石记录在随后数千万年明显丰富。所谓“爆发”描述的是地质尺度上的快速辐射,并不表示复杂动物在一个瞬间同时出现;埃迪卡拉纪已有大型生物和动物活动证据,保存条件变化也影响我们看到的化石数量。
寒武纪辐射的解释也不是单选题。氧化环境变化、捕食关系、发育调控基因、生态工程活动和化石保存条件都可能参与。研究者比较这些因素的时间顺序与空间分布,寻找哪个因素是必要条件、哪个只是共同发生的背景。
捕食、骨骼化和掘穴活动改变了沉积物结构与元素循环,但这些因素之间存在双向反馈。粪粒沉降、通气深度和海洋氧化状态的效应取决于环境,不能串成一条已经确定的单向因果链。
约5.18亿年前的澄江生物群以软躯体保存著称,为观察早期动物的形态和生态关系提供了珍贵窗口,其中包括早期脊索动物。化石群记录的是特定地点与时间的群落样本,不等于所有动物门类首次出现的完整名册。
奥陶纪晚期,海洋生态系统已初具现代雏形。不久后,多细胞生物逐步征服陆地,生态空间进一步开拓。最终,陆地群落演化带动地球地球化学循环深刻转型,全球多样性与生产力由此大幅提升。
陆地生命的兴起
早期维管植物逐步改变了陆地风化、土壤形成和碳循环。泥盆纪出现树木与森林后,根系加深和有机碳埋藏可能参与长期气候变化;二氧化碳幅度与因果贡献依赖地质模型,不能用一个固定下降比例概括全球过程。
植物与植食动物的关系在陆地生态系统中逐步增多。口器、叶片取食痕迹和脊椎动物牙齿能帮助重建这些关系,但“进攻”和“战争”只是比喻;更准确的描述是植物防御、动物取食和分解过程在长期相互选择中变化。
飞行能力的演化
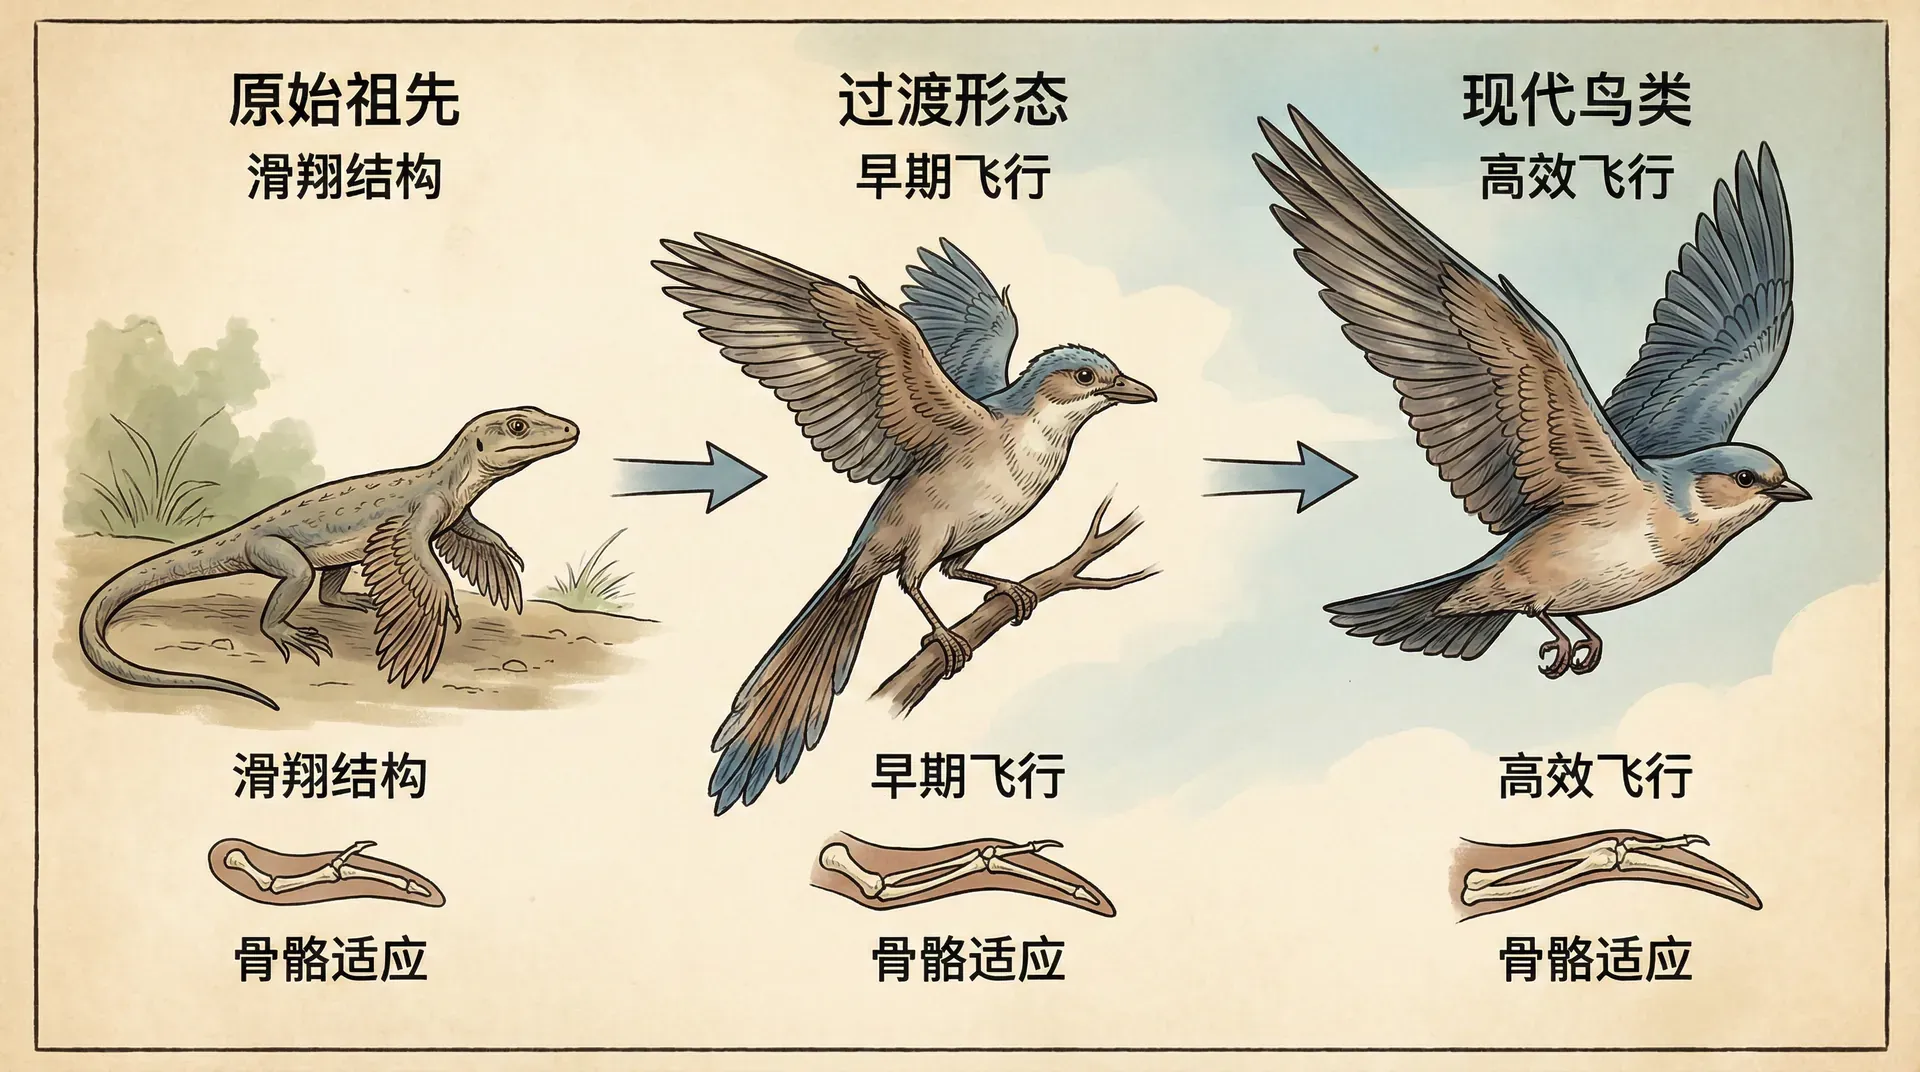
飞行被认为是生物演化史上最激动人心和深远的创新之一。在地球的历史长河中,“飞行”这一能力至少在四个动物类群中独立演化过,分别是昆虫、翼龙、鸟类和蝙蝠。这种独立演化的现象,被称为趋同演化。接下来,我们将以鸟类为核心,探究飞行能力是如何逐步演化出来的,并适度比较不同类群的演化路线与特点。
鸟类飞行的起源
大量骨骼与羽毛化石支持鸟类属于兽脚类恐龙的一支。羽毛、叉骨、气囊相关骨骼和腕部结构在不同近缘类群中呈镶嵌分布,说明飞行相关特征并非一次同时出现,而是在原有结构上逐步组合。
以中华龙鸟和小盗龙为代表的化石表明,羽毛最初可能用于身体保温或性状展示,而非专门为飞行而演化。
关于鸟类如何从地栖恐龙演变到能够飞行的动物,目前学界主要存在几种假说:
不同飞行动物的演化对比
无论是昆虫的薄翅,还是蝙蝠的飞行膜,不同类群都以极其不同的方式攻克了飞行的生物学难题。例如:
-
昆虫是最早留下动力飞行化石记录的动物。昆虫翅起源仍有争论,现有发育与化石证据支持背板结构和祖先附肢相关组织共同参与的可能性,不能只写成由鳃或腿单一路径形成。
-
水面掠行假说以现生石蝇等行为说明拍动附肢可能在完整飞行前产生功能收益。它能展示中间功能,却不能单独证明所有昆虫翅都由水生鳃结构演化而来。
-
翼龙和蝙蝠都以皮膜形成翼面,但支撑结构不同。早期化石已显示它们具备较完善的飞行能力,因此飞行起步阶段仍不清楚;树栖滑翔或地面助跑等假说要分别接受形态与环境证据检验。蝙蝠还具有果食、食蜜、食鱼等多种食性,并非都依靠回声定位捕食昆虫。
我们可以通过下方的简单对比,看到四类飞行动物关键演化特征:
- 昆虫:翅膀由鳃状节段演化/身体小/外骨骼轻盈/早期出现在石炭纪。
- 翼龙:肢指间飞行膜/大脑容量增大/多为滑翔型飞行/三叠纪-白垩纪。
- 鸟类:羽毛前臂/坚固的龙骨突/高代谢/侏罗纪演化起源。
- 蝙蝠:手指支撑的飞膜/夜行/超声波回声定位/古近纪起源。
中国的带羽毛恐龙和早期鸟类化石,为分析羽毛、前肢和飞行功能的演变提供了重要材料。中国也拥有丰富的蝙蝠物种与生态类型,具体物种数会随分类修订和新记录更新。
演化时机的重要性
尽管现代生态中存在许多能够滑翔和短距离“飞行”的动物,例如飞鼠、飞蜥、飞鱼、树蛙等,但动力飞行(真正依靠挥动翅膀持续飞行)只有上述四类成功实现。那么,为什么会是这四类在特定时期形成飞行能力,而不是其他动物呢?背后的驱动力是什么?
从演化的角度来看,“重大功能创新”往往不是靠单一的突变实现,而是经由一系列微小、连续性的变异慢慢累积结果。例如,原始羽毛从简单的丝状结构到现代鸟类多类型的羽毛,演化上并无突兀的断裂,而是逐步排列组合。化石证据(如辽宁的带羽毛恐龙)很好展示了这一渐变过程。
大气氧浓度可能限制大型昆虫的呼吸和体型,也能作为飞行演化的环境背景变量,但四次动力飞行起源跨越很长时间,不能由氧含量峰值单独解释。化石首次出现还受保存与采样影响,时间上的相近只构成相关线索。
下方概括不同飞行动物出现的大致时间与相应氧气环境(并非所有时间节点都为峰值,仅作参考):
氧浓度升高可能影响有氧代谢的供氧条件,尤其值得在昆虫气管系统中检验。它不会直接增加空气密度并产生更多升力;升力主要受空气密度、速度、翼面积和翼形影响,而空气密度主要取决于气压、温度与气体组成。
- 供氧条件:氧浓度可能影响有氧代谢和昆虫气管系统,但作用需要结合气压与体型检验。
- 飞行动力学:升力取决于空气密度、速度、翼面积和翼形,氧浓度不能直接等同于空气密度。
陆地生态系统扩展会影响碳埋藏与大气氧,而氧浓度也可能改变部分动物的生理边界。这是一个可研究的地球系统反馈,但飞行分别在昆虫、翼龙、鸟和蝙蝠中起源,不能把四次起源都归因于同一氧变化。
飞行能力的维持与生态影响
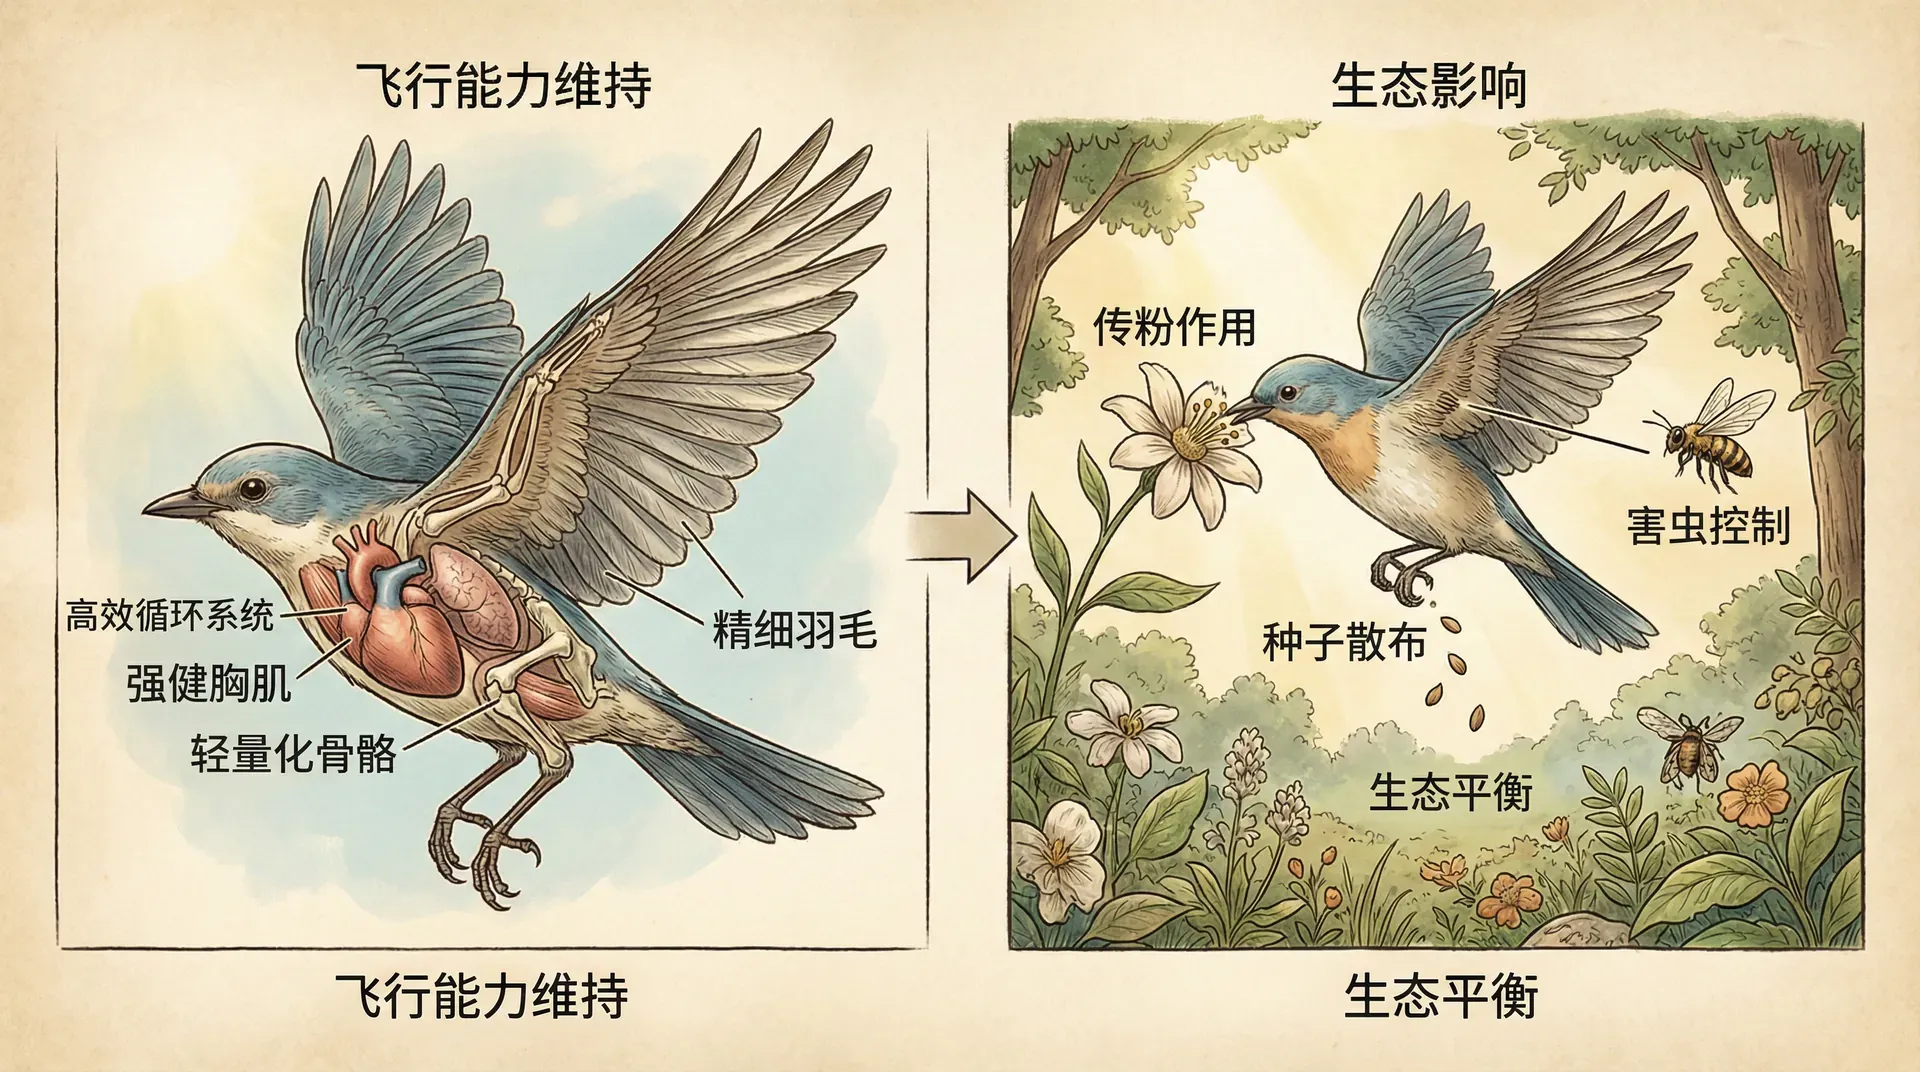
飞行能力能否保留,取决于收益、维持成本、捕食压力、扩散风险和替代运动方式。鸟类与昆虫中多次发生飞行丧失;蝙蝠和翼龙缺少明确案例可能与身体结构、谱系历史和化石记录共同有关,不能归结为单一的步行效率差异。
飞行丧失在岛屿鸟、寄生昆虫和部分高山或洞穴类群中多次发生,但原因并不相同。捕食减少、强风、迁移收益、繁殖投入和替代运动方式都可能参与;需要在近缘类群间比较,不能把某一生境写成必然无翅。
| 生境 | 证据表达 | 需要检验的生态条件 |
|---|---|---|
| 海岛 | 鸟类和昆虫中有多次独立丧失 | 风、捕食者、岛屿大小和迁移收益 |
| 高山 | 部分昆虫类群无翅比例较高 | 温度、风与活动季长度 |
| 寄生环境 | 虱、蚤等谱系失去翅 | 宿主依赖与离开宿主的收益 |
| 淡水 | 许多成虫仍以飞行完成扩散 | 水体持续时间和成虫寿命 |
| 洞穴 | 部分洞穴昆虫飞行结构退化 | 资源分布、黑暗与洞段连通 |
| 森林 | 飞行和无翅类型都存在 | 垂直结构、觅食与逃逸收益 |
飞行与多样性和生态创新的关系
飞行改变了扩散、觅食和逃避捕食的方式,也让部分动物参与远距离传粉与种子传播。它有时促进定殖和地理隔离,有时加强种群连通而减少分化,因此对物种形成率的净影响必须在系统发育和生态背景中检验。
- 利用三维空间:飞行使动物能在不同高度觅食、逃逸和迁移,但收益随生境而变。
- 改变连通与隔离:飞行可加强种群连接,也可能帮助跨越屏障后建立隔离种群,对分化方向没有固定答案。
- 参与生态关系:许多飞行动物传粉或传播种子,但不同伙伴关系需要具体证据,不能把植物多样化归因于单一类群。
研究飞行动物与植物多样性时,应把访问记录、有效花粉转移和植物结实率联系起来。看到昆虫停在花上只是第一步,只有证明它完成传粉并影响繁殖,才能判断生态功能。
飞行案例训练的是证据推理:化石可约束结构与时间,比较解剖揭示同源或趋同,空气动力学检验功能,系统发育判断性状出现和丧失的次数。把这些证据分开再合并,比用单一环境因素讲述必然进步更接近真实的演化研究。
例如羽毛化石能显示结构存在,却不能独自证明它当时用于飞行;骨骼关节和肌肉附着点可限制可能动作,空气动力学实验检验结构能否产生升力,生态环境则说明这种功能是否可能带来收益。多类证据汇合后,起源假说才会更有说服力。