生命演化中的重大转变
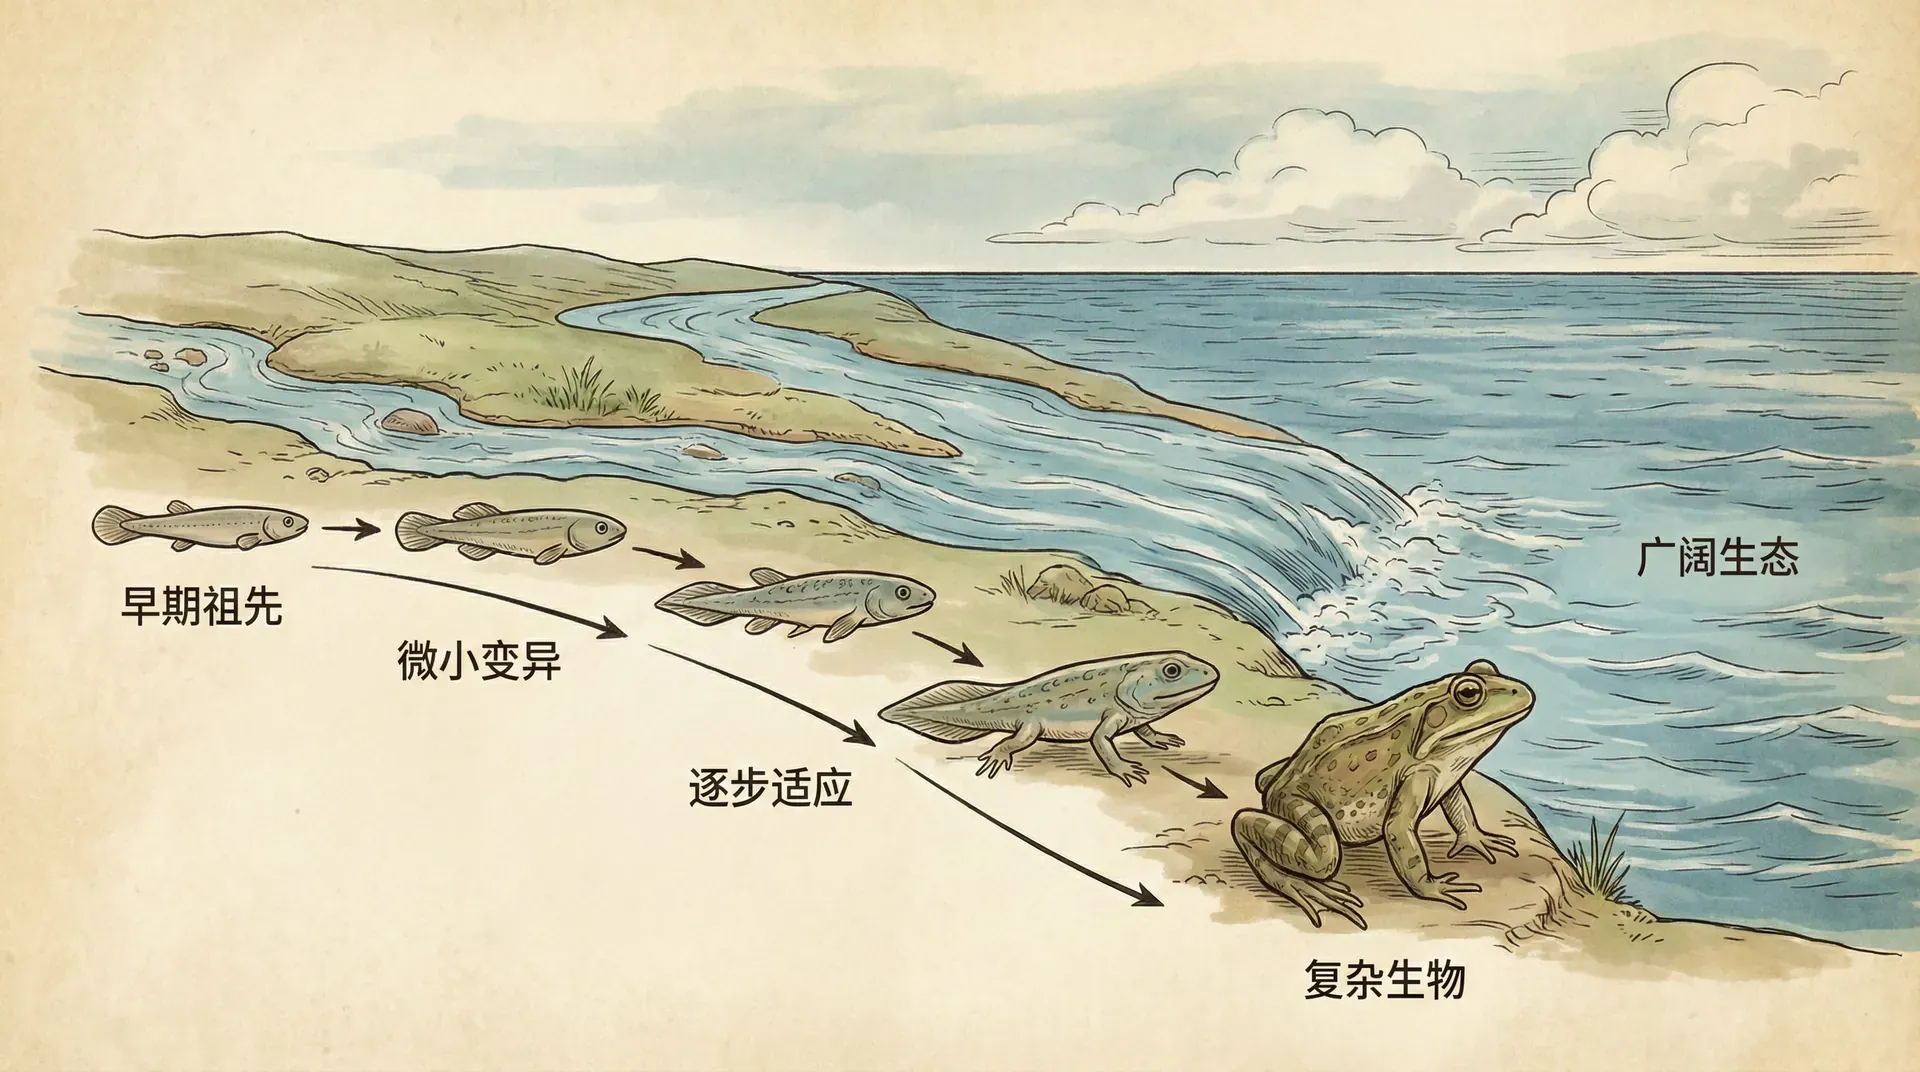
“不积跬步,无以至千里;不积小流,无以成江海。” 生命的演化过程,正如点滴积累汇聚成滔滔江海。每一个微小的变化与关键节点,都推动了生命复杂性的巨大跃升。
生命早期历史留下的直接证据有限,研究者只能结合地球化学、比较基因组和实验模型重建可能过程。“重大转变”不是一条由低级通向高级的阶梯,而是一套分析框架:原先能够独立复制的单元如何组成更高层级的整体,合作如何维持,内部冲突又如何受到限制。
分析重大转变时,可以把叙事拆成四步。先确定低层级单元是什么,再说明它们共同活动带来什么收益;随后找出可能破坏合作的冲突,最后寻找抑制冲突的机制。以多细胞生物为例,细胞分工提高了整体功能,异常增殖却会损害个体,发育调控、细胞死亡和免疫监视共同限制这种冲突。这个框架比“复杂性不断升级”更能产生可检验的问题。
自然选择作用于当时已有的可遗传变异,不会预见未来需要什么结构。某种组织方式能否保留下来,取决于它在特定环境中对复制、存活与繁殖的影响,以及合作单元之间的利益冲突能否被控制。
从简单到复杂的演化历程
20世纪90年代,约翰·梅纳德·史密斯与厄尔什·萨特马里系统讨论了生命史中的重大转变。这一框架关注遗传信息如何传递,以及较低层级单元怎样形成能共同复制的较高层级单元。不同转变的证据强弱和发生路径并不相同,八项划分也不是所有谱系必须依次经过的固定路线。
生命演化的八大转变
下面保留八个常见主题,便于比较每次转变中的合作、分工、信息传递和冲突控制。它们发生在不同谱系与年代,不能连成一条只通向人类的直线:
八个主题的时间顺序也不能简单照搬到任何现生物种。细菌并非“停留”在早期阶段,单细胞真核生物也不是多细胞生物的低级版本;它们都经历了同样长的演化时间。重大转变研究比较的是组织层级与信息传递方式,不给现生类群排列高低。
复制单元组成更大单元
早期复制系统如何获得边界、代谢与稳定遗传仍是开放问题。这里关注的是:分子一旦共同传递,整体收益如何抵消内部复制者的竞争。
独立复制子组成染色体
基因连接在染色体上共同复制,可减少复制单元之间的竞争,也引出重组、分离和整条染色体传递的新问题。
RNA、DNA与蛋白质分工
RNA世界是假说;现代生命以DNA长期储存信息、RNA参与传递和调控、蛋白质承担大量催化功能。具体历史路径仍需实验和比较证据重建。
真核细胞形成
线粒体源自细菌内共生,植物和藻类的质体还涉及后来的内共生事件。细胞核不能简单归入同一路径,真核化还包含宿主谱系、膜系统和细胞骨架的变化。
有性过程与遗传重组
减数分裂、配子融合和重组改变了等位基因组合方式。无性繁殖也会通过突变产生差异,关键区别在于变异如何组合与传递。
多细胞个体形成
细胞黏附、通讯和分工可使细胞群以整体繁殖。多细胞性在不同谱系中多次起源,合作细胞与异常增殖细胞之间的冲突持续存在。
高度社会性形成
部分昆虫和其他动物出现繁殖分工。亲缘关系、生态条件和群体控制共同影响不繁殖个体的劳动怎样维持。
语言与文化传递
人类语言使知识能跨个体和世代累积。文化演化与遗传演化相互影响,但两者的复制机制和时间尺度不同。
人类语言与文化传递适合放在这一框架中讨论,但人类并未“亲自经历”前面每次转变;我们继承了祖先谱系已经形成的细胞和多细胞组织。框架的价值在于比较不同层级的信息与合作机制,而不是把人类设成演化终点。
为什么这些重大转变会反复出现在演化历史中?背后存在一套深刻的挑战与原则:
- 共同问题:合作单元为什么没有被只占收益、不付成本的变异取代?
- 路径问题:复杂变化可以由多个中间阶段形成,但每一步是否有利要靠证据检验,不能预设全部连续且有益。
- 层级问题:选择可以同时作用于基因、细胞、个体或群体,不同层级的利益可能一致,也可能冲突。
这些重大转变,是生命演化故事中最为雄浑壮阔的篇章。它们见证了微观分子的聚集协作,也孕育了宏观世界的丰富多样。理解这些转变,有助于我们把握生命的本质及其演化的深层逻辑。
有性生殖的起源
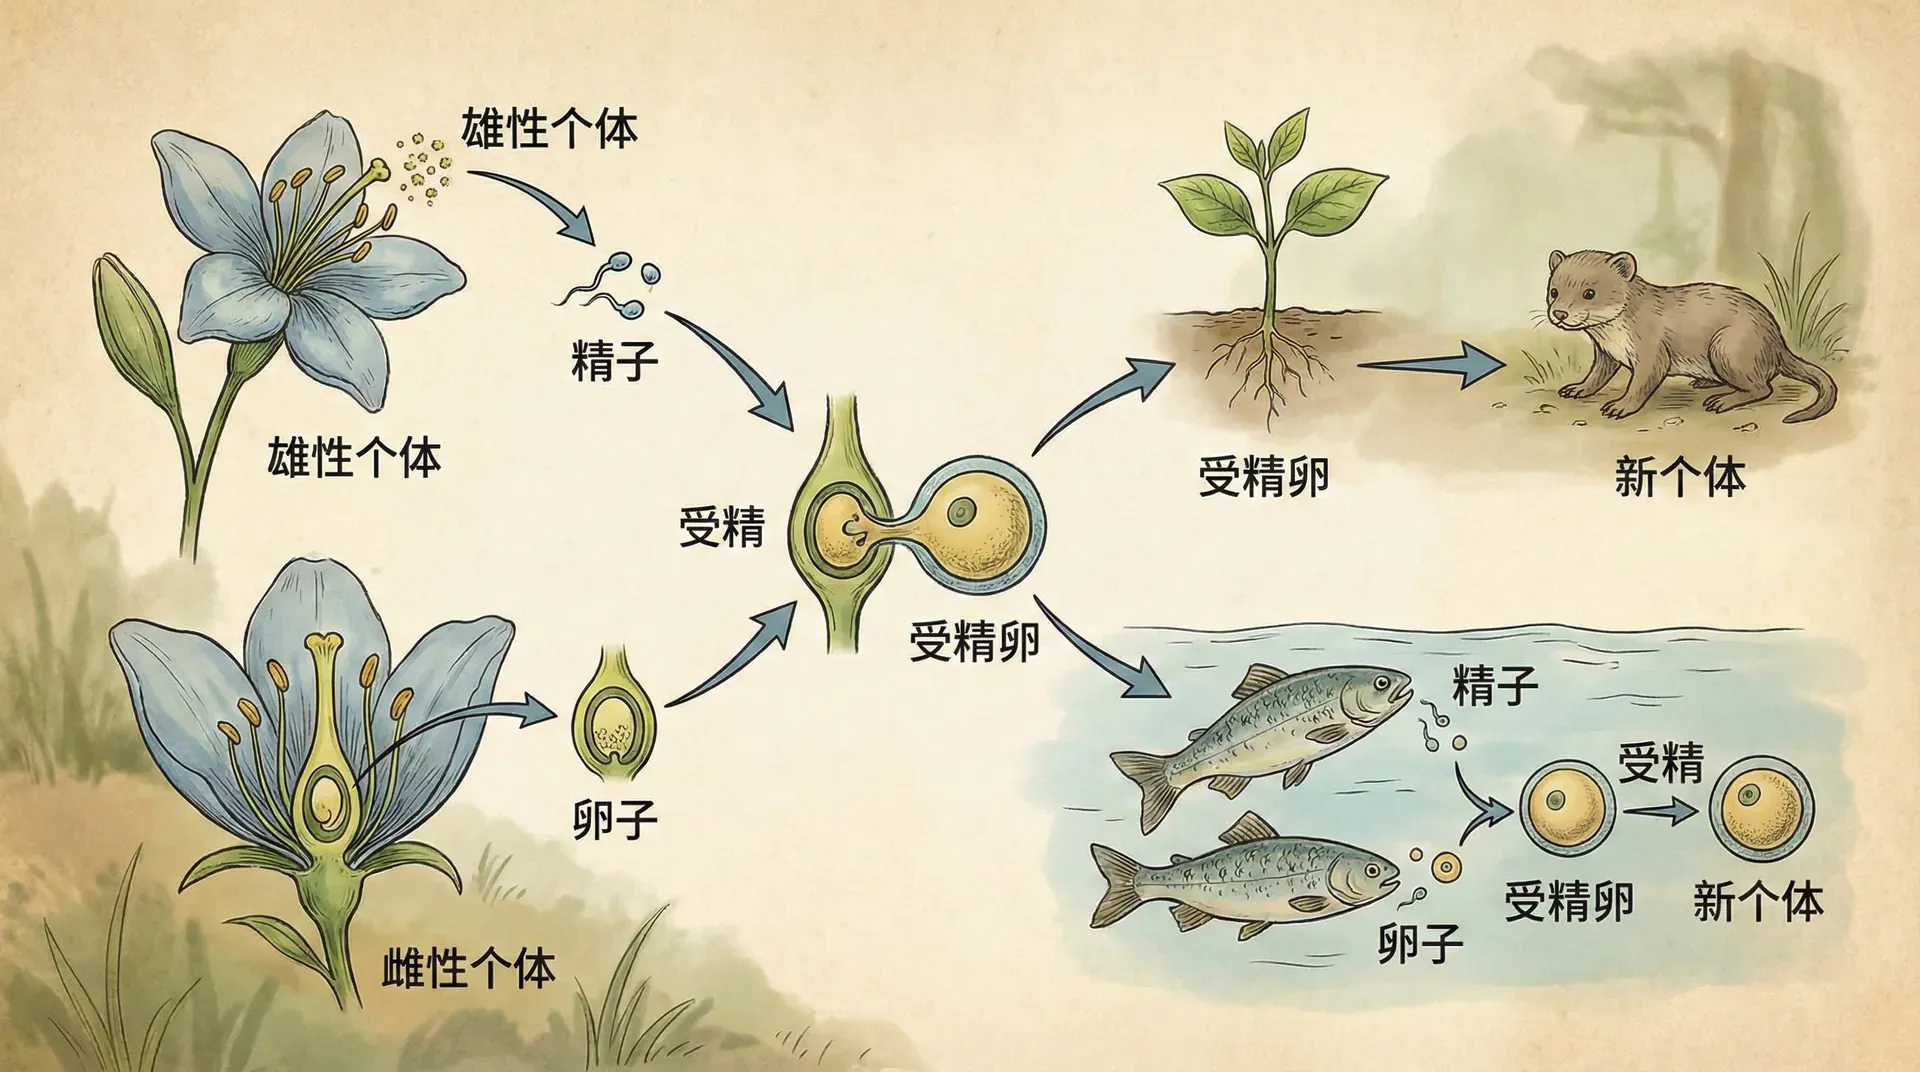
以有性生殖的演化为例,我们可以看到一个生命史中的伟大转折。首先,需要澄清,“性”在生物学语境中,并不仅指交配行为,而是指一种涉及特定细胞周期变化的现象。理解性的演化,关键在于认清细胞如何复制、分裂,以及为何“复制的方式”会对生命系统产生巨大影响。
什么是有性生殖
有性过程包含几个需要区分的环节:染色体重组、减数分裂、配子融合,以及部分谱系中的大小配子分化。现生生物展示了多种组合,但它们不能直接排成一条已经证实的历史顺序;起源路径需要由系统发育和细胞机制共同重建。
这几个环节的功能也不同。重组改变同一条染色体上的等位基因组合,减数分裂改变倍性并产生单倍体细胞,配子融合恢复双倍体,大小配子分化则影响资源投入和运动能力。一个假说可能解释其中一环,却不能自动解释整套有性生殖的起源。
减数分裂通常经过一次DNA复制和两次细胞分裂,使染色体数减半;同源染色体之间的交换会产生新的等位基因组合。配子随后是否融合、何时恢复二倍体,以及单倍体阶段多长,在不同类群中差异很大。
以下梳理无性繁殖与有性繁殖主要流程的异同
有性生殖的演化顺序
有性繁殖并非一蹴而就,而是分阶段逐步形成。部分原生生物(如昆虫肠道中的鞭毛虫)拥有先核内有丝分裂,后减数分裂的周期形态,提示进化的初步为单倍体与双倍体交替周期。此后阶段才发展出配子融合,形成稳定的一步减数分裂(如在孢子虫中所见)。
随着演化,交叉互换(基因重组)与染色体加倍机制完善,从而形成两步减数分裂。最终,配子的大小分化演化出现,产生了精子和卵子这样极端分化的配子,这不仅奠定了动物和植物等高级生命的性别基础,也为后续性别相关现象打下基础。
有性生殖重要演化步骤及其生物例子
基因重组的作用与优势
为什么基因重组是有性繁殖的核心?主要有两个进化动力。
第一,协同突变清除效应。假如突变有协同作用(两个坏突变的损失大于加总值),基因重组能让“坏突变”富集到个别个体上,使其被自然选择迅速剔除,从而降低整个人群的遗传负荷。例如,森林里的橡树、稻田里的水稻,通过基因重组可以更快去除不良突变,获得更强的群体健康度。
页面比较了两种繁殖方式在一组假设参数下的突变负荷分布。重组可能把有害变异重新组合,使选择更有效地去除某些组合,但结果会随种群大小、突变效应和选择强度变化,不能把图中的差异当成所有物种的实测事实。
另一类解释来自宿主与寄生者的共同演化。红皇后假说预测,寄生者频率不断变化时,重组产生的稀有宿主基因组合可能暂时占优。体型和寿命并不能直接决定重组强弱;检验这一假说需要比较寄生压力、繁殖方式和遗传变异。
重组既可能帮助清除有害变异,也可能拆散有利组合。研究者通常比较近缘类群或实验种群,测量遗传负荷与寄生压力,而不是由体型大、寿命长直接推断其“依赖重组”。人工杂交利用的是遗传组合变化,育种结果还取决于选择与环境。
评价“有性为何保留”时,还要区分短期与长期。短期内,无性类型可能因无需寻找配偶而扩张;长期内,寄生者变化和有害突变累积可能改变优势。最有力的研究会在相同生态背景下比较近缘有性与无性群体,并追踪多个世代,而不是只比较两个相距很远的物种。
配子的分化与细胞器冲突
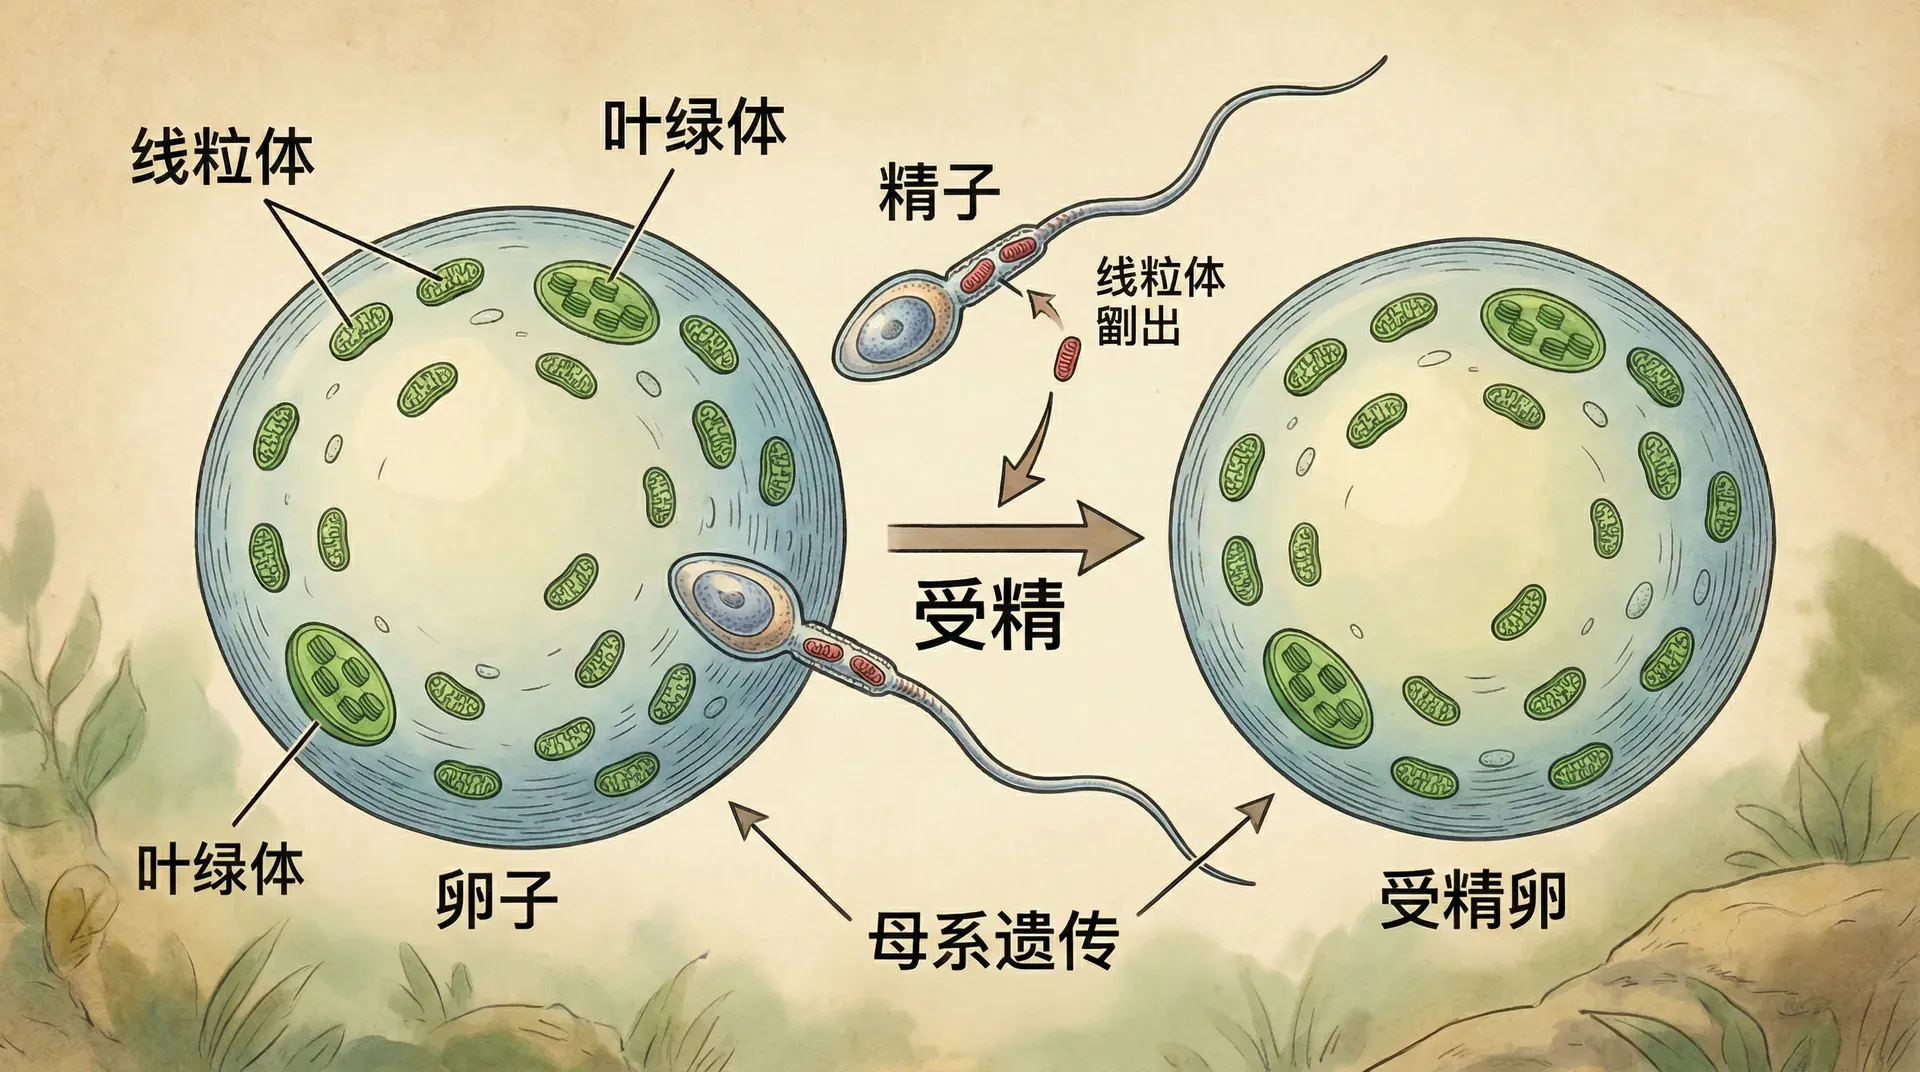
许多生物出现大小不同的配子,但也有等配生物和多种交配型。线粒体或质体常呈单亲遗传,这可减少异质细胞器共存及其潜在冲突;它是配子演化的相关机制之一,不能被写成两性分化的唯一原因。
交配型的数量与配子大小并不是同一个概念。真菌和部分原生生物可以拥有多个甚至数千个交配型,细胞器遗传也有母系、父系、双亲或可变方式;多交配型不会自动造成后代缺失细胞器。
单亲细胞器遗传可能减少异质线粒体或质体之间的竞争,但其起源与维持还受配子大小、细胞识别和清除机制影响。交配型可以多于两种,因此不能从单亲遗传直接推出自然界只有两种性别。
部分原生生物和真菌拥有多个交配型,接合时细胞质和细胞器的传递方式也各不相同。这些系统说明“能与谁交配”、配子大小和细胞器来源需要分别研究。
有性生殖为什么能延续至今
有性过程在真核生物中广泛存在,却伴随寻找配偶、产生雄性或打散有利基因组合等成本。解释其维持需要比较多个机制在不同环境与时间尺度上的作用,而不是寻找一个对所有谱系通用的答案。
逆转的障碍
部分动物类群很少形成长期孤雌谱系,部分植物和无脊椎动物则频繁在有性与无性之间转换。限制因素包括性别决定、基因组印记、减数分裂机制和生态条件,不应使用“高度进化”衡量类群。
让我们看几个例子:
- 鸟类:少数物种可出现孤雌胚胎,但性别组成、孵化率和后代育性常限制长期谱系。
- 哺乳动物:基因组印记要求部分基因具有合适的父源或母源表达状态,构成自然孤雌发育的重要障碍。
- 裸子植物:质体可呈父系遗传,但无性繁殖由体细胞形成,后代会继承母株细胞器;不能据此断言其失去光合作用。
部分孤雌生殖动物需要精子触发卵发育而不纳入其核基因组,另一些则完全不需要精子。它们显示无性繁殖可由多种细胞机制实现。
无性繁殖的短期优势
尽管有上述障碍,无性繁殖一旦成功建立,往往在种群数量增长上表现出巨大的短期优势。很多植物(如蒲公英、甘薯),动物中的部分甲壳类或鱼类,也能长期以无性形式繁衍。
以下信息显示了有性与无性繁殖的子代数量对比(以雌性数量为例):
在一个常用的简化模型里,如果雌雄投入相同、只有雌性直接产生后代且其他条件一致,无性雌性的种群增长率可能接近有性雌性的两倍。这是用来提出问题的“雄性成本”模型;现实中的亲代投入、性比、资源限制和密度制约都会改变结果。
孤雌生殖在部分环境中能带来快速增长和无需寻找配偶的优势,但优势大小取决于繁殖方式与生态条件。它不能直接推出有性谱系更容易灭绝,因为遗传重组、寄生压力、突变负荷和环境波动会在更长时间尺度上改变比较结果。
有性生殖的长期优势
许多真核生物保留有性过程,同时也存在长期无性或以无性为主的谱系。比较谱系年龄时要谨慎:古老无性谱系较难识别,某些被认为严格无性的类群后来发现了基因交换迹象。真正需要解释的是不同机制在什么条件下抵消无性的短期优势。
- 一些鱼、蜥蜴和无脊椎动物形成无性谱系,但谱系年龄与是否存在隐蔽基因交换常有争议。
- 水蚤和蚜虫等可在有性与无性之间周期转换,说明两种方式的收益随季节和环境改变。
这些例外常常与特殊环境、共生关系或其它替代遗传机制(如水平基因转移)相关。
红皇后假说与短期适应
红皇后假说提出,寄生者不断改变基因型时,重组产生的稀有宿主基因组合可能获得暂时优势。该假说有实验和野外支持,也有不符合的系统;它是解释有性维持的一种机制,不是适用于所有物种的单一答案。
遗传负荷的累积与穆勒氏棘轮
穆勒氏棘轮描述有限无性种群中,携带最少有害突变的一类个体因随机漂变消失后,缺少重组将较少突变重新组合起来的过程。棘轮速度受种群大小、突变率和选择强度影响,并非每个无性种群都会以相同速度积累负荷。
- 理论:在有限的无性种群中,携带最少有害突变的一类个体可能因漂变消失;缺少重组时,较低负荷组合不易重新形成。这个过程的速度受种群大小、突变率和选择强度影响。
- 检验:比较有性与无性近缘类群的突变负荷,同时控制谱系年龄、群体大小和基因交换,才能判断棘轮效应。
重组可能帮助选择把有利和有害变异分开,但有性繁殖本身也有成本。判断某一机制是否重要,需要比较有性与无性近缘类群的寄生负担、遗传负荷、种群大小和环境变化,而不能由理论模型直接宣布长期结局。
总结
重大转变可以用三个问题串联:哪些单元开始共同复制?合作产生了什么收益?什么机制限制内部冲突?有性过程主要重组已有遗传信息;内共生、多细胞化和社会性则分别涉及细胞或个体组成更高层级单位。
部分演化阶段带来了全新的信息传递方式,比如从RNA到DNA和蛋白质、表观遗传的出现、以及语言让人类获得文化传承。但有性生殖并未引入全新遗传介质,更多是通过重组提升了遗传信息表达与变异的途径。
一些重大转变形成后较少完全逆转,另一些却在演化树上多次出现和丧失。单亲细胞器遗传、配子差异和生殖分工都可用于研究冲突控制,但每项解释都有适用范围,需要与替代假说比较。
“信息”在遗传、发育和文化研究中含义不同,不能用固定次数概括其全部历史。更稳妥的结论是:DNA复制与表达、表观调控、重组以及文化传递改变了信息保存和传播的方式,但它们的起源、层级与机制并不相同。