细胞的繁衍
人的个体发育从精子与卵细胞融合形成受精卵开始。两种配子分别带来一套染色体,细胞质和细胞器则主要由卵细胞提供。受精之后,细胞分裂增加数量,细胞分化建立组织,形态发生把组织安排到合适位置,三种过程彼此协调。
DNA复制具有校对和修复机制,却不是一丝不差;发育信号也不是预先写好的施工指令,而是细胞之间持续反馈的结果。遗传信息、母体环境和随机波动共同影响发育,多数偏差会被检查点或细胞死亡处理,少数则可能造成变异或疾病。
精子与卵子
显微镜下的发现
十七世纪七十年代,研究者借助显微镜描述了精液中能够运动的精子。早期观察者并不知道它们与卵细胞各自承担什么作用,甚至提出过精子中藏着微型个体等错误解释。显微镜提供了新对象,受精机制仍需后续实验建立。
十九世纪,冯·贝尔在哺乳动物卵巢和输卵管中观察到卵细胞。哺乳动物卵体积很小、位于体内,确实比鸟卵难以发现;鸟蛋中肉眼可见的绝大部分则是卵黄、卵白和壳,不等同于一个巨大细胞的全部。
精子和卵细胞都是配子。对人类而言,两者通常各含23条染色体,融合后恢复二倍体数目。受精并不保证形成可继续发育的胚胎,还要经历染色体分配、基因激活、着床等多个检查点。
大小悬殊的两个细胞
精子高度特化于移动和递送父源染色体,包含头部、连接段和鞭毛;卵细胞体积大,含有丰富细胞质、细胞器、蛋白质和RNA。说精子只是“细胞核加尾巴”会忽略膜、顶体、线粒体和运动装置。
大小比较要说明测量对象。卵细胞通常按直径计,精子则有头部宽度、头部长度和总长度多个尺度;把精子全长与卵直径直接相除没有统一生物学意义。
图中的直径比例适合帮助建立尺度感,但不能由此推断遗传贡献。哺乳动物早期胚胎主要依靠卵内物质和生殖道环境,着床后再通过母体组织逐步建立物质交换;卵细胞储存的不只是“营养”,还包括调控最初几轮发育的分子。
精子与卵细胞各提供一套核染色体,所以常染色体序列来源大体各半;贡献并非在所有层面完全相等。线粒体DNA通常来自母亲,卵细胞提供大部分细胞质,父母来源还可通过基因组印记产生不同效应。孟德尔互交实验也不能单独证明细胞质遗传不存在。
从一个细胞到完整生命
受精卵经过卵裂形成多个细胞,但早期分裂并不总伴随胚胎总体积同步增大。随后细胞移动、改变形状并调节基因表达,建立身体轴和组织层次。数量增长只是发育的一部分。
原肠胚形成时,脊椎动物建立外胚层、中胚层和内胚层。胚层描述细胞的发育来源,不是三种固定建筑材料;每层都会经过诱导、迁移和进一步分化。
- 外胚层:形成表皮和神经系统等结构。
- 中胚层:形成肌肉、骨骼、血液、肾和生殖系统的许多部分。
- 内胚层:形成消化道与呼吸道上皮,并参与肝、胰等器官形成。
同一器官常包含来自不同胚层的细胞,例如肠道上皮来自内胚层,平滑肌和结缔组织多来自中胚层。追踪胚层有助于理解发育来源,却不能直接预测成熟器官的全部功能。
童第周利用两栖类和鱼类胚胎研究细胞核与细胞质在发育中的关系,贝时璋等学者也推动了中国实验生物学。评价历史贡献时应说明具体材料、方法与问题,避免用“首次揭示分化”之类宽泛称号替代实验内容。
人类胚胎早期具有咽弓和咽囊,它们与其他脊椎动物结构同源,但不是能呼吸的“鱼鳃”。这些组织后来参与形成颌面、耳部和颈部结构。胚胎也有明显尾部,随后相对缩短并发生组织重塑。个体发育保留演化线索,却不会按顺序重演成体祖先。
同卵双胎来自一个受精卵在早期发育的不同阶段分成两个胚胎,不一定发生在第一次分裂后。两者的基因组高度相似,却可能因新突变、表观调控、胎盘环境和生活经历产生差异;“完全相同”并不准确。
细胞分裂的精密机制
细胞分裂要协调DNA复制、染色体分离和细胞质分开。所谓精确不是零错误,而是依靠检查点、修复和异常细胞清除把错误率降到可维持组织的水平。
真核细胞的DNA与蛋白质组成染色质,分裂时凝缩成可辨认染色体。细胞核是基因组储存和转录的重要场所,却不是独立发号施令的中心;细胞膜、细胞质、细胞器和外界信号共同调节行为,有些成熟细胞甚至没有细胞核。
染色体染色让研究者能够追踪复制后的姐妹染色单体怎样排列和分开。现代成像还可观察纺锤体、着丝粒和检查点蛋白,显示分裂是一组连续并相互监控的事件,而非固定不变的四张静态图片。
人类大多数有核体细胞通常有46条染色体。细胞在S期复制DNA后,染色体数按着丝粒计仍为46,但每条含两条姐妹染色单体;后期姐妹分离后,各子细胞最终得到46条。区分DNA含量、染色单体数和染色体数十分关键。
有丝分裂

有丝分裂把复制后的染色体分配到两个子细胞,常用于生长、更新和无性繁殖。子细胞通常与母细胞高度相似,但仍可能出现新突变或染色体分配错误。
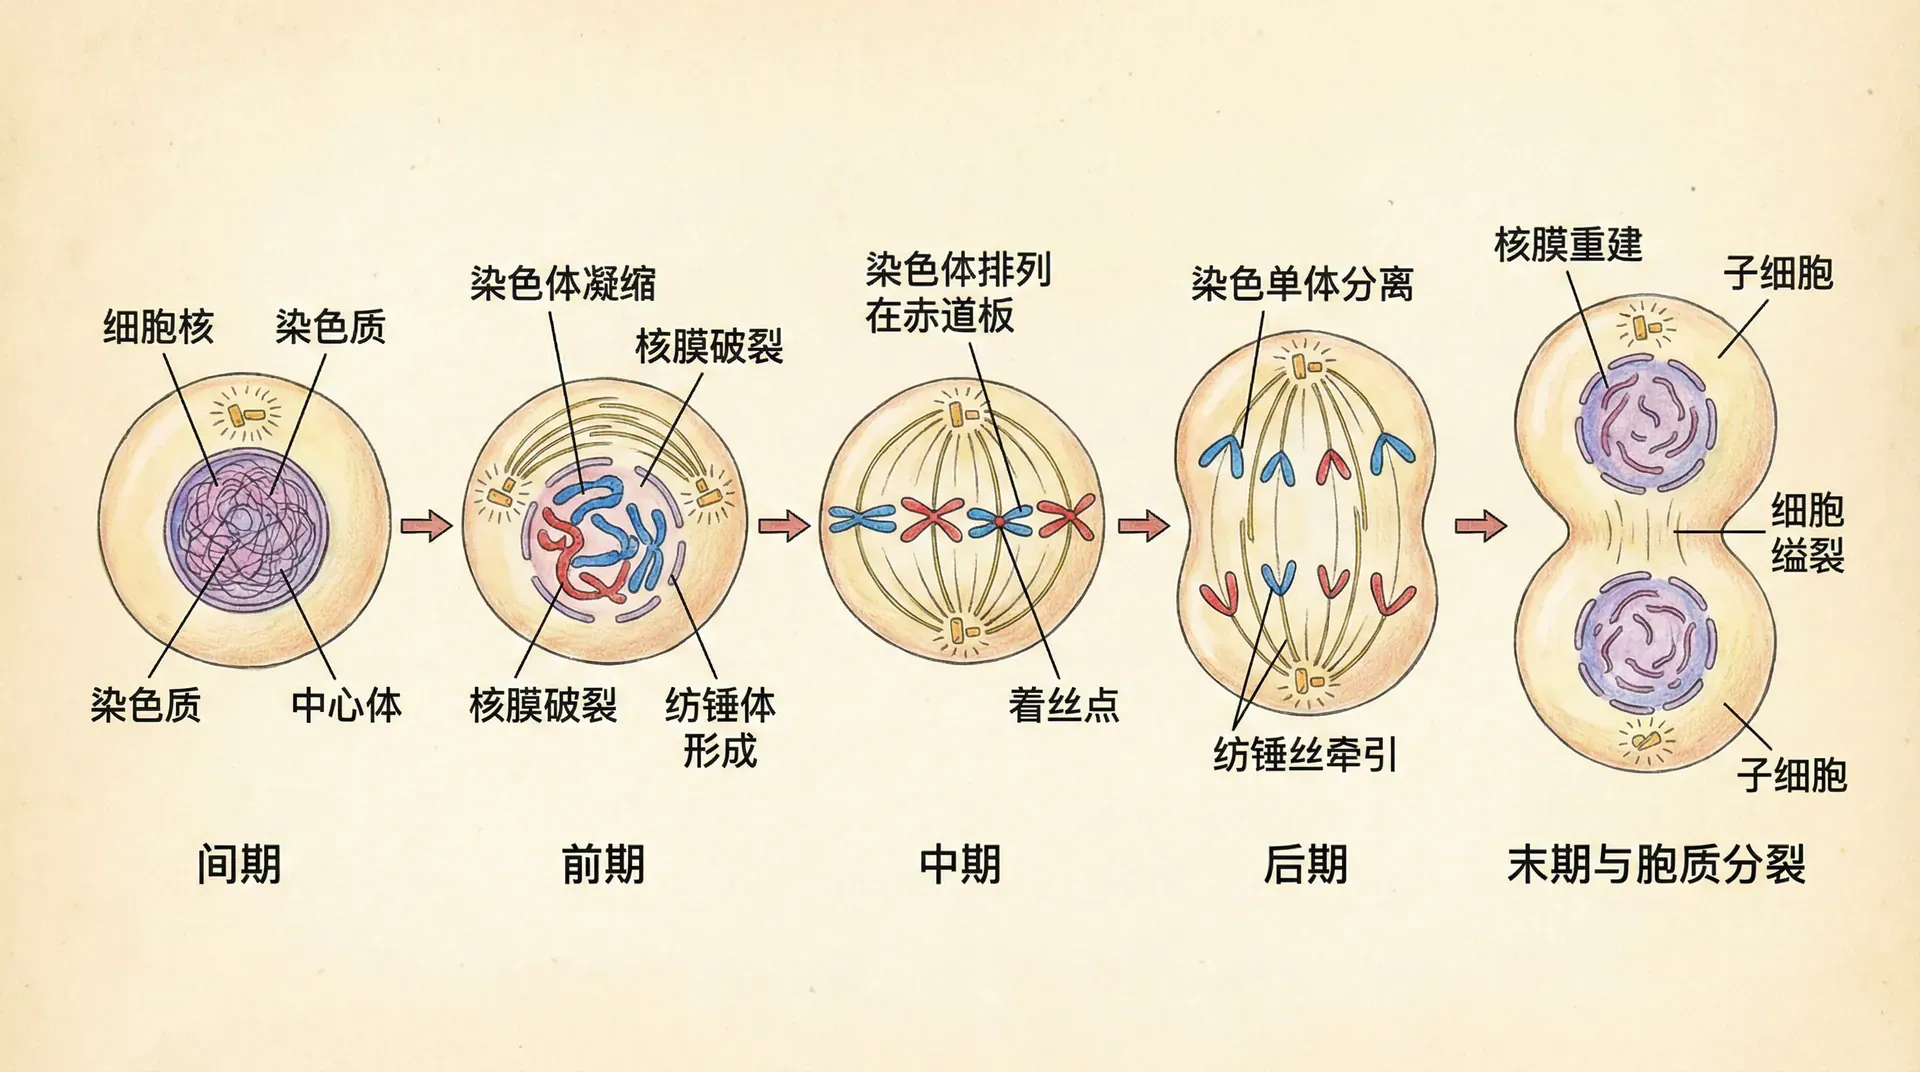
间期包括G1、S和G2等阶段,细胞进行代谢、复制DNA并为分裂准备。动物细胞的中心体也在细胞周期中复制;高等植物没有典型中心粒,仍能组织纺锤体,因此不能把中心体写成所有真核细胞分裂的共同开关。
前期到前中期,复制后的染色体逐渐凝缩,纺锤体形成,核膜解体后微管接触动粒。
中期,姐妹染色单体的动粒与相对两极连接,染色体排列在赤道面附近;检查点会阻止连接错误的细胞过早进入后期。
后期,姐妹染色单体分离并移向两极,同时纺锤体长度和细胞形状改变。
末期,染色体去凝缩,核膜重新形成;胞质分裂随后把动物细胞缢裂,植物细胞则形成细胞板。
DNA在分裂前的S期复制,每条染色体形成两条姐妹染色单体。有丝分裂的核心任务是把姐妹染色单体准确分开;胞质分裂再把细胞内容物分配给两个子细胞。
各个阶段的细节
各阶段名称帮助观察,但真实过程连续发生。判断一幅图属于哪个阶段,应结合染色体凝缩、核膜状态、动粒连接和姐妹染色单体位置,而不是只看“排得整不整齐”。
皮肤、肠上皮和骨髓等组织会不断生成新细胞,保障我们身体的正常更新和修复。不过,不同组织的细胞分裂速度、周期长短和具体调控方式差异很大。例如,消化道上皮细胞可能几天就会更新一次,而皮肤也需要不断替换脱落的角质细胞。
而与此同时,神经细胞、肌细胞等分化成熟后通常终生不再分裂,部分干细胞则可能长期处于静止或非分裂的状态。正因如此,我们无法简单用“成年人每秒有多少细胞分裂”这类平均数来准确描述全身不同细胞的分裂和更新状况。
减数分裂
染色体数量减半的意义
精子和卵细胞的单倍体染色体数使受精后恢复二倍体。减数分裂发生在生殖系前体细胞中,而不是成熟精子或卵细胞再次分裂。动物、植物和真菌形成单倍体细胞的具体生活史并不相同。
以人类为例,我们的体细胞含有46条染色体,但精子和卵子各只有23条。这种现象最初让研究者们感到困惑,但很快就明白了其中的道理。
如果配子保持二倍体,受精确会使染色体组数增加;减数分裂与受精交替,使有性生殖生活史中的倍性能够循环。不过自然界也存在多倍体和单倍体阶段占优势的生物,二倍体并非唯一正常方案。
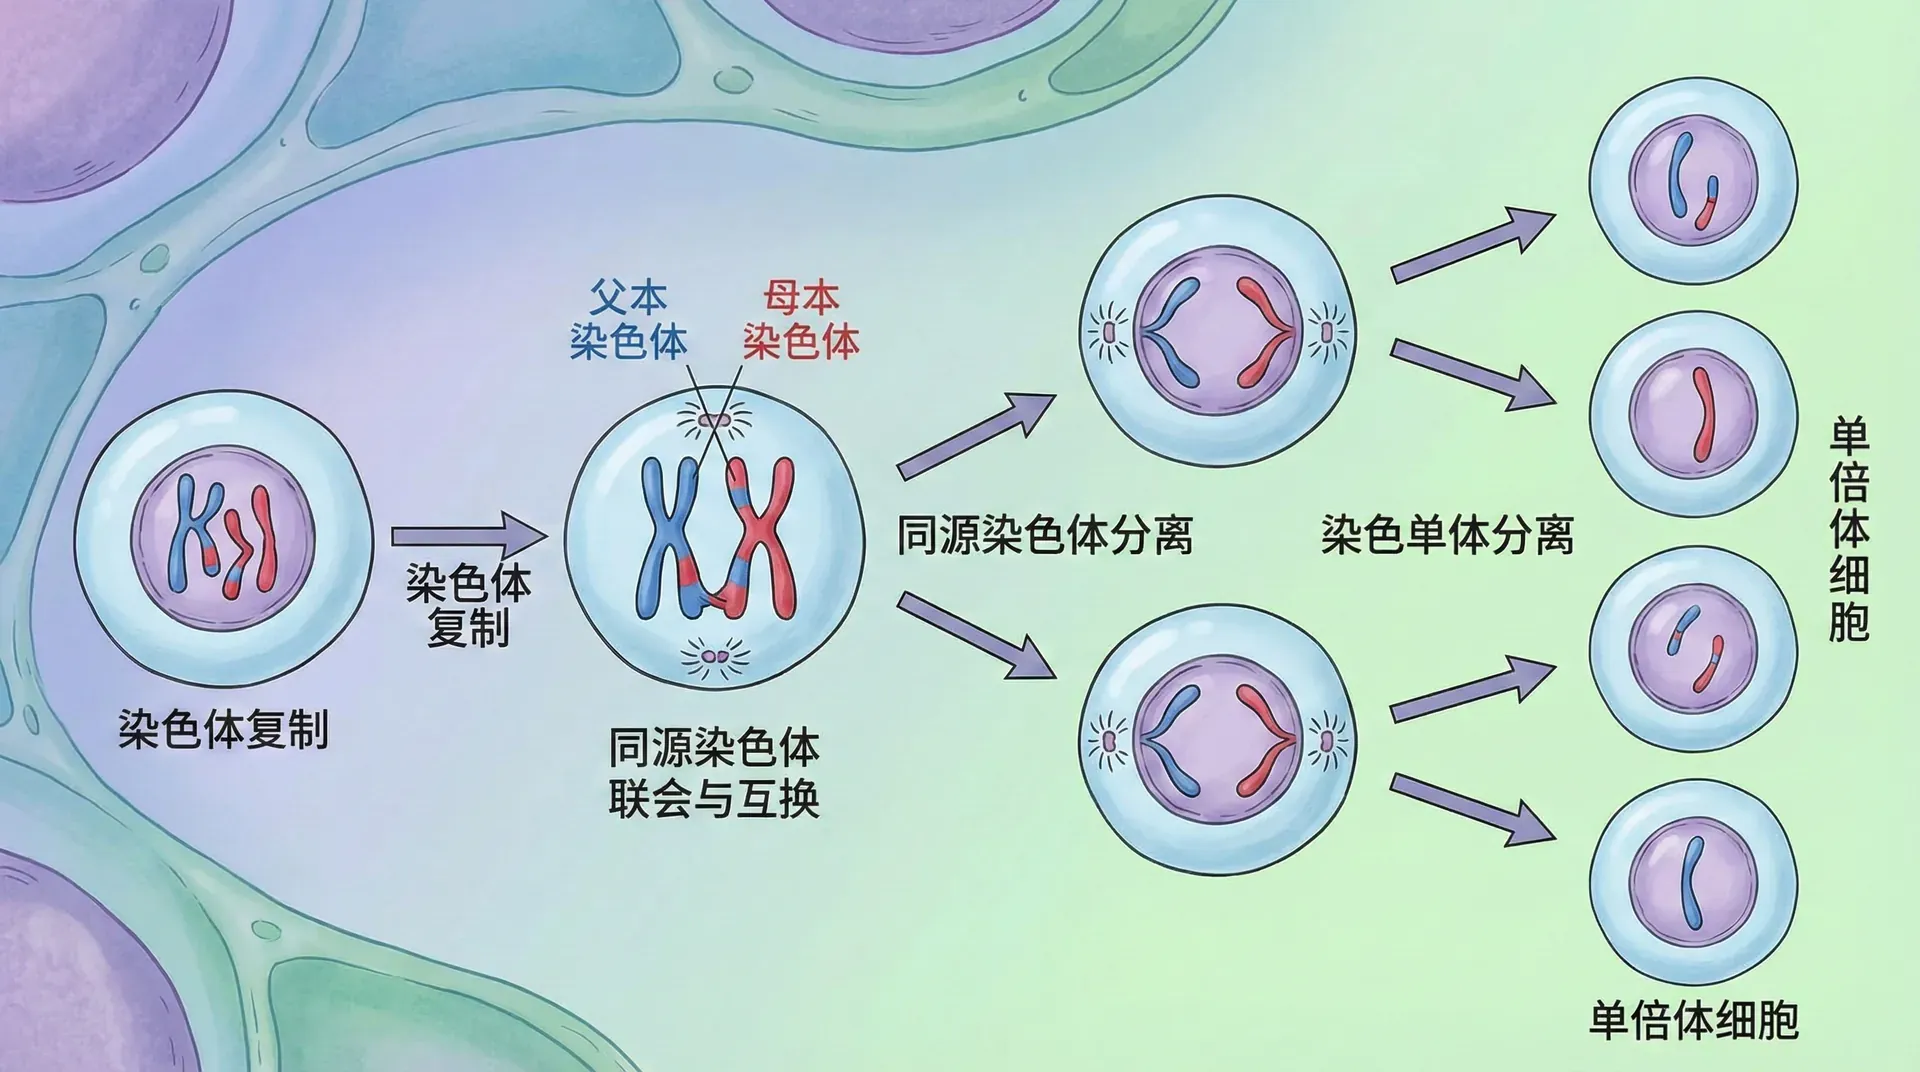
减数分裂包含一次DNA复制和两次核分裂。第一次分离同源染色体,使染色体组数减半;第二次分离姐妹染色单体,过程与有丝分裂部分相似。
在人类中,精子和卵细胞通常各含23条染色体,受精卵恢复46条。非整倍体配子也会偶尔产生,很多受精后不能继续发育,少数可造成染色体疾病。
不同生物的染色体数量差异很大。水稻有24条染色体(12对),大熊猫有42条染色体(21对),而人类有46条染色体(23对)。有趣的是,染色体数量的多少与生物的复杂程度并没有直接关系,一些植物的染色体数量甚至比人类还要多。
遗传物质的随机组合
减数分裂通过同源染色体的独立分配和交换产生新组合。遗传多样性还来自随机受精、已有等位基因差异和新突变,因此减数分裂不是唯一来源。
每对同源染色体一条来自母源、一条来自父源,但经过上一代减数分裂中的交换,每条本身已经是更早祖先片段的组合。把整条染色体简单称为“父亲的”或“母亲的”只对当前个体的直接来源成立。
减数第一次分裂时,各同源对在纺锤体上的取向近似独立。三对染色体的简化模型可得到2³种组合,但连锁、交换和分离偏倚会使真实配子不只是整条染色体的八种拼法。
人类23对染色体仅按独立分配计算,每位亲本可形成约2²³种整条染色体组合。交换会在一条染色体内部重新组合片段,使可能性远高于这个下限。
兄弟姐妹的基因组组合通常不同,但外貌和行为还受发育及环境影响。同卵双胎也会因体细胞突变和生活经历产生差异,不能把“性格不同”直接归因于染色体抽签。
有丝分裂与减数分裂可以从复制次数、分离对象和生物学结果比较:
染色体与遗传的关系
基因在染色体上的分布
孟德尔的遗传因子与细胞学家观察到的染色体行为在二十世纪初汇合。萨顿和博韦里等人提出染色体遗传学说,摩尔根学派随后用连锁与交换实验进一步检验基因在染色体上的排列。
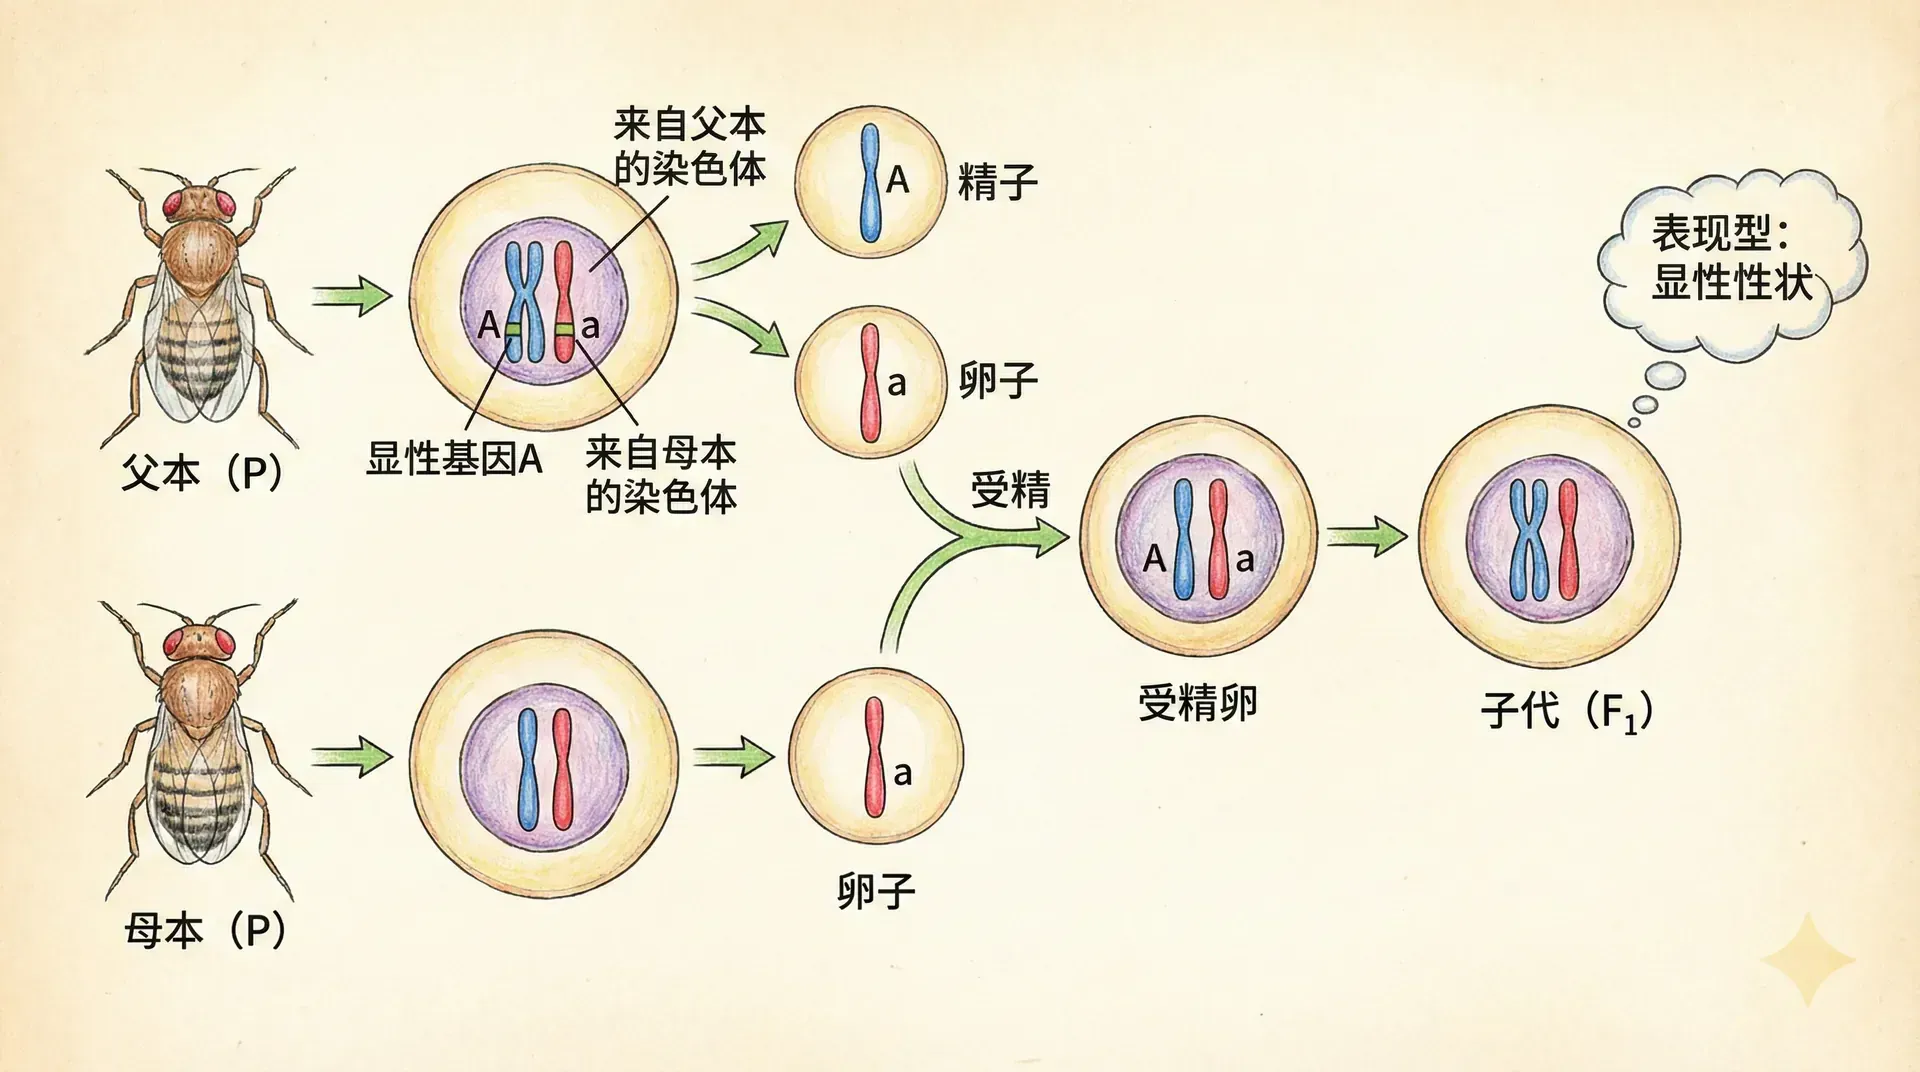
同源染色体在减数分裂中成对并分离,与等位基因分离的规律相符。这个对应关系提供了机制解释,但基因位置仍需连锁、突变和后来分子实验确认。
孟德尔研究豌豆花色时常用紫花与白花作例子。若紫花等位基因对观察到的白花等位基因完全显性,F1可表现紫花,F2在理想单基因模型中接近3∶1;实际计数会有抽样偏差。
一个二倍体植株在该基因座有两份等位基因,分别位于一对同源染色体的对应位置。形成配子时,同源染色体分开,使每个配子通常只获得一份。
染色体遗传学说把等位基因分离与同源染色体分离联系起来。不同基因只有在不连锁或距离足够远时才近似独立组合;位于同一染色体上的基因会表现连锁,并可能被交换打破。
孟德尔定律的染色体解释
用 P 表示紫花显性等位基因、p 表示白花等位基因,可以把完全显性模型写得更清楚。符号表示等位基因,不表示基因本身有强弱。
紫花植株可能是 PP 或 Pp,白花植株在这个简化模型中为 pp。三种基因型都位于同一基因座,表型关系还依赖遗传背景和环境。
Pp 植株形成配子时,两种等位基因随同源染色体分离,理论上各占一半。这个比例来自大量减数分裂事件,单个个体产生的有限配子会有随机波动。
Pp 与 Pp 杂交时,父母各产生P和p两类配子。随机受精后的理论基因型比例为1 PP∶2 Pp∶1 pp。
在完全显性且没有其他影响的条件下,PP和Pp表现为紫花,pp表现为白花,于是理论表型比例接近3∶1。潘尼特方格列出概率,不保证四个后代恰好各占一格。
用表格整理四种配子组合,可以更清楚地看到每种后代基因型怎样产生:
四个格子表示四种等概率受精组合,其中三种在完全显性模型中呈紫花。样本量越大,观察比例通常越接近理论值;偏离本身不一定说明遗传规律失效。
自由组合适用于位于不同染色体或同一染色体上相距很远的基因。连锁基因的组合频率受交换距离影响,这正是后续建立遗传图谱的依据。
精子和卵细胞对核基因组各提供一套染色体,但细胞质、线粒体和早期调控物质主要来自卵细胞。理解“染色体各一半”与“全部生物学贡献完全相等”的差别,可以避免把简化模型写成绝对结论。
有丝分裂维持细胞谱系,减数分裂和受精重排世代间的遗传组合。稳定与变化并存:复制、修复和检查点降低错误,重组、独立分配和突变又持续产生差异。
细胞分裂把分子层面的DNA行为与个体发育、遗传和演化连接起来。能够区分复制、分离、重组与表达之后,许多看似孤立的遗传比例便能从同一机制推导出来。