生命从哪里来

看到种子萌发、鸟卵孵化或婴儿出生,人们很容易形成一个直观认识:在日常可观察的尺度上,新个体来自原有的生命系统。亲代提供细胞和遗传信息,环境则为发育提供物质与条件。这个规律解释了生命怎样延续,却还没有回答地球上最早的生命怎样出现。
生命起源包含两个容易混淆的问题。一个是腐肉上的蛆、肉汤里的微生物从哪里来,另一个是早期地球上的非生命化学过程如何逐步形成能够复制和演化的系统。雷迪、斯帕兰扎尼和巴斯德检验的是第一个问题;第二个问题属于化学演化研究,至今仍有多种假说在接受实验检验。
在显微镜和培养技术出现以前,昆虫卵、微生物细胞与孢子很难被直接追踪。人们能够看见腐败前后的差别,却看不见传播和繁殖发生的过程,于是“生命由泥土、食物或水自行产生”曾显得颇有解释力。科学进步的关键,是把看不见的来源转化成可以控制和比较的条件。
古人眼中的生命起源
自然发生说为何能长期流行,可以从当时的观察条件理解。下表列出的现象都有一个共同点:生命来源存在,但体积很小、发生在夜间,或被环境遮蔽,观察者只看到了最后出现的幼体和菌落。

以水果上的果蝇为例,成虫留下的卵很小,早期发育也不容易察觉。几天后幼虫大量出现时,观察者如果没有连续记录,自然会把腐烂与“生虫”直接连在一起。相关性很明显,真正的来源却被遗漏了。
相同的认知困难也出现在微生物上。空气、器具、原料和手部都可能携带细胞或孢子,营养丰富的材料一旦被接种,微小种群就能扩增到肉眼可见。只有把接触途径分别阻断,才能判断变化来自材料本身还是外界污染。
古代文献中的化生记述应放回当时的知识条件中理解。它们保存了对季节、腐败和生物出现之间关系的观察,只是缺少追踪微小繁殖体的工具。科学史的价值不在于嘲笑旧解释,而在于看清新的测量方法怎样改变了可提出的问题。
自然发生说主张现成的复杂生物或微生物能在普通条件下直接由腐肉、泥水等产生。它不同于现代生命起源研究;后者讨论的是早期地球上经历漫长时间的化学演化,而不是今天一瓶肉汤里突然出现完整细胞。
中国古代的理解与经验
中国古代农业积累了关于播种、繁殖和发育的大量经验。“种瓜得瓜,种豆得豆”概括了亲代与后代的连续性,家蚕饲养、作物留种和家畜繁育也都依赖这种认识。对于来源难以察觉的小虫、霉斑和杂草,人们则可能采用不同的解释框架。
然而,对于突然出现、难以溯源的小生物,古人同样心存疑问。例如:
- 田间杂草:土壤种子库能保存大量休眠种子,翻耕、降雨和温度变化会触发萌发。
- 蝗虫与田鼠:迁入、隐蔽巢穴和快速繁殖会让种群看似突然出现。
- 腌制食品上的虫或霉斑:原料、容器和空气都可能带入昆虫卵或微生物,盐度、酸度和温度决定哪些种类能够生长。
这些例子说明,可靠解释需要连续观察,也需要把传播途径、环境条件和繁殖过程分开。看见生物与腐败同时出现,只能不等于确定了谁导致谁;增加遮挡、灭菌和对照以后,原本隐蔽的过程才会显现。
科学家的探索之路
十七世纪以后,研究者开始把自然史观察与可重复的处理条件结合起来。他们不再只比较“有生命”和“无生命”的结果,而是追问苍蝇能否接触、空气能否进入、尘粒能否落入以及加热是否充分。每一个条件都对应一个可以检验的解释。
这种方法并不保证一次实验就得到最终答案。容器是否真正密闭、加热是否杀死耐受性孢子、观察指标能否检出少量细胞,都会影响结果。实验科学的力量来自对这些限制的公开讨论,以及其他研究者能够改变条件后重复检验。
雷迪的纱布实验

在1668年,意大利医生兼诗人雷迪(Redi)对“腐肉生蛆”的广泛说法产生了质疑。他细致地观察到:腐肉不仅会生蛆,还常常有苍蝇在附近飞舞。雷迪由此推断:或许那些出现的蛆虫其实与苍蝇本身有某种联系,而不是从腐肉中凭空诞生。
他为此设计了一个著名的对照实验:
开放容器中,苍蝇能直接在肉上产卵;纱布覆盖后,气味仍可扩散,但成虫不能接触肉块,卵或幼虫可出现在纱布表面而不是肉上。肉在两组中都可能腐败,因此蛆的出现不能归因于腐肉本身。这个设计把“空气接触”和“苍蝇接触”区分开来。
雷迪的工作是早期对照实验的代表之一。它没有一次性解决所有尺度上的自然发生争论,却清楚地表明:当一种生命来源能够被拦截和追踪时,就不必诉诸物质自行变成生物的解释。后来的实验把同样的思路推进到显微生物。
斯帕兰扎尼的密封瓶实验
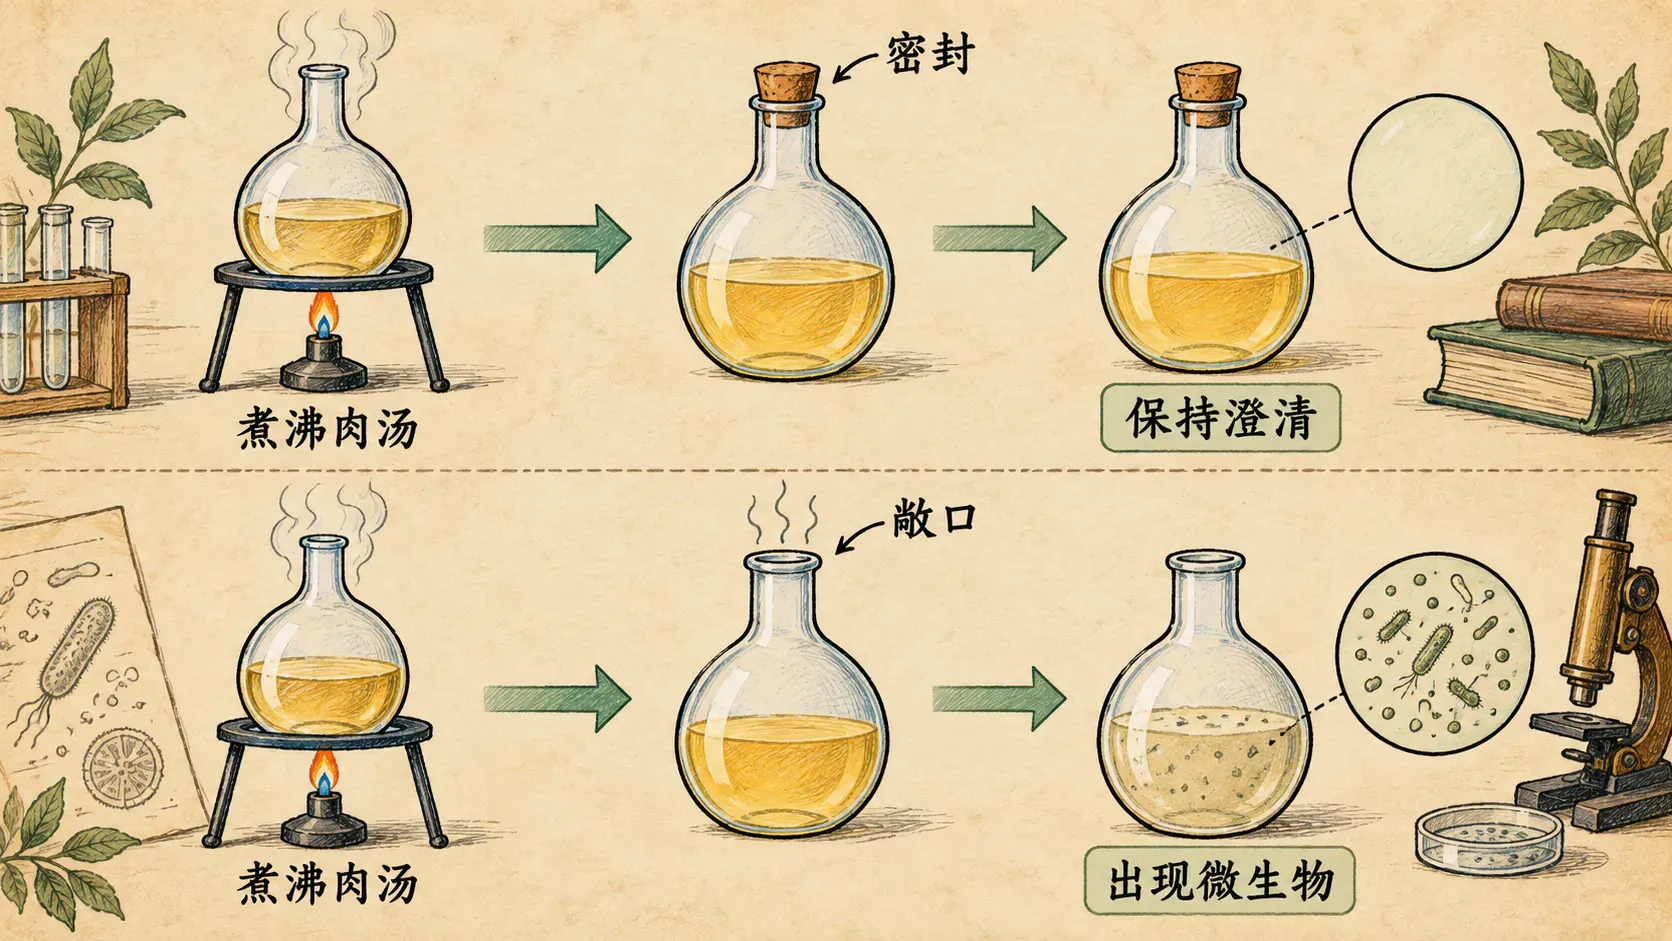
列文虎克在十七世纪七十年代用自制显微镜观察到细菌和原生生物,使肉眼之外的生命成为可研究对象。新的发现也带来新的争论:有人认为肉眼动物来自亲代,却仍相信微生物能在肉汤中自行形成。
十八世纪,斯帕兰扎尼比较了充分加热后封闭与暴露的肉汤。实验的基本逻辑包括三个环节:先降低原有微生物数量,再控制外界能否进入,最后持续观察浑浊或显微生物的出现。
- 将肉汤加热,并记录加热时间与强度。
- 一部分容器封闭,另一部分暴露于环境。
- 在相同温度和观察时间下比较两组。
实验数据:
反对者认为封闭容器同时排除了空气,因而无法区分“缺少空气”与“缺少微生物”这两种解释。这个质疑推动了更巧妙的装置设计:既让空气交换,又尽量阻止尘粒和微生物接触培养液。
巴斯德的鹅颈瓶实验
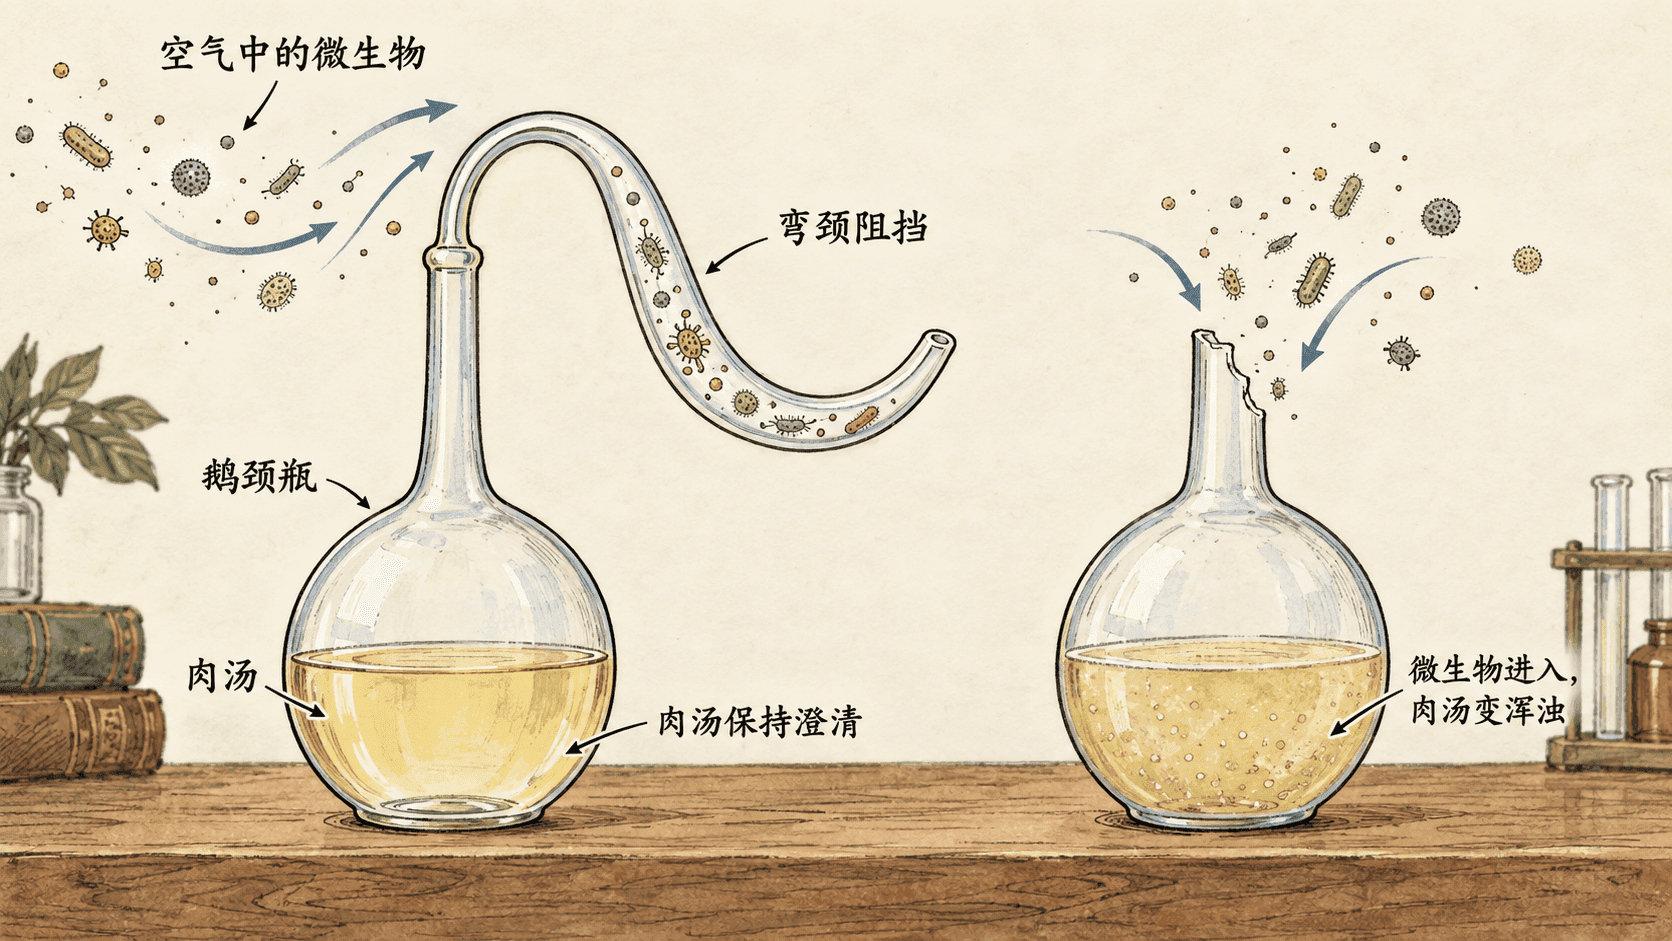
十九世纪六十年代,巴斯德使用弯曲瓶颈的烧瓶研究肉汤污染。这个实验成为争论中的关键证据,因为它把空气通入与尘粒沉降分开控制。不过,科学结论并非由一次演示宣布结束,而是与灭菌、培养和微生物传播的后续研究共同建立。
- 肉汤在瓶内被加热,尽可能杀死已有的营养细胞和孢子。
- 弯曲瓶颈允许气体交换,却使许多含微生物的尘粒沉积在弯道中。
- 保持瓶颈完整并避免肉汤接触弯道沉积物时,可长期观察培养液是否出现生长。
实验结果展示为:
鹅颈瓶实验直观地说明:不是空气的“活力”导致了生命的出现,而是空气中携带的真实微生物落入肉汤繁殖所致。
鹅颈瓶实验支持的结论有明确边界:普通肉汤中的微生物来自已有微生物的污染和繁殖。它否定的是日常条件下的微生物自然发生,不能直接重现或排除数十亿年前早期地球上的化学演化。
实验数据告诉我们什么
微生物生长对比
开放与封闭条件的变化可以用一组预设观察值表示。图中的数值用于帮助读取接种、繁殖和检出限之间的关系,并不代表巴斯德实验留下了按天计数的统一数据。真实结果会随培养基、温度、加热强度和环境微生物负荷而改变。
读取这组数据时,应先确认纵轴是菌落数、浑浊度还是相对数量。不同指标不能直接互换,但都可以呈现三个环节:早期数量低于检出水平,随后进入较快增长,最后因营养、空间或代谢产物限制而放缓。
- 初期读数较低,可能表示外界接种量少,也可能表示微生物仍在适应培养条件。
- 中期数值上升,反映已经进入培养液的细胞开始增殖。
- 后期接近平台,说明净增长率下降,不代表所有细胞都停止活动。
开放组出现增长,只能说明在这组设定中存在可进入并繁殖的微生物。要把变化归因于空气中的尘粒,还需要无菌操作对照、不同开口处理和重复实验。
封闭组显示为零,应理解为在给定检测方法和观察期内未检出增长。只有当起始材料经过充分灭菌、容器密封可靠且没有耐热孢子残留时,封闭才能有效阻断新的接种;“未检出”也不等同于绝对不存在任何细胞。
肉汤是否澄清可以提供直观线索,显微观察、平板培养和分子检测则回答不同层面的问题。多个指标一致,并且处理组之间只有接触途径不同,结论才更稳固。
食品保存利用的是同一套过程观:巴氏处理降低初始微生物负荷,密封减少再次污染,低温减慢许多微生物的生长。任何单一措施都不是永久无菌保证,因此保质期还取决于包装完整性、储存温度和食品本身的酸度、水分等条件。
这组比较真正训练的是证据推理:观察到增长并不足以说明来源,必须追踪进入途径;观察不到增长也要说明检出限和操作条件。这样的表述比“开放必然有菌、密封永远无菌”更接近实验科学。
三个关键实验的对比
三个经典实验可以按它们排除的替代解释进行比较:
三项研究并非简单重复。雷迪处理的是肉眼动物,斯帕兰扎尼把问题推进到微生物,巴斯德则回应了“封闭瓶缺少空气”的反驳。科学证据往往这样累积:后一个实验保留前一个实验的核心观察,同时专门处理尚未排除的解释。
对照实验要让比较组尽可能只在目标条件上不同,还要记录重复、检测方法和可能的污染。它能增强因果判断,却不能自动排除所有未知因素;结论的强弱取决于设计、数据和可重复性。
生物发生原则与生命起源
从雷迪到巴斯德,实验逐步确立了生物发生原则:在今天可观察的普通环境中,蛆、细菌和酵母等来自既有生物的繁殖或传播。这个原则支撑了无菌操作和传染控制,但它讨论的是现存生命怎样延续,不能被扩大为“非生命化学过程在任何条件下都不可能产生生命”。
实际生活中的保存措施可以用“初始数量、再次污染和生长条件”三部分理解。加热能降低许多微生物的数量,干燥、低温、酸化或盐渍改变其生长环境,密封则减少后续进入。泡菜和酱油还依赖特定微生物群落及其代谢,而不是笼统地把所有微生物分成有益与有害。
继续追问最初的生命,需要把时间尺度推回没有细胞祖先的早期地球。研究者正在检验有机小分子的非生物合成、能够形成边界的脂质囊泡、可催化反应并保存信息的RNA,以及能量与物质循环怎样耦合。RNA世界、代谢先行和热液环境等假说各有实验支持,也都保留尚未解决的步骤。
因此,“生命从哪里来”没有一个把所有层次混在一起的答案。现存细胞来自细胞,是反复观察得到的规律;最早可演化系统如何形成,则要靠地球化学、分子生物学和行星科学共同重建。清楚区分已经证实的过程、可行的化学途径与仍待检验的历史情景,正是这个问题最持久的学习价值。