进化论的发展历程
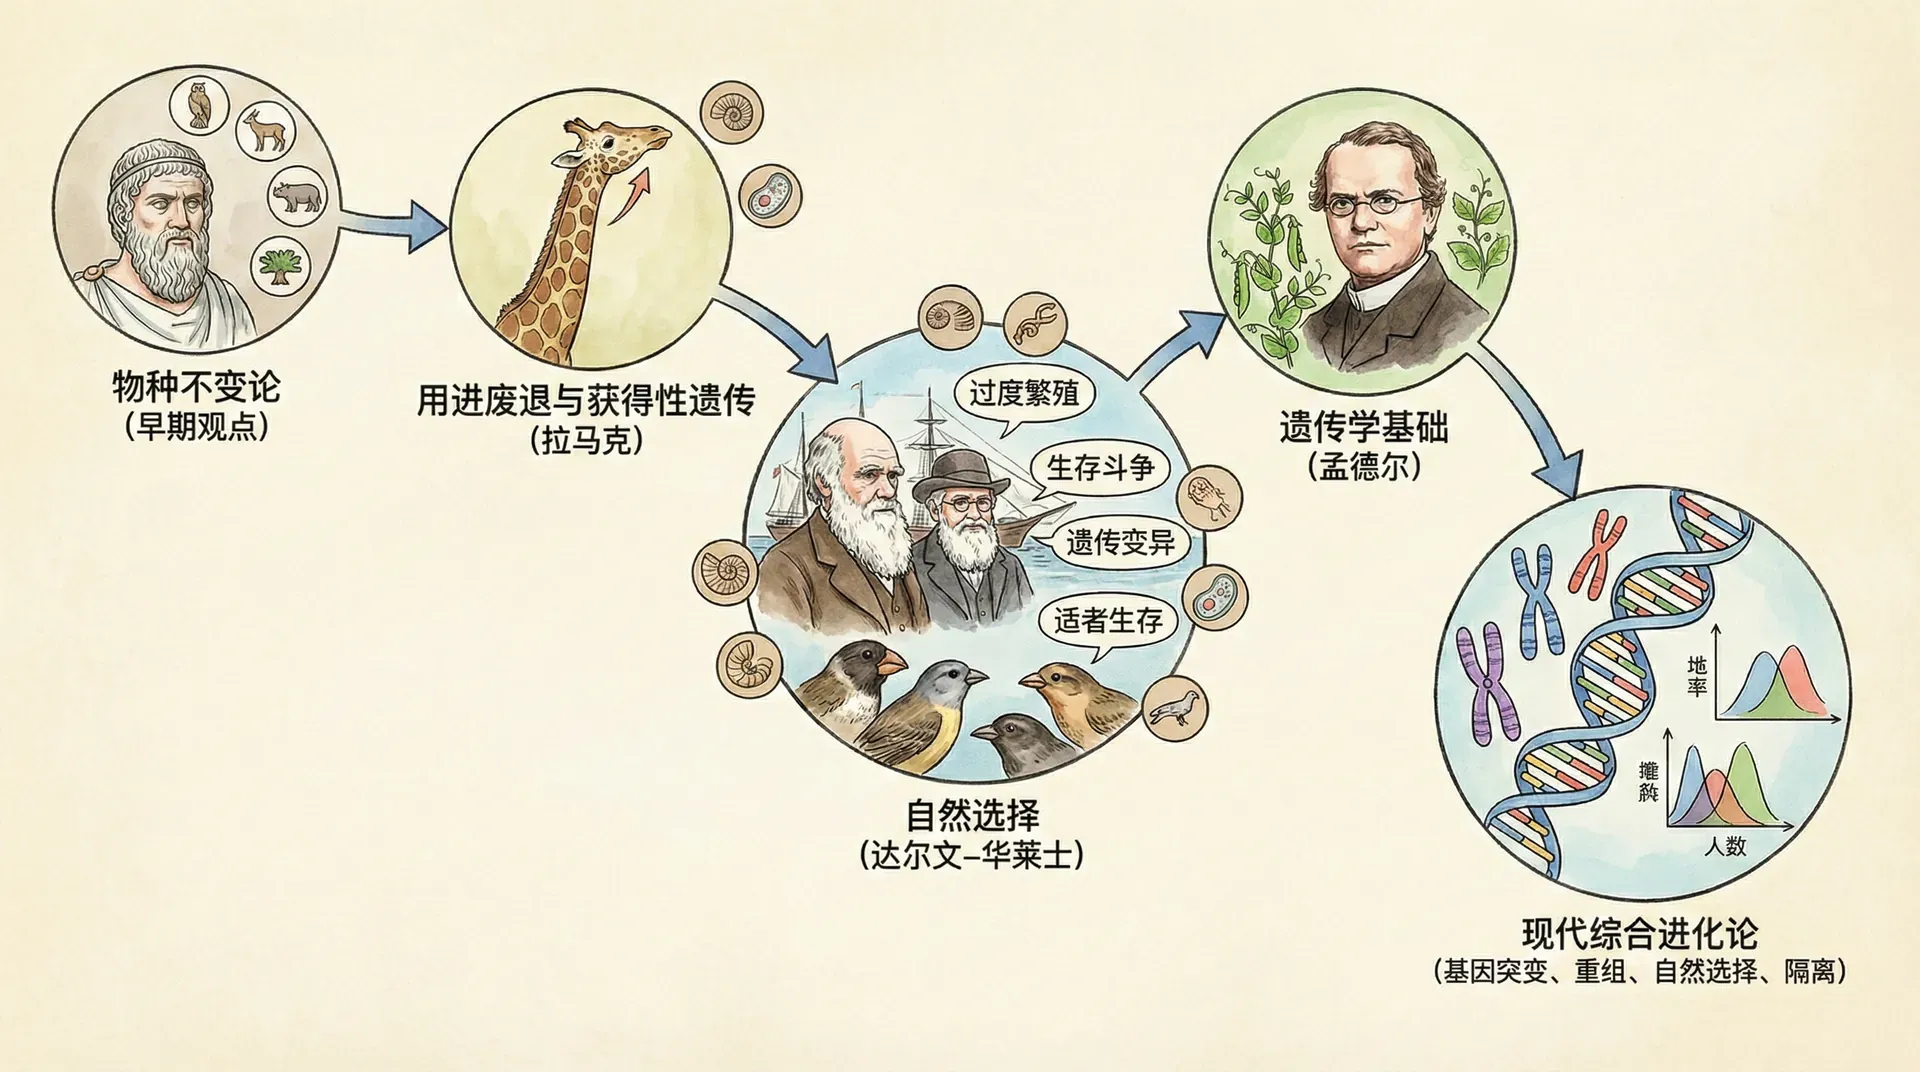
讨论人类起源时,最容易出现的误解是把共同祖先说成“人由今天的猴子变来”。化石、比较解剖和基因组证据支持人类与其他类人猿共享祖先,此后各分支独立延续。现存黑猩猩、猩猩和人类都是这棵树的末端,没有谁停留在另一物种的过去。
人体保留了可用于重建历史的结构,但“痕迹”不等于完全无用。尾骨来自祖先尾部结构,今天仍为韧带和盆底肌提供附着;耳周肌肉在多数人身上作用有限,却并未消失。达尔文结节只在部分人的耳廓出现,是否把它当作特定祖先尖耳残余,需要谨慎。
痕迹结构是祖先结构经过缩小或功能改变后的遗留。判断它们要比较发育来源、其他物种的同源结构和当前功能,不能把“功能不明显”直接写成“毫无功能”。
人类与黑猩猩、倭黑猩猩共享较近的共同祖先,与其他灵长类共享更早的祖先。每条现生谱系都积累了自己的变化,因此共同起点并不意味着今天仍有一个物种可以代表祖先原貌。
重新理解“适者生存”
“适者生存”常被误读成力量、速度或智力的排行榜。演化生物学中的适合度是相对繁殖贡献:在特定环境和种群里,携带某种可遗传性状的个体平均留下多少能继续繁殖的后代。活得久可能有帮助,却不是唯一指标。
如何定义“适者”
如果用“生存下来者就是适者”来定义适合度,推理会陷入循环。可检验的做法是预先测量性状和环境,再比较不同个体的存活、交配与后代数量,并估计差异能否遗传。这样才能判断选择是否真的发生。
不同生境中的比较只能说明适合度依赖环境,不能给三个物种排出永久名次。下表把关注点从“谁更强”转向资源限制、生活史和可能的权衡。
环境变化不会简单地让水生动物全部受益、陆生动物全部失败。海洋扩张还会改变盐度、温度、酸碱度和底质,人类也能通过文化和技术改变暴露。适合度必须针对具体种群、时间和限制因素测量。
生态位描述的是生物怎样利用资源并与环境和其他生物相互作用。一个物种能长期存在,说明其生活史在过去和当前条件下能够延续,并不表示它在生态位中已经达到完美状态。
不同生态位中的适应
中国不同地区的物种为比较适应性提供了材料,但每个例子都要区分已经测得的机制与仅凭外观提出的解释。
-
大熊猫:桡侧籽骨有助于抓握竹子,取食行为弥补了较低的纤维消化效率。它并没有大幅增强分解纤维素的能力,狭窄食性也与能量预算和栖息地风险相连。
-
高原有蹄类:低氧适应涉及通气、血流、组织代谢和毛被等多层性状,不能概括成一种“特殊血红蛋白”。
-
爬山虎属植物:卷须末端的吸盘帮助攀附,使叶片获得光照;根仍在土壤中吸收水和矿质,植物也会主动调节生长和生理。
-
藏羚羊:藏羚羊常年生活在青藏高原4000米以上的区域,这里气候恶劣、空气稀薄。通过进化,它们拥有了特殊的血红蛋白,能高效运输氧气,并且有极为保暖的绒毛。正是这些特征,使得藏羚羊在高原荒原中成为“真正的适者”。
-
爬山虎:在中国南方的岩石和高墙上,经常可以见到爬山虎,它们通过演化出的吸附器,牢牢地附着在垂直表面,在岩石缝隙或人工墙体上扎根生存。这是一种非常独特的环境适应。
适应性是性状与环境之间可测量的关系。某项性状在一个生态条件下提高繁殖成功,在另一条件下可能没有优势,甚至形成代价。
物种适应性的可视化对比
图中的数值代表预设环境下的相对表现,用于比较“环境改变后排序也会改变”。它们不是三个物种在野外的通用生存率,不能跨物种直接当作实测适合度。
高原动物在长期低氧环境中可能表现更稳定,平原近缘种在自身环境中则可能更合适。若把同一个体突然转移到不同海拔,短期生理应激与跨世代适应也必须分开。
合作也是生存策略
合作可以提高觅食、防御或育幼效率,但合作行为本身也有成本,并面临个体不参与却获益的问题。亲缘选择、互惠、直接收益和惩罚机制等理论解释了不同合作怎样在种群中维持。
警戒叫声、共同育幼和社会昆虫分工并非同一种机制。判断“合作提高适合度”时,要说明收益落在行为者、亲属还是整个群体,并比较不合作个体的结果。
合作与群体生存案例对比
扬子鳄通常不会成群共同守护一窝卵。雌性可能守巢、听到幼体叫声后开启巢穴并把幼体带向水域;冬眠洞穴利用和繁殖照料也不能混写成同一合作策略。
竞争、捕食、互利和合作都能改变繁殖结果。合作并不取代个体层面的选择,而是在亲缘、重复相遇和共同收益等条件下成为能够被选择保留的行为。
变异
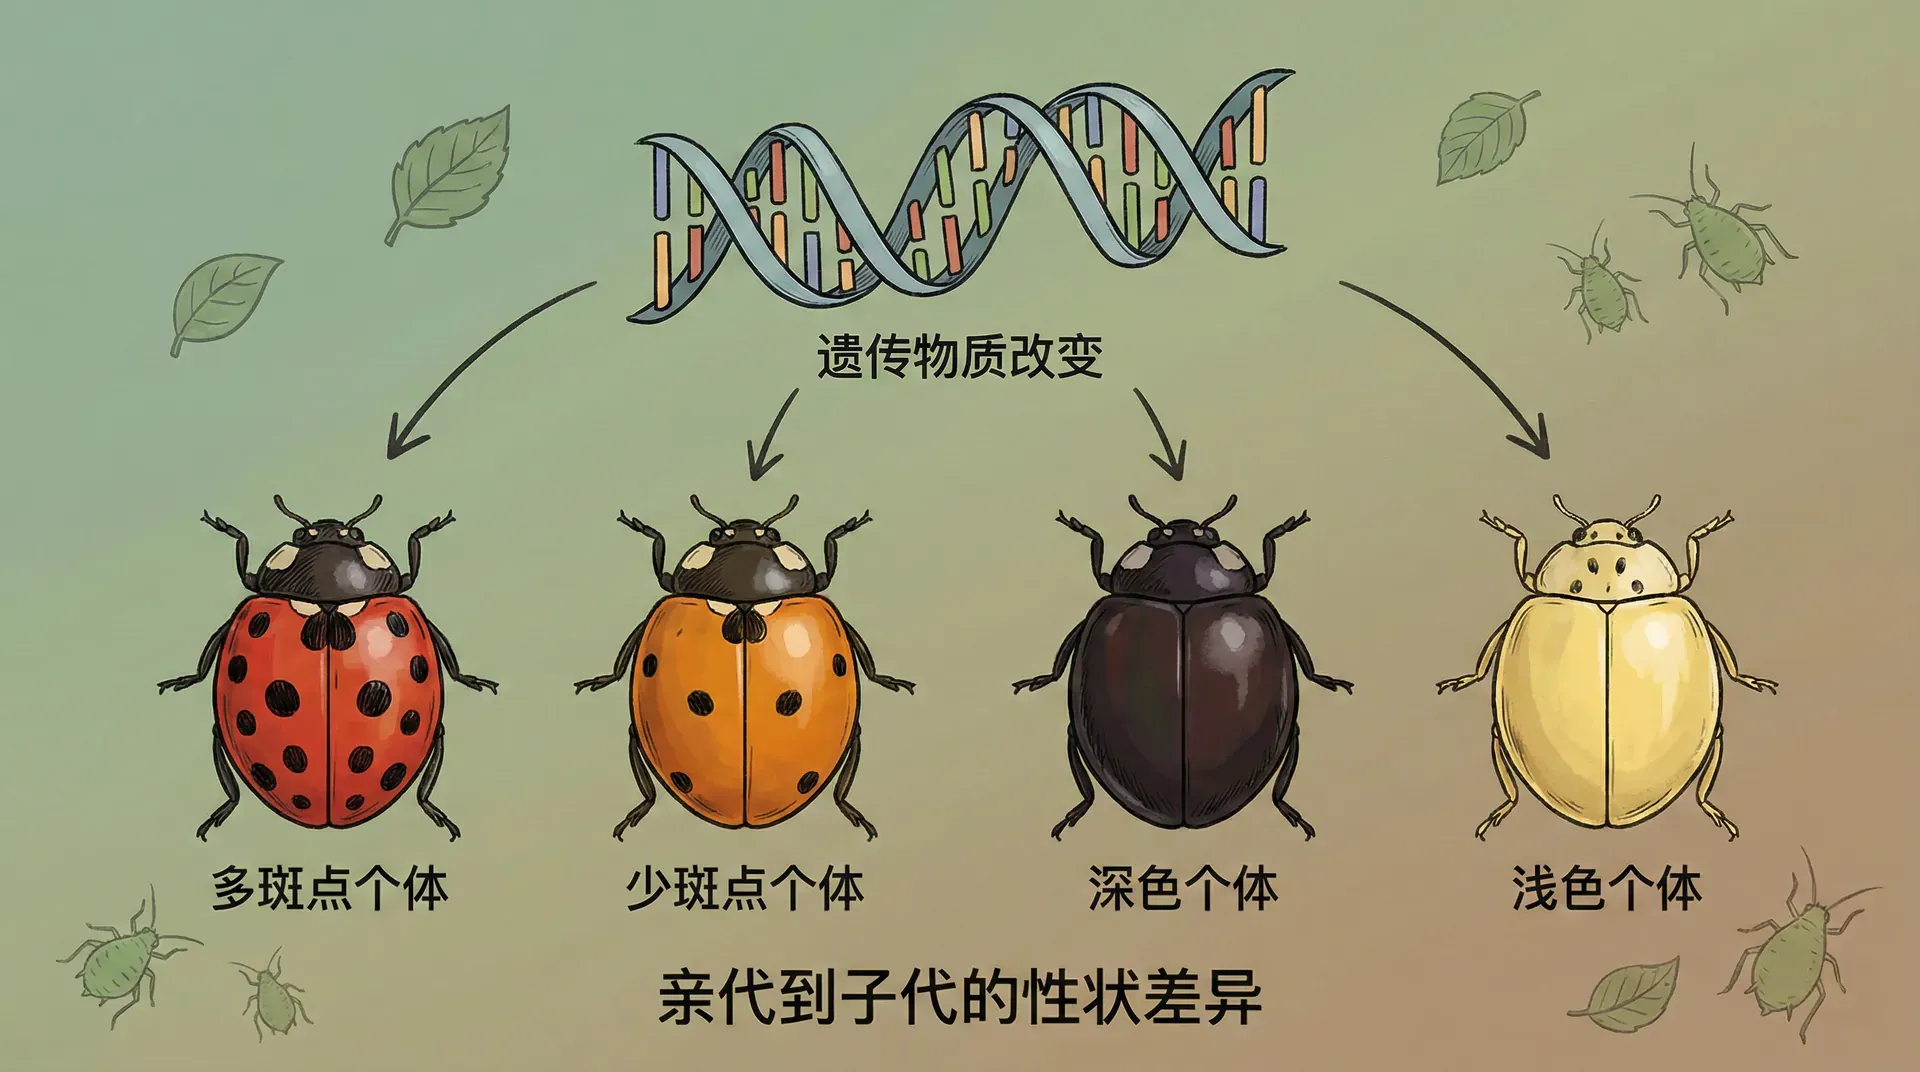
达尔文能够说明自然选择怎样利用差异,却不清楚遗传颗粒怎样在世代间保存。若遗传只是把亲代性状永久混合,稀有变异会不断被稀释;孟德尔遗传后来表明,等位基因可以分离并重新组合。
变异的持续性之谜
性状既有连续变化,也有清楚类别。身高等数量性状常受许多基因和环境共同影响,花色或血型在特定杂交中可能呈离散分组。两者都能由颗粒遗传解释,不能把变异普遍说成突然的“断裂型”。
新变异可来自DNA序列改变、染色体变化和重组,已有变异也能在种群中长期保留。是否看起来连续,取决于参与基因的数量、每个效应大小、环境影响和测量分辨率。
突变与遗传
育种者很早就知道,某些个体差异能够传给后代。留种和配种会改变下一代的等位基因组合,但表型优良不保证遗传稳定:环境造成的差异、隐性等位基因和基因互作都可能让后代偏离亲代。
下方总结几个常见的育种变异实例:
育种实践中的发现与改进
栽培稻的落粒性在驯化中受到强烈选择。野生型有利于种子散布,低落粒型便于收获;相关性状由多个位点和遗传背景影响,并非一次偶然发现就直接形成现代品种。
家蚕育种同样依赖多世代选择。茧层量、丝质和抗病性之间可能存在权衡,饲养环境又会改变表现。因此育种不是简单寻找一只“多吐丝的蚕”,而是比较家系并反复验证。
果树、蔬菜和家禽的新品种可以利用天然变异、杂交重组和诱发突变。无籽果实还可能来自单性结实或倍性变化,不应把所有新性状都归入同一种“有益突变”。
人工选择能够放大可遗传差异,却不会自动揭示其分子原因。现代育种把田间选择与系谱、统计遗传和基因组信息结合,目的是区分稳定遗传效应与环境波动。
现代育种中的变异应用
杂交水稻利用的是亲本间遗传差异、雄性不育系统和杂种优势,而不是单纯依靠新突变。它说明育种可以重新组合已有等位基因,并通过多地点试验评价产量、抗性和品质。
袁隆平团队在野生稻材料中发现雄性不育资源,为三系杂交稻育种提供了关键材料。雄性不育株作为母本可减少自交,但高产还取决于保持系、恢复系和不同基因背景的配合,并非“不育变异”本身直接提高产量。
图中的产量轨迹若未注明品种、年份、试验地点和对照,只能用来理解育种筛选的多阶段过程。真实产量受气候、栽培和统计口径影响,不能把一条持续上升的曲线当作全国历史记录。
选择只能作用于能够被后代继承的差异。某些等位基因可能在育种群体中增加,另一些则因与不利性状连锁而被舍弃;稳定品种还需要多代繁殖和多环境检验。
变异来源不止突变。减数分裂重组、基因流和已有等位基因的重新组合能够迅速改变表型;突变负责产生新的序列和结构变体,是长期遗传创新的重要来源之一。
突变
德弗里斯在月见草研究中推广了“突变”概念,但月见草材料后来被发现具有复杂染色体重排,许多突然性状并不是简单的单基因点突变。这个历史提醒我们:观察到新表型只是起点,分子机制仍需独立验证。
可遗传的新性状可能来自碱基替换、插入缺失、拷贝数变化、染色体重排或倍性变化。不同变化对表型和遗传方式的影响差别很大,不能用“突然出现且稳定”给所有机制下同一定义。
突变的类型与影响
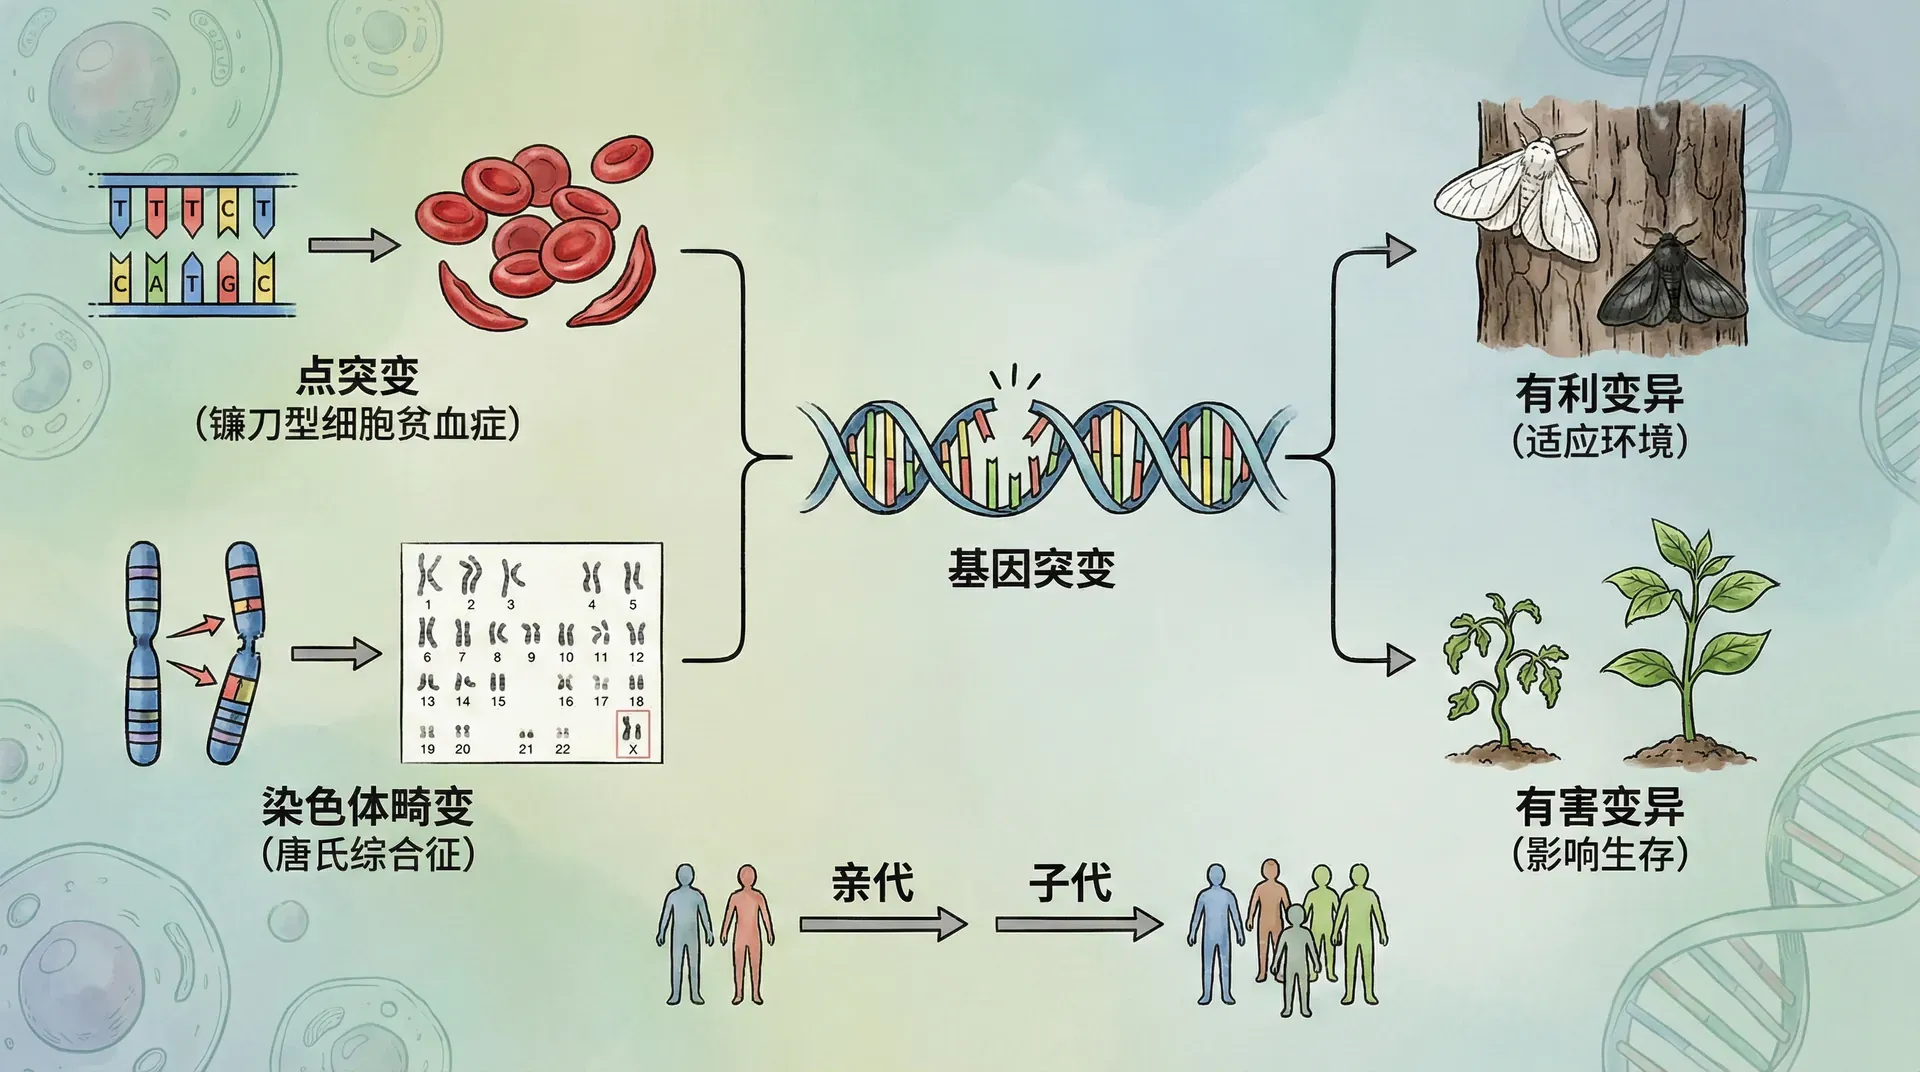
对细胞生物而言,突变是遗传物质DNA序列或染色体结构、数量发生的可传递改变。RNA病毒以RNA为基因组,变异机制又有所不同。突变可以发生在复制、DNA损伤修复或重组过程中。
- 提高适合度的变异只在特定环境下带来相对繁殖优势,例如抗药性等位基因在药剂存在时有利,却可能伴随生长代价。
- 降低适合度的变异可能妨碍发育或繁殖,但显隐性、发病年龄和环境会影响选择强度。
- 近中性变异的效应很小,其频率更容易受遗传漂变影响。
有害变异不会必然迅速消失。隐性等位基因可隐藏在杂合子中,晚发性状可能在繁殖后才出现,迁移与反复突变也能补充频率。选择结果要放进真实生活史中判断。
哪些突变接近中性,取决于环境、有效种群大小和基因位置。沉默替换也可能影响剪接、RNA稳定性或翻译效率,因此“没有改变氨基酸”不等于绝对没有效应。
突变通常不是按生物的需要定向产生,但发生概率并非在基因组每处完全相同。序列背景、复制时机、DNA修复和诱变因素会造成偏差;自然选择随后改变不同变体的相对频率。
诱变育种怎样工作
诱变育种使用辐射或化学处理提高变异出现的机会,再从大量后代中筛选。处理不会按育种者愿望精准产生目标性状,大多数变异无用或不利,因此可靠流程需要剂量控制、世代稳定和多环境评价。
航天搭载材料会经历辐射、温度和微重力等条件,但返回后看到的差异不能全部归因于“太空突变”。地面对照、测序和连续遗传检验用于区分真正遗传变化、运输条件和普通环境效应。缺少这些信息的固定增产百分比不宜当作普遍结果。
X射线、伽马射线和化学诱变剂能增加DNA损伤与修复错误,已用于培育一些作物品种。诱变只是创造候选变异,最终品种仍需经过选择、回交、田间试验和安全评价。
下方比较应读取为不同处理下候选变异出现机会的相对示意。突变率必须说明检测尺度、剂量、材料和后代世代,不能用一组固定倍数代表所有作物。
突变累积与物种演变
突变效应有大有小,染色体重排或调控基因变化可能一次影响多个性状。新物种形成也不是突变简单相加的终点,它通常涉及种群分化、基因流降低和生殖隔离逐步建立。
河流侵蚀的比喻能够表达累积,却容易忽略遗传变异会丢失、重组和跨种群迁移。每一代都在重新抽样,选择方向也会随环境改变,因此演化历史不是把所有突变永久堆在同一条谱系上。
在生物进化中,突变虽小,但经过无数代的积累与筛选,能产生深远的影响。突变如何影响物种演变,主要包括:
- 效应尺度不同:单个变异可能无可见影响,也可能改变关键发育过程。
- 频率会升降:选择、漂变和基因流决定变异是否保留,出现并不等于固定。
- 基因彼此作用:同一变异在不同遗传背景中可能产生不同表型。
- 物种形成需要种群过程:长期独立演化和繁殖隔离比突变数量本身更关键。
时间允许差异积累,也允许差异被基因流稀释或在漂变中消失。理解这种动态,比“点滴改变必然汇成新物种”更接近真实演化。
图示把突变和选择压缩成单一路径,适合识别基本变量。真实种群还会受到迁移、配偶选择、种群大小和环境波动影响,同一突变也可能在不同阶段产生相反后果。
突变产生新变体,自然选择、漂变和基因流改变其频率,重组则不断重排组合。多样性来自这些过程共同作用,不能把自然选择写成唯一保留机制。
自然界中的突变实例
白化由黑色素合成或分布通路中的多种遗传变化引起,与北极熊或雪豹的正常浅色被毛不是同一现象。白化个体的视力、紫外防护和隐蔽性可能受影响;正常浅色适应则由不同基因和生理结构形成。
多倍体是整套染色体增加,在植物中尤其常见。它可能改变细胞大小、基因表达和育性,但不保证植株更粗壮或果实更大。普通小麦等作物的历史包含杂交与多倍化,无籽三倍体则利用减数分裂配对困难造成不育。
理解变异来源能帮助设计育种和保护方案,也能解释抗药性怎样出现。应用时必须区分产生变异与筛选变异:诱变增加候选,环境和育种目标决定哪些候选被保留,长期效果还取决于遗传背景与生态代价。