生命的化学基础

厨房把生命化学放在了触手可及的地方:米和面粉富含淀粉,食用油以脂类为主,鸡蛋和豆腐则含有较多蛋白质。加热时,淀粉会糊化、焦化,油脂在温度过高时会氧化并冒烟,蛋白质会展开并聚集,因此蛋清从透明变成白色。不同表现来自分子组成和结构的差异。
十九世纪初,化学家开始按来源和性质整理化合物,并逐渐形成“有机物”和“无机物”的分类。不过,这条边界从来不等同于“生命物质”和“非生命物质”:水、无机盐存在于细胞中,二氧化碳含碳却通常归为无机物;盐可溶解和结晶,铁会氧化,水也会发生化学反应。今天的有机化学主要研究碳化合物,而不是判断一种物质是否有生命。 分类名称服务于研究传统,不能替代化学性质的测量;溶解度、反应性、熔点和光谱才是比较具体物质的依据。
贝采里乌斯在十九世纪初推广了有机物与无机物的名称。当时许多已知有机物确实来自生物材料,这段历史解释了名称的由来,却不能当作现代定义。
生命力的迷思
早期“生命力论”认为,生物体内存在一种普通化学过程无法替代的特殊力量,只有它才能产生有机物。这种解释在当时有吸引力,因为实验室还不能合成许多复杂的天然物质,但它并没有给出可检验的机制。
1828年,维勒从氰酸铵制得尿素,说明一种原先只从生物材料中获得的有机化合物可以由实验室反应生成。此后越来越多合成与分析工作表明,细胞内反应同样遵守化学和物理规律。生命仍然具有高度组织性,却不需要额外的“生命力”来解释有机物的形成。 维勒的实验也不是现代有机化学的唯一开端,它更像一块清楚路标,显示可控反应能够跨过当时人为设定的来源边界。
碳水化合物

人类在形成现代化学以前,就已通过磨粉、发酵、烘烤和腌制认识食材会发生可重复的变化。现代分析把这些经验连接到分子层面:食材的口感和加工特性往往来自水、糖类、脂类、蛋白质及无机盐之间的共同作用,而很少由一种成分单独决定。 例如发酵既改变糖含量,也产生酸、气体和香气分子;面团成形则同时依赖淀粉吸水和面筋蛋白建立网络。
下表比较几类常见食材的主要成分与可观察性质。这里的“主要”表示相对含量较高,并不意味着食材只含这一类物质。
面粉中的淀粉通常没有明显甜味,也不易溶于冷水;水果和蜂蜜含有葡萄糖、果糖等可溶性糖,入口更容易感到甜。淀粉和单糖的性质不同,却都属于碳水化合物。它们的联系要从组成单元和化学键来理解。 咀嚼米饭后出现甜味,是唾液淀粉酶把部分淀粉切成较小糖类的结果,也把宏观口感与酶促水解连接了起来。
早期定量分析显示,许多糖类主要含碳、氢、氧。以葡萄糖为例,分子式为C₆H₁₂O₆;淀粉和纤维素的重复单元常写作(C₆H₁₀O₅)ₙ。质量比例会随分子结构而变,因此不能用一组固定百分数概括所有碳水化合物。
几种常见碳水化合物的元素质量比例可以由分子式计算,数值经过取整后如下。
许多简单糖中氢、氧原子数之比接近水的2∶1,“碳水化合物”因此保留了早期命名痕迹。但糖分子并不是碳和水的简单混合物,有些碳水化合物也不严格符合通式。名称便于沿用,结构才决定反应和功能。
纤维素是植物细胞壁的重要成分,也由碳、氢、氧组成。它与淀粉的重复单元分子式相同,葡萄糖残基之间的连接方式却不同;这使纤维素形成坚韧纤维,而淀粉更适合储存和动员能量。 反刍动物和白蚁能利用纤维素,主要依靠消化道共生微生物提供纤维素酶,这说明食物价值还取决于生物拥有的酶系统。
十九世纪的水解实验表明,淀粉在酸或酶作用下可以逐步生成较小的糖,最终得到葡萄糖。不同植物来源的淀粉有支链比例和颗粒结构差异,但它们都以葡萄糖残基为主要构成单元。
纤维素水解也能得到葡萄糖,不过这不能推出所有碳水化合物都由葡萄糖构成。常见的情况有:
- 蔗糖包含葡萄糖和果糖
- 乳糖包含葡萄糖和半乳糖
- 核糖、脱氧核糖等单糖还参与核酸结构
它们的共同点是都属于由单糖及其衍生物构成的一大类化合物。同一种单糖还能:
- 被磷酸化、氧化或连接其他基团
- 进入核苷酸、细胞表面识别和细胞外基质等不同结构
克洛德·贝尔纳在十九世纪研究肝脏调节血糖的作用,并发现糖原。糖原是动物和真菌常见的储能多糖,肝糖原参与维持血糖,肌糖原则主要供局部肌肉使用。酸水解或酶促分解会释放葡萄糖单位。 餐后肝脏可合成糖原,空腹时再分解并释放葡萄糖;骨骼肌缺少向血液直接释放游离葡萄糖的关键步骤,因此更偏向自身使用。
葡萄糖存在于血液和多种组织液中,“血糖”通常指血液中的葡萄糖浓度。细胞可通过糖酵解等途径利用葡萄糖,但不同组织的燃料选择、摄取方式和调控机制并不完全相同。
淀粉、糖原和纤维素都可由葡萄糖残基组成,差别主要在糖苷键类型、支化频率和链的排列。糖原通常比支链淀粉分支更频繁,便于快速从多个末端释放葡萄糖;纤维素的直链可通过氢键排列成纤维,人类缺少分解其β键的消化酶。 这种结构差异也解释了为什么同为多糖,淀粉能被人类消化,纤维素却主要作为膳食纤维进入大肠并被部分微生物利用。
单糖的溶解性、甜度和反应性并不完全一样,也并非所有单糖都呈白色甜味晶体。果糖、葡萄糖和半乳糖分子式相同,却因原子连接和空间构型不同而具有不同性质;这为理解分子结构怎样影响功能提供了清楚例子。
碳水化合物包含单糖、寡糖、多糖及其衍生物。少数常见单糖可以通过不同连接方式形成大量结构,葡萄糖很重要,但不是所有碳水化合物唯一的构成单元。
脂肪的构成

食用油、坚果、乳制品和动物脂肪都含有脂类。许多油脂不溶于水,会在纸上留下半透明痕迹;室温下是液体还是固体,与脂肪酸链长和不饱和程度有关。脂类还包括细胞膜中的磷脂、参与信号传递的类固醇等,并不只是营养学中的“脂肪”。 细胞膜中的脂类会自发形成双层,是因为同一分子同时具有亲水和疏水部分;这一性质与油滴单纯聚在一起并不完全相同。
常见甘油三酯主要含碳、氢、氧,而且碳氢比例较高,因此单位质量氧化时通常释放较多能量。不过脂类是按溶解性质和生物功能归在一起的多样化分子家族,有些磷脂还含磷和氮,不能用一套固定元素比例定义全部脂类。 能量密度较高并不表示摄入后必然立即储存,脂肪酸也可被氧化、用于膜合成或转成信号分子,去向受代谢状态调控。
舍夫勒尔等化学家通过皂化和水解研究油脂,逐步认识到甘油三酯由甘油与脂肪酸形成。硬脂酸、棕榈酸、油酸和亚油酸在碳链长度与双键数量上不同,这些差异会影响熔点、膜流动性和代谢方式。 不饱和脂肪酸的顺式双键会使碳链弯折,通常降低紧密堆积程度,这也是许多植物油在室温下保持液态的一个原因。
甘油三酯形成酯键时会释放水,水解时则消耗水。脂类分子大小和组成范围很宽,因此不能像同一聚合物那样用统一的“单元数”计算分子质量。
“脂肪=甘油+脂肪酸”适用于甘油三酯,却不适用于全部脂类。磷脂通常还带有含磷的亲水头部,固醇也没有甘油三酯的基本结构。分清大类与具体分子,能避免把常见例子误当成普遍规则。 例如胆固醇属于固醇,是动物细胞膜的重要成分和多种激素前体,却不能拆成三条脂肪酸与一个甘油。
到十九世纪后半叶,化学分析已经让人们看到生物材料具有共同成分:糖类、脂类和蛋白质广泛存在,水与无机离子同样不可缺少,核酸的重要性则在随后逐渐显现。
- 糖类可作为能量来源、储存物和结构材料;
- 脂类参与储能、膜结构和信号调节;
- 蛋白质由氨基酸连接而成,承担催化、运输、支撑和调控等功能;
- 核酸由核苷酸连接而成,参与遗传信息的储存、传递和表达。
不同生物共享这些分子类别和许多核心反应,构成生命化学统一性的重要证据。共同性与细胞结构、遗传密码和系统发育证据相互支持,符合地球生命具有共同祖先的解释;单独一张成分表不能完成全部证明。 若两个远缘物种拥有顺序高度相似且执行相同核心功能的分子,研究者还会比较差异分布,以重建它们分开后的变化。
蛋白质的奥秘

蛋白质是功能极为多样的生物大分子。细胞用蛋白质构成细胞骨架和细胞外结构,也用酶催化反应、用受体传递信号、用抗体参与防御。病毒含有蛋白质,但病毒不是细胞,是否把它们称作生命需要先说明采用的生命定义。 同一种蛋白质也可能在不同组织承担不同任务,反过来,同一项功能常由多个蛋白质协作完成,所以功能不能只从名称猜测。
蛋白质的元素组成和三维结构都比“含氮有机物”这一标签丰富。理解一种蛋白质,需要同时考察氨基酸序列、折叠、化学修饰、结合伙伴以及它所在的细胞环境。另外,蛋白质的多肽链一定含碳、氢、氧和氮,含半胱氨酸或甲硫氨酸时还含硫。磷酸化等修饰可引入磷;铁、锌等金属也可作为结合的辅因子参与功能,但通常不是多肽链本身的元素。
氮使氨基酸和蛋白质具有区别于许多糖类、脂类的化学特征,却不意味着蛋白质负责传递遗传信息,也没有科学依据把它称为绝对“第一重要”的营养素。生命活动依赖水、能量来源、必需营养素和多种分子系统协同。
核糖体通常使用二十种标准氨基酸合成蛋白质,少数生物在特定位置还能插入硒代半胱氨酸或吡咯赖氨酸。氨基酸顺序决定多肽可能形成的结构,而折叠环境、修饰和复合体装配共同决定实际功能。 有些蛋白质需要金属离子或有机辅因子才能工作,有些则在切除一段前体肽后才成熟,序列只是形成活性结构的第一层条件。
加热、极端酸碱度或某些化学物质可以破坏维持蛋白质形状的相互作用,这一过程叫做变性。关于蛋白质变性及相关内容,可总结为:
- 变性原因包括高温、强酸强碱、某些化学物质等;
- 变性主要破坏蛋白质的高级结构,不一定切断肽键;
- 变性过程不总是不可逆,有些小蛋白在条件恢复后可以重新折叠;
- 例如煮熟的蛋清,蛋白质发生不可逆聚集,而部分情况下变性可逆;
- 细胞通过分子伴侣和降解系统调控蛋白质折叠状态;
- 变性与降解不同:变性主要指高级结构改变,降解则会切断肽键;
- 在烹饪等过程中,变性与降解可能在不同温度和时间下同时发生。
标准氨基酸共享氨基、羧基和侧链的基本框架。侧链的电荷、大小、疏水性和反应性不同,使同一套构件能够形成酶活性位点、跨膜区域、柔性连接段和结构支架。
人体需要从食物获得九种必需氨基酸。相关要点包括:
- 动物性食物和豆类通常含有较丰富的必需氨基酸;
- 谷物、豆类、坚果和种子合理搭配,也能满足人体对必需氨基酸的需求;
- 饮食评估应关注全天摄入量、消化率和个体需求,并非简单区分“完全蛋白”和“不完全蛋白”;
- 长期必需氨基酸摄入不足会影响组织更新和生理功能,具体健康问题还需结合整体营养状况判断;
- 人体能将部分非必需氨基酸相互转化,但在生长、疾病或代谢压力等情况下,对部分氨基酸的需求会发生变化,因此营养评价需考虑具体生理阶段。
研究蛋白质把日常烹饪、细胞代谢和疾病机制连接在一起。序列分析告诉我们构成,结构研究揭示结合方式,功能实验再检验蛋白质在真实细胞中的作用;三类证据缺一不可。 例如酶活性下降可能来自序列变化、折叠失败、辅因子缺乏或抑制剂结合,只有把这些层次分开,才可能提出有效干预。
生命的化学统一性
细胞的化学统一性不只体现在糖类、脂类和蛋白质。水构成反应环境,离子维持电位和酸碱平衡,核酸承载遗传信息,许多小分子则连接不同代谢途径。生物之间成分比例和具体分子各不相同,却共享大量基础构件与反应原则。 ATP、辅酶A和NAD等小分子在多条通路间周转,把糖、脂肪酸和氨基酸代谢连接成网络,而不是三条互不相干的生产线。
糖类并非都由葡萄糖组成,脂类也并非都能拆成甘油和脂肪酸;蛋白质则主要由一套标准氨基酸连接而成。真正值得关注的是有限构件、不同连接和多层调控如何产生多样功能,而不是把所有大分子压缩成三种“积木”。
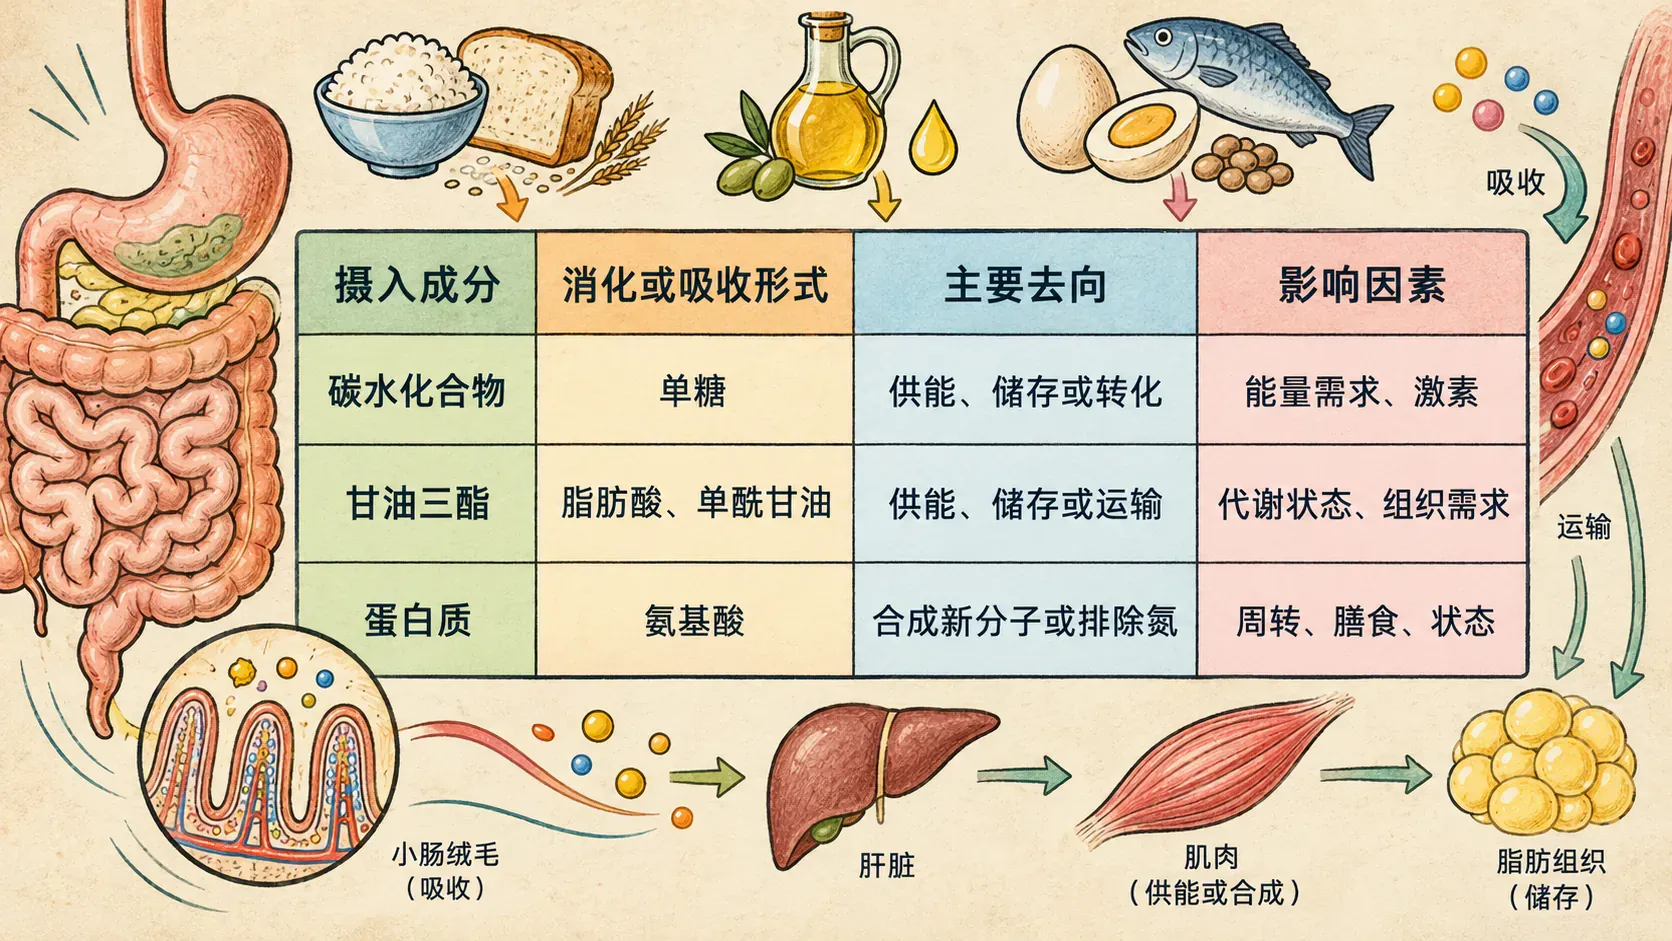
不同生命可以形成食物关系,原因包括:
- 消化和代谢能将许多外来大分子分解为小分子,并将吸收后的构件纳入自身反应网络;
- 人体不会把牛肉蛋白等外源蛋白原样变成人体蛋白,而是先分解为氨基酸再重新合成;
- 人体不能消化所有生物聚合物,例如纤维素就是一个常见例外;
- 转化能力受共同的化学基础、酶类种类和细胞结构的限制;
- 消化酶具有底物特异性,不同酶只能分解特定种类的大分子;
- 肠道微生物可补充一部分人类自身缺乏的分解能力;
- 因此,同一种食物在不同物种中的利用率可能存在较大差异。
生命化学的统一性表现为共享元素、分子构件、遗传密码和核心代谢反应;多样性则来自不同序列、结构、数量与调控关系。两者同时存在,才能解释细胞既遵循共同规律,又形成截然不同的生活方式。
这些共同特征与化石、比较解剖和系统发育结果相互印证,为共同祖先和演化过程提供证据。化学相似性本身不能推出某个现代物种必然变成另一个物种,但它让研究者能够在可比较的分子层面追踪亲缘关系和变化历史。 分子比较的优势在于可以量化:序列差异、结构同源和代谢路径分布都能转化为可检验数据,并与地质时间和生态信息交叉检查。