染色体与遗传的多样性
人类染色体数直到1956年才由蒋有兴和阿尔伯特·莱万用改进的细胞培养与制片方法确认为46条,此前常被误报为48条。这个历史说明,清晰计数依赖合适材料和技术,也提醒我们不要把科学更正写成1957年的单一瞬间。
果蝇体长通常为数毫米,世代短、后代多,体细胞只有4对染色体,因此适合连接遗传比例与染色体行为。摩尔根实验室在二十世纪初建立系统研究,1910年前后对白眼等性状的分析成为关键转折。
果蝇随后成为遗传学和发育生物学的重要模式生物。摩尔根因染色体遗传研究获1933年诺贝尔奖,谈家桢等中国遗传学家也利用果蝇研究种群和遗传现象。模式生物的价值来自可控实验与跨物种比较,而不是它能代表所有生命细节。
染色体的配对规律
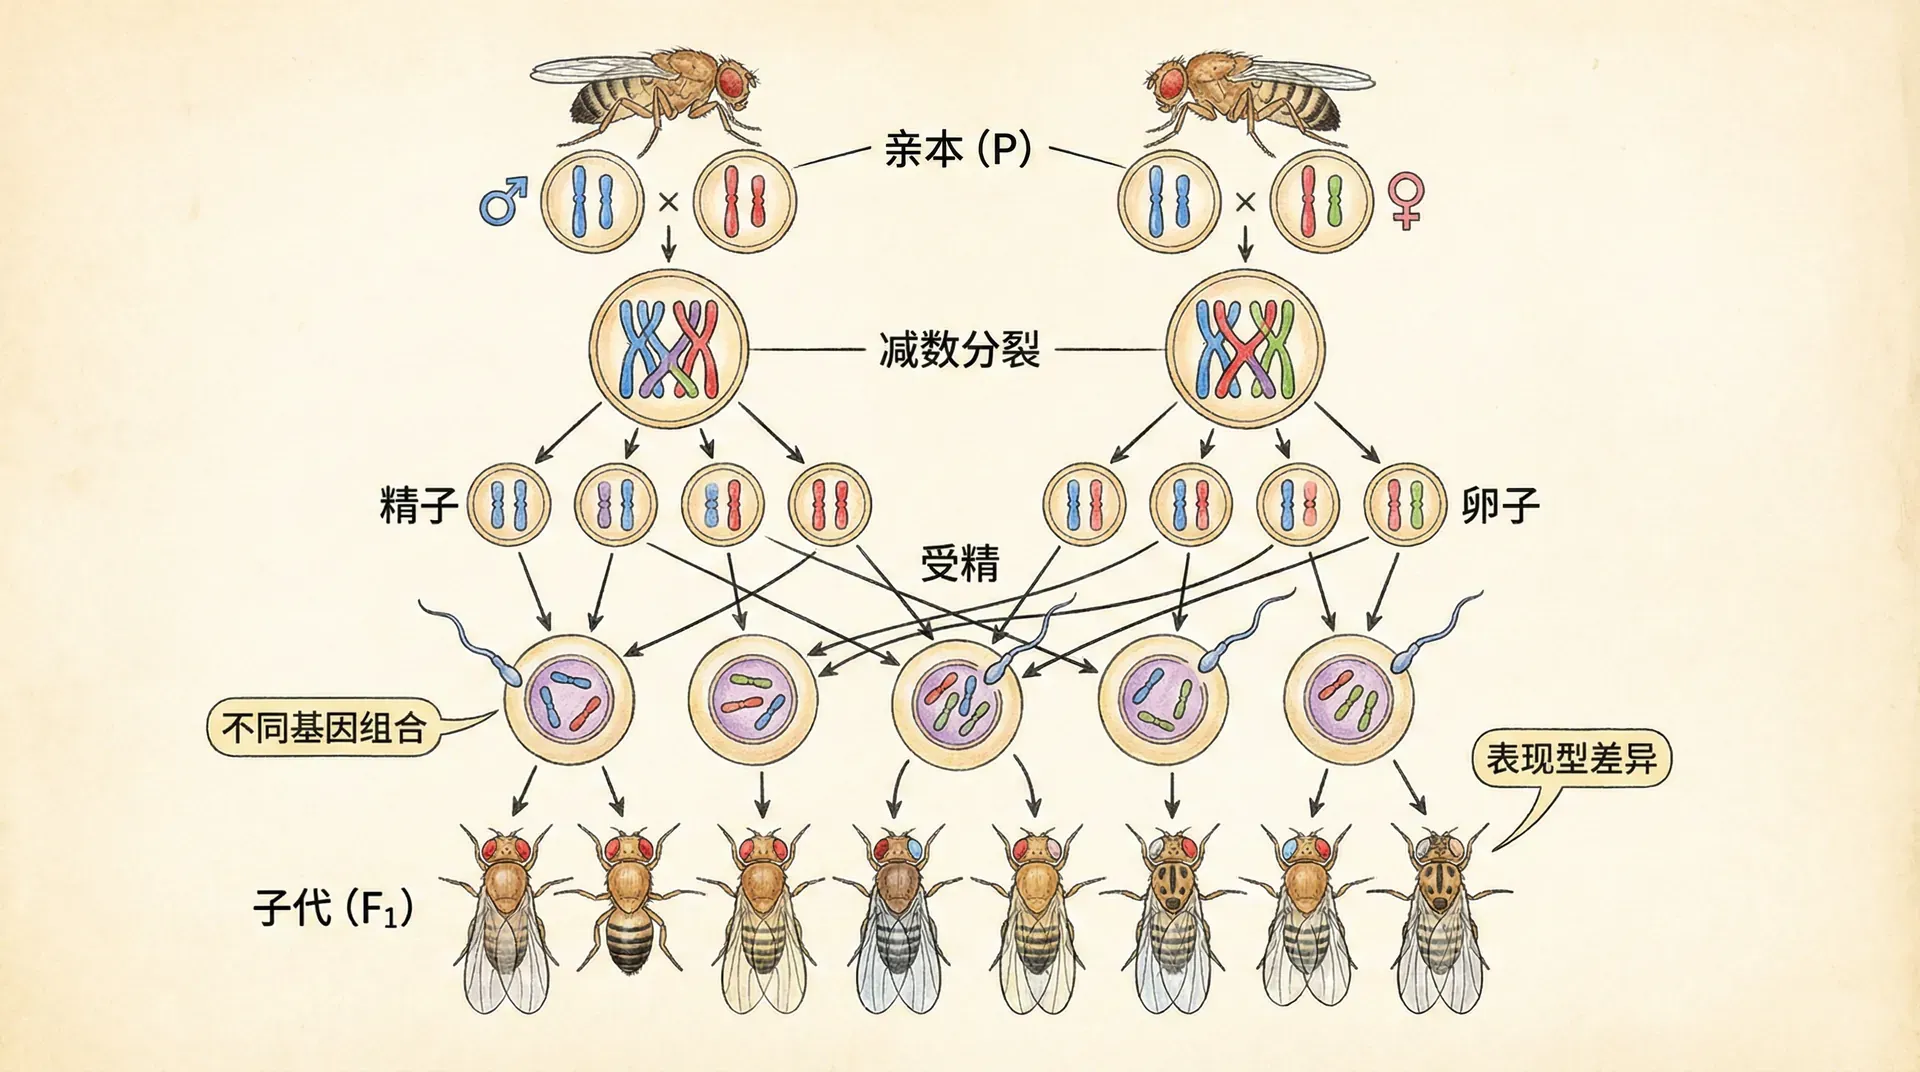
果蝇体细胞通常有4对染色体,同一对在着丝粒位置和大体长度上相应,称为同源染色体。每对一条来自母源、一条来自父源,携带相同基因座,却可能含不同等位基因。具体形态会随细胞分裂阶段和制片方向改变,不必背成“点、直线、V形”的固定图案。
形成配子时,减数第一次分裂使同源染色体分离,正常配子各得到一套4条染色体。姐妹染色单体在第二次分裂分开,交换已使其中一些染色体成为祖源片段的组合。
- 每个正常配子含一套染色体,而不是从每种外形中机械挑一条。
- 同源染色体携带对应基因座,序列不必完全相同。
- 独立分配与交换共同改变配子的等位基因组合。
减数分裂偶尔会发生不分离,产生多一条或少一条染色体的配子,因此“从未观察到异常组合”是错误的。许多异常配子或胚胎不能继续发育,少数可存活并形成非整倍体。
孟德尔分离定律描述一对等位基因在配子形成时分开。染色体分离提供细胞学机制,但两者不是两个名称完全等同的“配对分离规律”。
多数二倍体真核生物在减数分裂中配对并分离同源染色体,但多倍体、结构杂合和某些特殊遗传系统会出现更复杂行为。规律具有广泛适用性,也有可以研究的例外。
普通小麦42条染色体并没有超过人类46条,但这一比较本身就说明染色体数不能衡量复杂程度。染色体可融合、断裂或整组加倍,基因组大小和基因调控复杂度也不随染色体条数简单变化。 例如,人类2号染色体保留祖先两条染色体融合的痕迹,说明染色体数可以改变而不必成比例增减基因功能。
遗传多样性来自同源染色体交换、不同染色体对的独立分配和随机受精。每个过程都在已有变异的基础上重排组合,新等位基因则由突变产生。 独立分配只适用于不同染色体或相距很远的位点;同一条染色体上靠得很近的等位基因组合,更多依靠交换才会被拆开。
性别是如何决定的
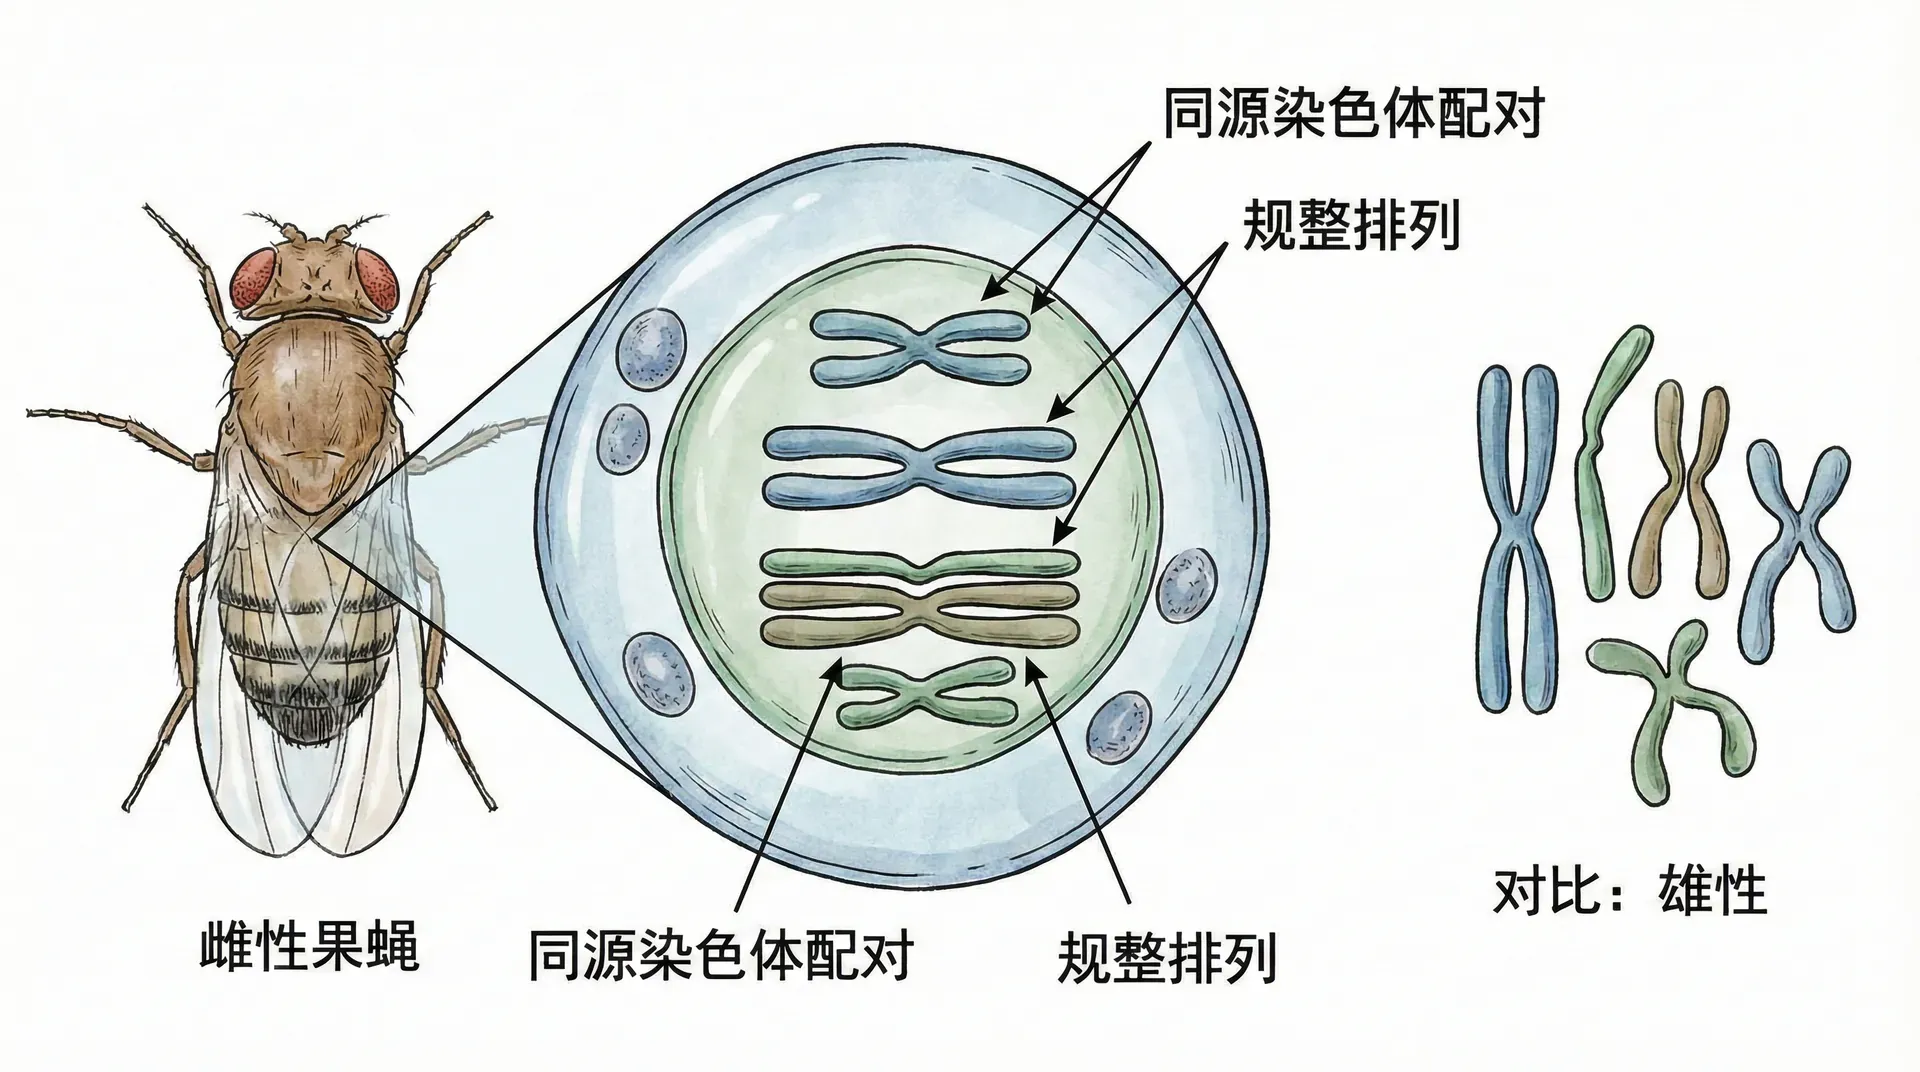
雌雄果蝇在一对性染色体上不同,但其性别决定机制不能直接照搬到人类。果蝇主要由X染色体数与常染色体组数的比例决定性发育,Y染色体主要关系雄性生育;人类则由Y染色体上的SRY等因子启动典型雄性发育路径。
十九世纪末到二十世纪初,亨金、麦克朗、内蒂·史蒂文斯和威尔逊等人逐步把特殊染色体与性别联系起来。1905年史蒂文斯在黄粉虫等材料中清楚显示X、Y组合与性别相关;把发现归给威尔逊研究蜜蜂并“首次命名X和Y”并不准确。 科学史中的发现也由多人和多种材料共同推进:有人先观察到特殊染色体,有人把它与个体性别稳定对应,还有人用遗传实验解释传递规律。
雌果蝇通常产生带一条X的卵;雄果蝇可产生带X或Y的精子。但在果蝇中,Y并不是决定雄性身份的开关,所以“Y型精子直接决定雄性”只适用于人类等典型XY系统的简化说明。
在人类常见核型中,卵细胞带X,精子可带X或Y。受精形成XX或XY后,SRY及其下游基因、激素和受体共同参与性发育;染色体变异与性发育差异显示,这不是只看一个字母就能覆盖的全部过程。
人类与果蝇都可用X、Y标记性染色体,却采用不同的发育判定机制。人口中的男女性别比例还受到胚胎和出生后存活、社会行为及统计口径影响,不能拿人口普查比例直接验证受精时的染色体随机分配。 因此课堂上的“父亲决定XX或XY”只是在典型人类核型下描述精子所带性染色体,不能扩展成对性别身份或所有物种的完整解释。
基因连锁现象的发现

一个物种的基因数远多于染色体对数,因此许多基因位于同一条染色体。孟德尔比例是否独立,不取决于性状数量,而取决于控制性状的基因位置、重组率和其他遗传互作。
同一染色体上的基因构成连锁群,彼此越近,通常越可能一起传递。不过同源染色体在减数分裂中可交换片段,所以连锁是概率关系,不是整条染色体永远原封不动地“打包”。 若两个位点相距很近,大多数配子保留亲本组合;距离增大后,至少一次交换发生在两者之间的机会随之上升。
孟德尔研究的七个基因后来被定位在豌豆七条染色体中的四条,并非恰好各占一条。某些同染色体基因相距较远,交换后仍可表现近似独立组合;这解释了他为什么没有从有限实验中明确发现连锁。 这一历史细节也说明,遗传规律从来不是只靠幸运选材得出:大量性状、足够样本和后续定位共同决定能否看见偏离独立分配的信号。
我们看玉米中的一个例子:
- 假设玉米籽粒颜色基因与质地基因位于同一染色体且距离较近,亲本型组合在后代中会多于重组型。
- 若交换发生在两个基因之间,仍可出现较少的黄色皱粒或白色圆粒。
- 具体显隐性和基因符号必须由真实材料确定,这里的Y/y、S/s只表示一个教学设定。
项链比喻可以说明相对位置,却不能表示基因必须整体出售。染色体在每次减数分裂中都有机会重组,重组概率还随物种、性别和染色体区域改变。
交叉互换打破连锁
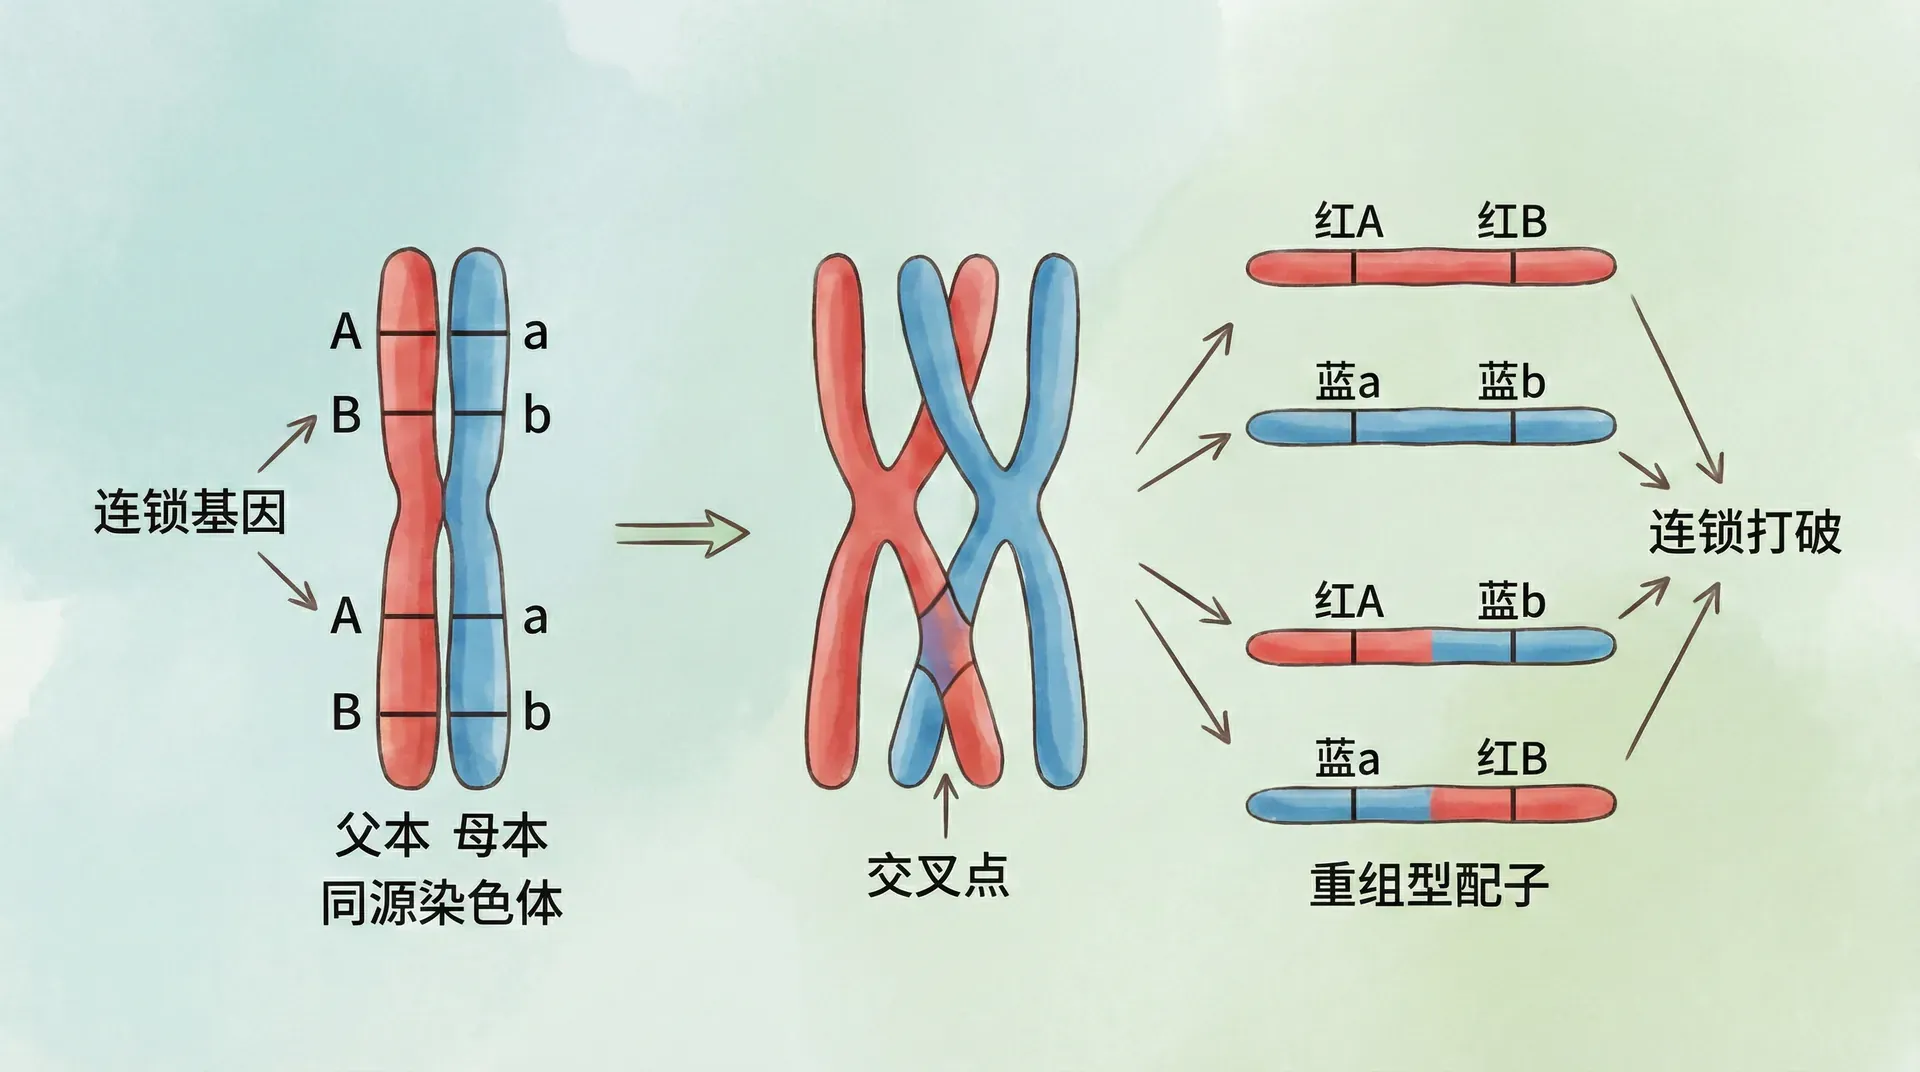
亲本型组合多、重组型组合少,是连锁的典型信号。判断时要统计足够后代,并排除存活差异、分离畸变和表型判定错误;少数新组合并不自动全部来自一次交换。
减数分裂前期,同源染色体配对,非姐妹染色单体之间发生同源重组。DNA断裂、链交换和修复形成交换或非交换产物;“两条项链碰到后换珠子”只能表达最终结果。 许多交换事件不会改变基因数,却会改变一条染色单体上等位基因的搭配;少数错误修复才可能造成缺失、重复或更大的结构变化。
下方果蝇示例用于观察亲本型和重组型比例。读数应标明基因、杂交方向、样本量和重组率,不能只凭颜色把所有新组合解释成交换。
交换不会让基因脱离染色体,而是在同源染色体之间重排片段。它降低两个位点的关联,使后代获得新的等位基因组合,同时也参与同源染色体正确分离。
1913年,摩尔根的学生斯特蒂文特利用果蝇重组率绘制了第一张遗传连锁图。两个位点之间重组率较高通常表示遗传距离较远,但最大观察值接近50%,多次交换会使物理距离与遗传距离不再线性。 遗传图距用厘摩表示,1厘摩约对应1%的重组频率;它反映的是重组概率,不是固定数量的DNA碱基,着丝粒附近等区域会明显偏离。
遗传作图可用于多种有性生殖生物。果蝇和玉米便于获得大量后代,人类则主要依靠家系和群体统计;现代测序能直接看到标记,却仍需要重组模型把序列位置与遗传传递联系起来。
组合数量的惊人增长
仅考虑独立分配,每位亲本可产生约2²³种整条染色体组合。两位亲本的配子随机结合,理论组合数为2⁴⁶,还没有计入交换和新突变。
对每一对染色体,子代可从父亲的两条同源染色体中取一条,也可从母亲的两条中取一条,因此按整条染色体计有四种亲本来源组合。不同染色体对近似独立时,这个选择相乘。
4²³等于2⁴⁶,约为7×10¹³,也就是约70万亿种理论组合。它是假设不发生交换、各组合等概率且染色体正常分离的下限模型。
交换把每条染色体变成祖源片段的组合,使实际可能性远高于整条染色体模型。独特基因组并不等于独特人格或命运,表型还受到调控、发育和环境影响。 若研究疾病风险或数量性状,还需考虑许多位点的小效应、基因互作和环境暴露;组合数很大并不等于每个组合都产生明显不同表型。
多倍体与基因的协同作用
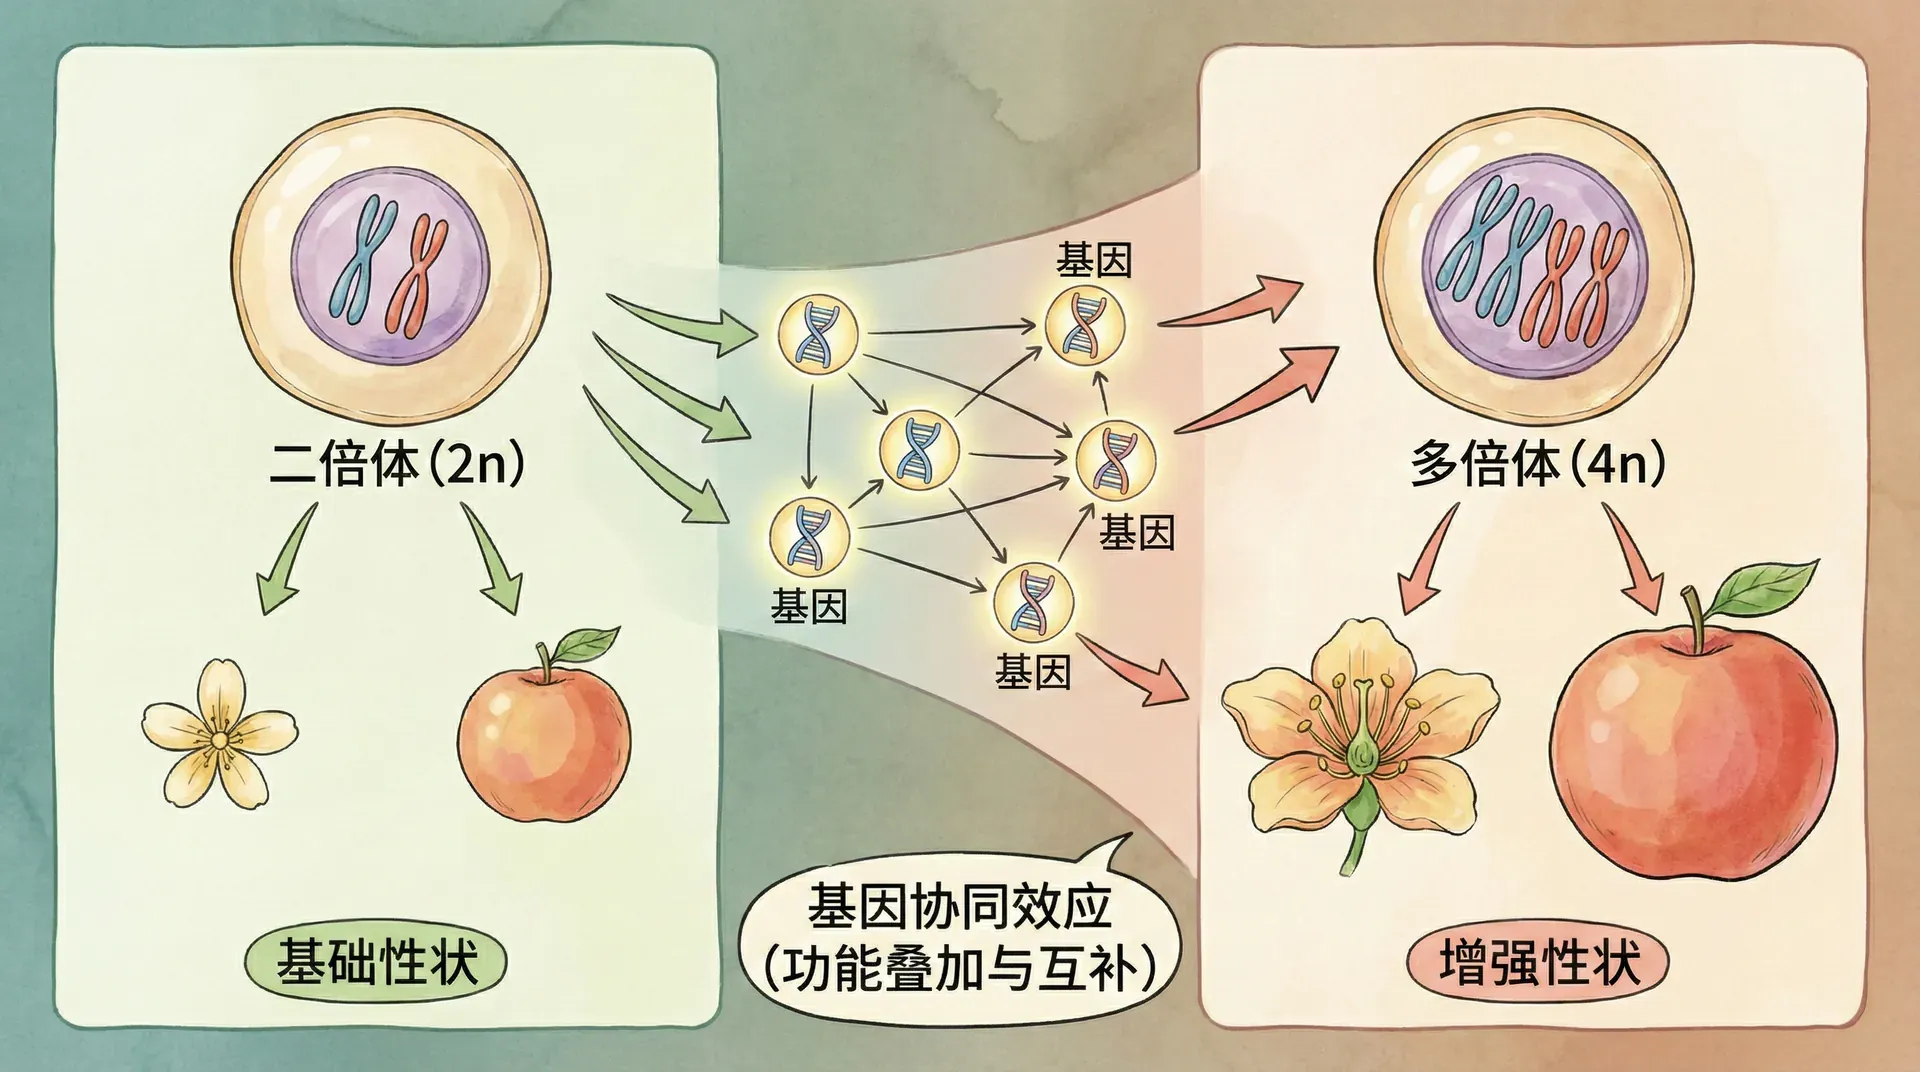
多倍体指细胞或个体拥有三个或更多完整染色体组。它在植物中常见,在动物中也有实例;同一生物的部分组织还可能通过内复制形成多倍体细胞,而整个个体仍保持原倍性。
德弗里斯的月见草研究推动了突变理论,但材料包含复杂的染色体环和重排,不能说他首次证实了简单染色体组加倍。多倍体现象由细胞学计数和杂交分析逐步建立。
多倍体产生的机制如下所示
完整个体多倍化常由未减数配子结合、不同倍性亲本杂交,或受精后极早期染色体加倍形成。普通体细胞一次复制而不分裂,往往只产生局部多倍体或嵌合,不能自动把二倍体胚胎变成稳定三倍体。
染色体组增加会同时改变基因剂量、细胞大小、减数配对和调控平衡。结果可能是器官变大、发育延迟、不育或几乎没有明显外观变化,取决于物种和倍性。 三倍体常因同源染色体难以均衡分离而育性降低,偶数倍体也要看同源染色体能否成对配对;倍数本身不能直接预测结局。
“乐器数量翻倍”可以提示剂量改变,却不能说明基因会自动协同产生更优性状。许多调控蛋白和靶基因一起加倍后比例保持不变,另一些通路则因剂量不平衡而受扰;长期还可能发生基因丢失和功能分化。
多倍体在农业上的应用
多倍体育种利用倍性对育性、器官和代谢的影响,但每一种材料都要单独评价。
小麦、棉花和部分甘蔗谱系具有多倍化历史,现代育种会利用或调整这些基因组。多倍体不是“经济价值放大器”,新品系仍需检验产量、品质、育性和生态适应。 育种者通常还要连续选择和回交,把倍性带来的目标性状与不利性状分开,并在多地点试验中检验稳定性。
染色体倒位、易位、缺失和重复通常来自DNA断裂后的异常修复或不等交换,并不是正常交叉互换的常规结果。重排可能改变基因剂量、断开基因或影响位置调控,也可能在表型上近乎中性。
多倍化和结构变异都是遗传变化的重要来源,但是否促进多样化取决于它们能否传递、对适合度的影响以及种群过程。大变化并不天然比点突变更有创造力。
总结
重组重排已有等位基因,突变则产生新的序列和染色体变体;两者都重要,不能把多倍体和重排排除在“真正突变”之外。广义突变本来就包括从单碱基到整个染色体组的变化。
扑克牌比喻适合区分洗牌与改牌,但染色体重复会增加牌,缺失会丢牌,重排还会改变相邻关系。遗传多样性不是由一种“最革命性”变化独占来源。
等位基因、重组、结构变异和倍性共同影响表型。研究者需要先说明变异尺度,再分析分子效应和群体频率;这样才能把细胞学观察与进化结果连接起来。