动物的繁殖策略与种群调节
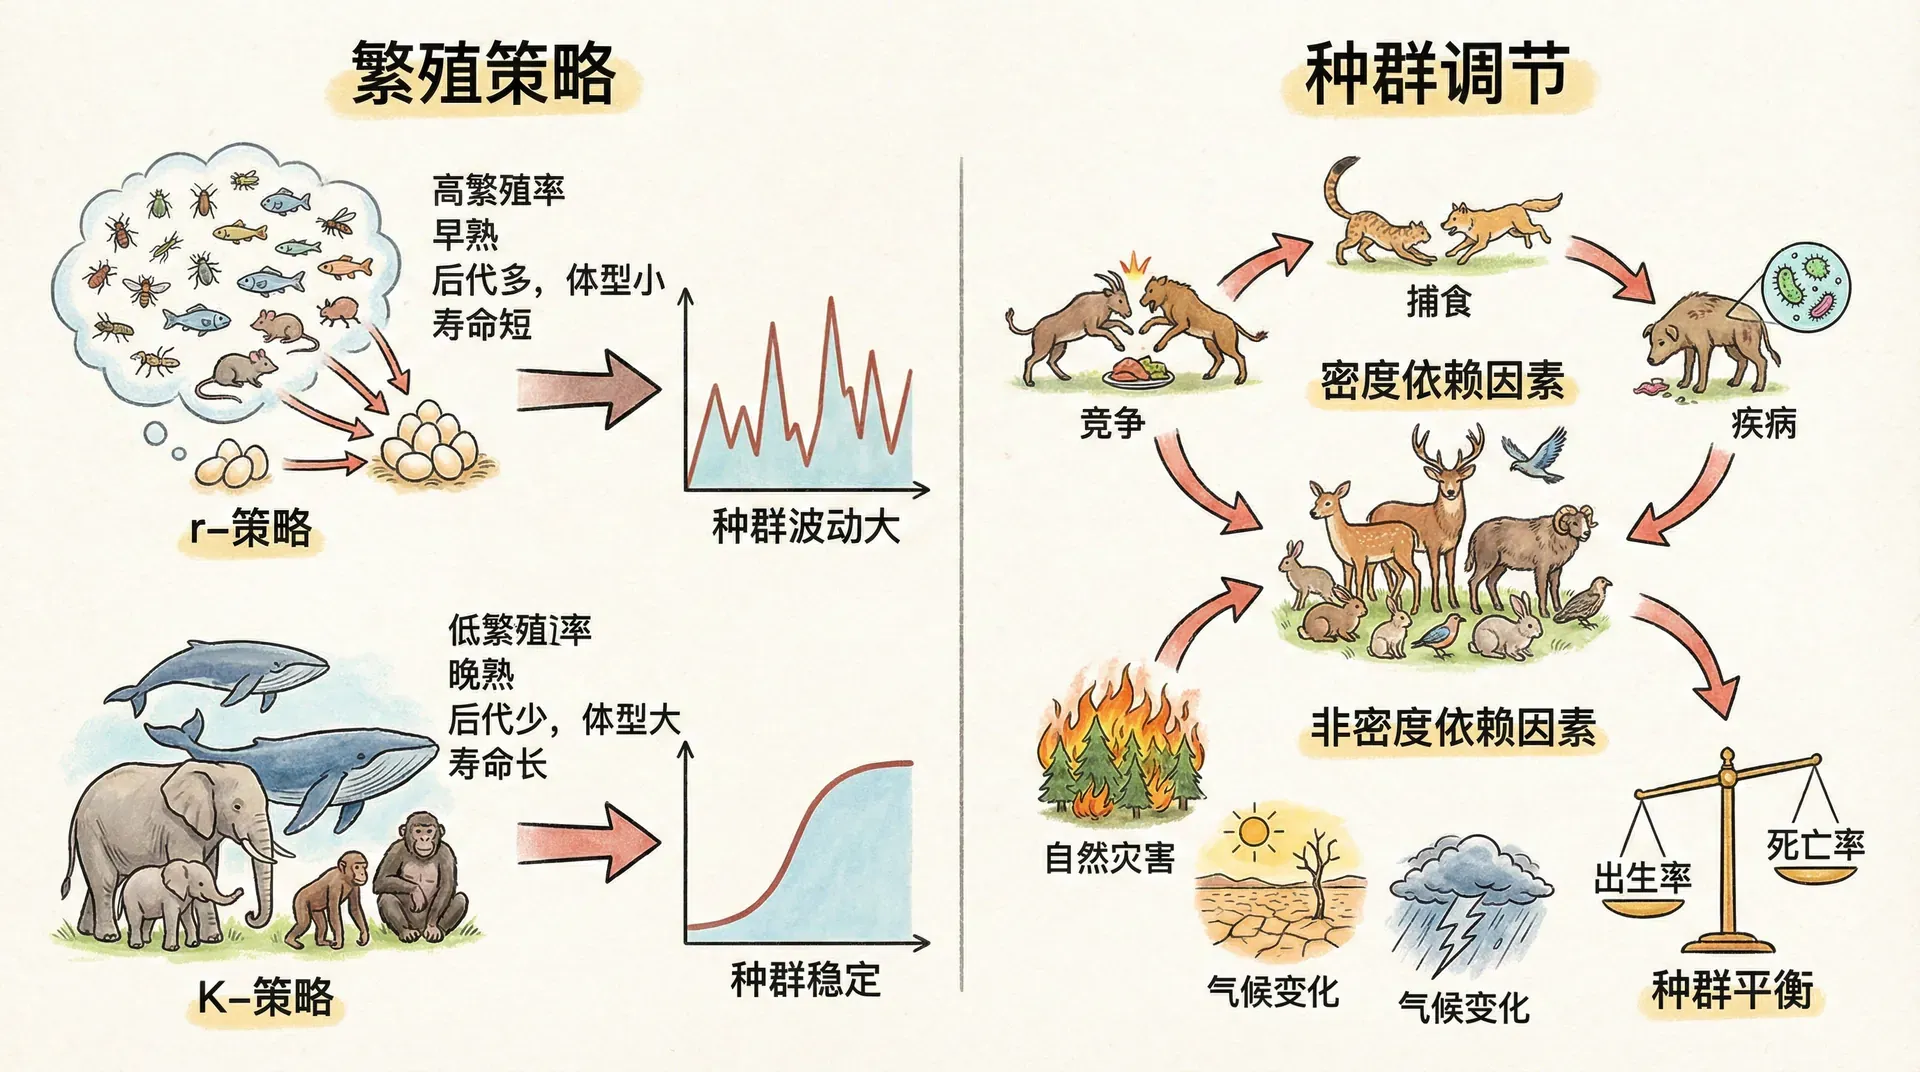
繁殖的核心在于如何在后代数量、每个后代的资源投入和亲代自身未来生存与繁殖机会之间分配有限的能量和物质。某些动物倾向于一次性产下大量、体型较小的后代,而另一些动物则选择产下较少但对每个后代投入更多精力与资源,并在较长时间内进行保护和抚育。这两种极端都可能在各自特定的生态环境中取得繁殖成功,没有哪一种模式绝对优越,也不能简单用“高等”或“低等”来评价。实际上,自然选择塑造了丰富多样的繁殖策略,每种方式都是对特定生存条件的适应。
此外,种群数量的变化并不是因为物种“自觉”地为维持生态平衡而调整自身繁殖行为。种群数量是出生、死亡、迁入和迁出等动态过程共同作用的结果。这些过程又受到资源多少、天敌压力、疾病流行和气候变化等多重外部因素的影响,从而在不同时间和空间尺度上不断波动。每个个体的行为或许只关心自己的生存和繁殖,但所有个体的决策汇聚起来,才共同构成了复杂的种群动态。
繁殖策略的核心决策
生命史理论把能量分配视为一组权衡。增加当次繁殖投入可能提高现有后代存活率,却也可能降低亲代存活或下一次繁殖机会;增加后代数量通常会减少分配给每个后代的资源。
传统教材常用 选择和 选择描述两端特征,但现代生态学较少把物种永久分成两类。繁殖方式受体形、寿命、死亡来源、环境变动和谱系历史共同影响,同一物种还会随条件调整。
这些维度并不总是捆绑出现。比较具体物种时,应分别测量,而不是先贴标签再解释。
选择适合介绍生命史的两个方向,不能把物种永久归为“数量型”或“质量型”。现代研究更常逐项测量性状与环境。
典型案例扩展
很多鱼类产生大量卵,幼体死亡率也高;大型哺乳动物通常后代较少、照顾时间较长。但体形和亲代照顾只是相关因素,海鸟、章鱼和昆虫中都能找到不符合简单二分的生活史。
大熊猫每胎幼仔少、幼体依赖期长,与熊科发育方式、食物生态和繁殖生理有关。不能把这些特点称为对竹食生活的“最佳方案”,也不能用一个固定成活率概括野生与圈养条件。
种群调节的理论探讨
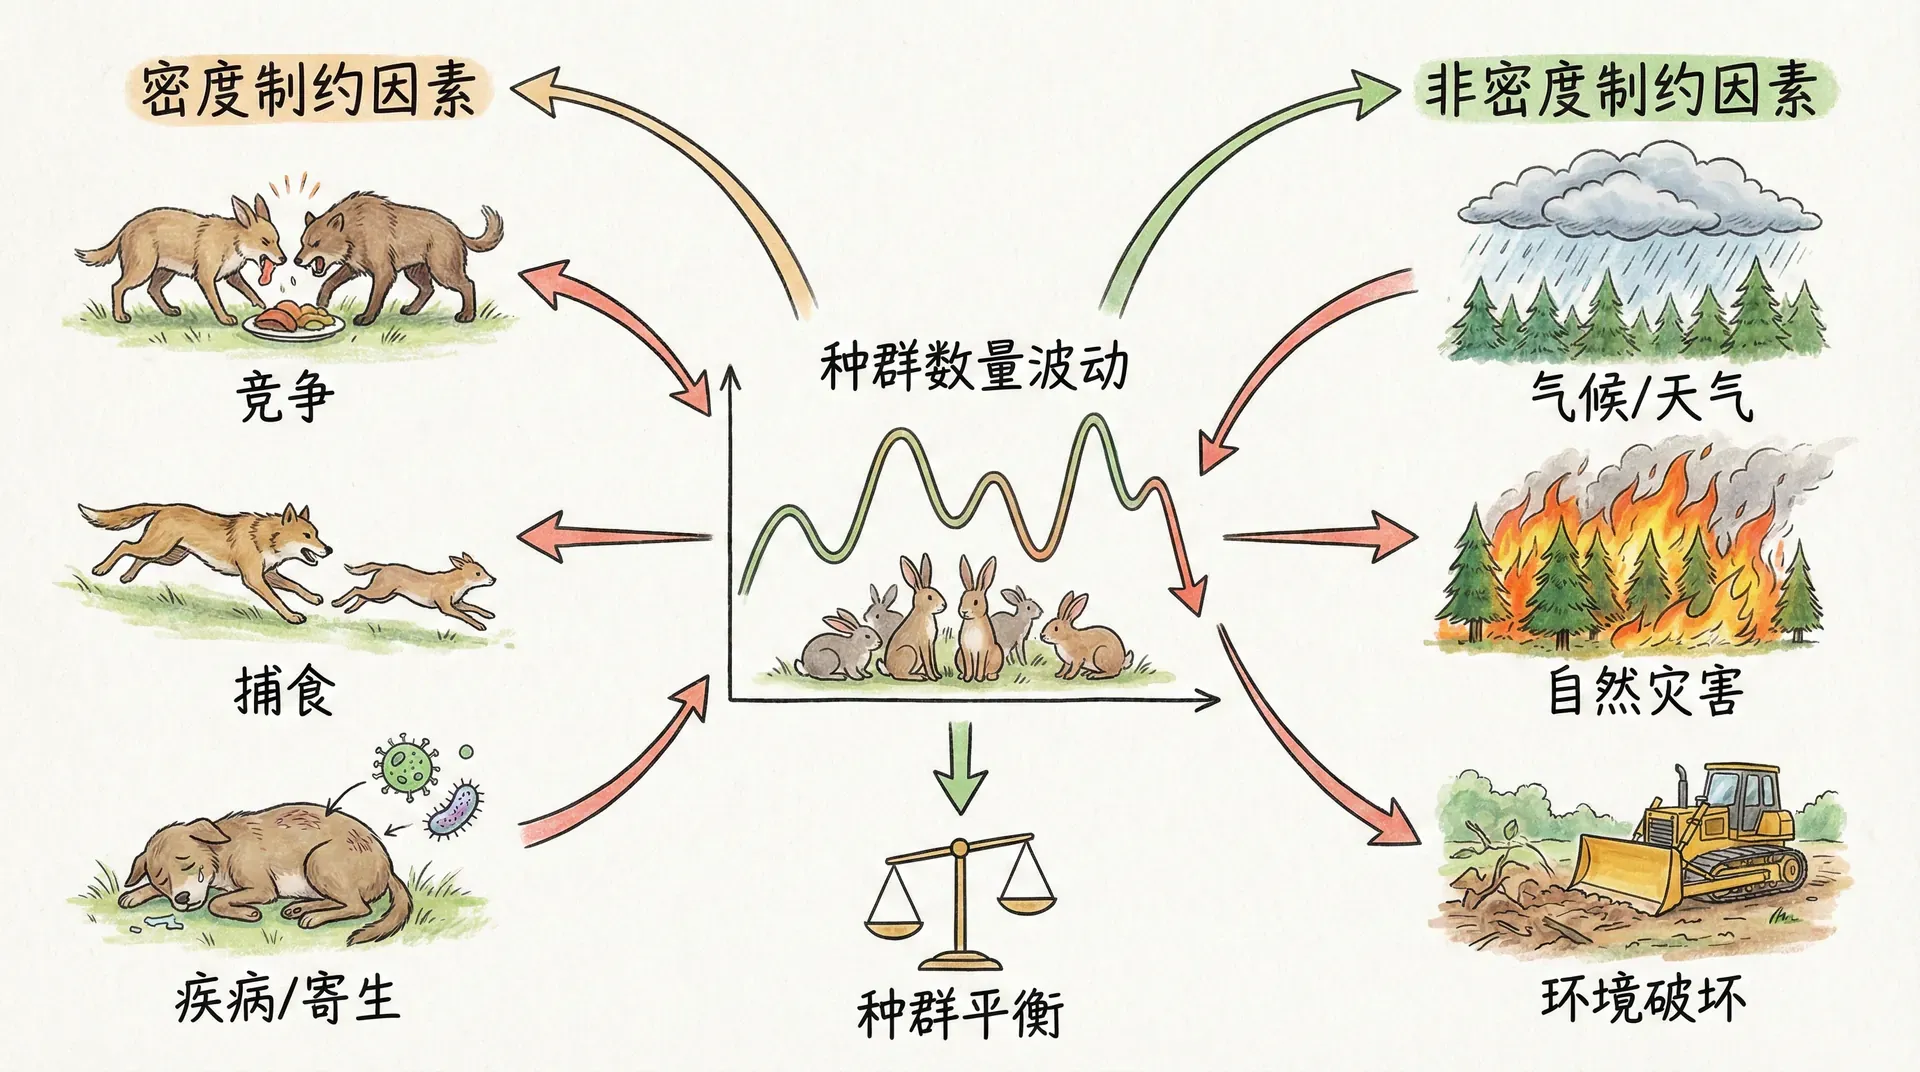
种群在资源充足时可接近指数增长;随着密度上升,食物、空间和疾病传播可能让人均增长率下降。逻辑斯蒂增长模型用环境容纳量 表示长期约束,但真实环境中的 会随季节和气候变化。
密度制约不等于动物集体决定少生。较高密度可通过营养、激素、领地竞争或幼体死亡影响个体繁殖,种群层面的稳定由这些局部过程累积形成。
也有与密度无关的因素,例如极端天气、火灾和污染。小种群还可能出现阿利效应:个体太少时难以找到配偶、共同防御或维持社会学习,增长率反而下降。
领地与繁殖机会
领地可限制繁殖个体数量。若适合筑巢的位置稀少,部分个体即使生理成熟也可能推迟繁殖、迁移或充当助手。领地大小随资源密度和防卫成本变化,没有适用于所有物种的固定阈值。
繁殖机会还可能由社会结构分配。支配个体获得较多机会时,低位个体仍可能通过更换群体、等待、联盟或其他交配方式繁殖。长期亲子鉴定常会修正仅凭观察得到的结论。
最优繁殖策略的科学原理
“最优”只表示在给定模型和环境中使某项适合度指标较高。环境、年龄或个体状态改变,最优解也会改变。自然选择还受到历史约束,现实性状未必到达理论峰值。
拉克窝卵数假说提出,鸟类每窝卵数可受亲代能够成功喂养的幼鸟数限制。实验增减卵数能检验这一点,但捕食风险、亲代寿命和后代质量也会影响结果。
投资质量不只看体重或当年存活。后代学习能力、免疫状态和成年后的繁殖表现都可能重要,因此长期追踪往往会得到与短期观察不同的结论。
生命史权衡没有统一答案。可靠结论应说明比较的物种、环境、时间尺度和适合度指标。
社会结构与繁殖行为
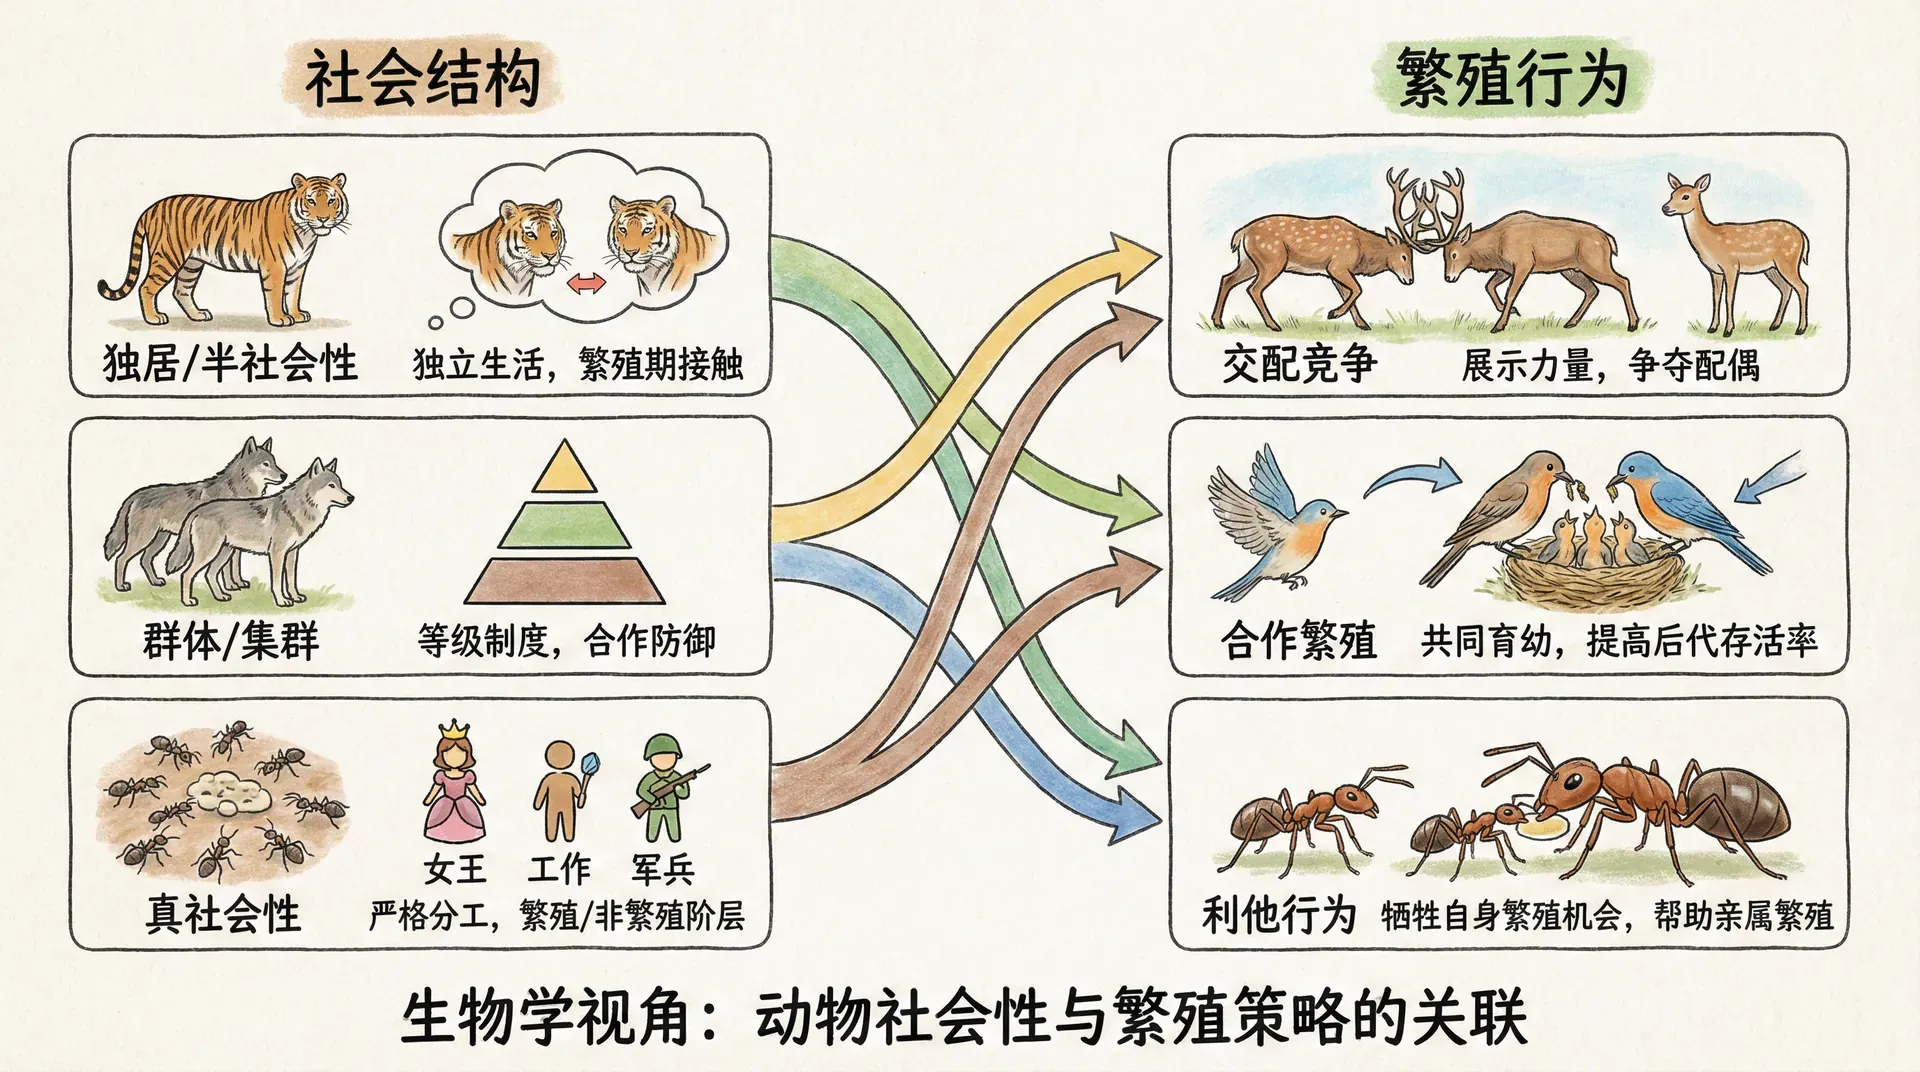
群居生活可以显著提高个体的警戒能力、觅食效率和育幼成效,例如通过集体发现食物来源或轮流守护幼仔,降低外来威胁带来的风险。然而,群体生活同样意味着疾病更易传播,个体之间的资源争夺、繁殖权竞争也更为激烈,甚至会出现幼崽被同伴攻击或驱逐等现象。
动物的社会结构并非仅由单一因素决定,而是由亲缘关系、生态条件和个体互动的复杂作用共同塑造。比如某些物种因资源分布稀疏而形成临时松散的群体,另一些则因血缘纽带维持长期协作。值得注意的是,社会结构的演化主要服务于提升适合度,并不是简单为了控制种群规模或者满足人类对“规范管理”的想象。
社会等级与繁殖权
在一些灵长类、食肉动物和社会性昆虫中,繁殖机会高度不均;在另一些物种中,等级对繁殖影响较弱。观察到“首领”并不意味着它垄断所有后代,遗传亲子鉴定是检验实际繁殖成功的重要工具。
较高地位可能提高配偶和食物机会,也会增加争斗、守卫和压力成本。繁殖成功取决于地位持续时间、群体组成和环境,而不是“最强基因”自动获胜。
群体协作与繁殖协同
协助繁殖中,非亲代个体参与守巢、喂养或防御。帮助者可能获得亲缘收益、学习经验、领地继承或未来互惠;若独立繁殖机会受限,留下帮助的相对收益也会提高。
合作并不消除冲突。帮助者可能减少投入或争取自身繁殖,亲代也可能区别对待后代。研究这些变化能揭示合作得以维持的具体条件。
将动物社会称为“计划生育”或“集体管理”会误导,因为制度需要共同规则和有意识执行。种群结果来自个体行为与环境反馈的累积。
环境变化对繁殖策略的影响
动物可以通过表型可塑性灵活调整繁殖时间、窝卵数、育幼投入甚至迁徙行为,以适应当下环境资源变化。不过,这种调整并非无限制,受到基因、发育进程、生理约束和能获取环境信号的能力局限。例如鸟类和某些鱼类,往往依赖日照长度判断繁殖时机,但如果气候变化致使食物高峰期提前,繁殖信号却未同步调整,就会产生“繁殖—资源”的时间错配,影响幼体成活率。
除了时间错配,环境压力(如极端天气、人类活动或新型污染)也可能导致亲代减少繁殖次数、缩小每窝规模,甚至推迟性成熟。长期来看,这类变化会推动种群演化新的繁殖策略,也考验物种的适应速度与恢复能力。
长江江豚与环境响应
长江江豚的繁殖与幼体存活受水文、食物、航运噪声、渔业活动和污染等多重因素影响。保护时不能把数量变化归因于动物主动降低繁殖,也不能只改变一个变量就假定种群会恢复。
长期监测应同时记录成体数量、年龄结构、妊娠与幼体存活、食物资源和人类干扰。单年出生数可能受偶然波动影响,多年趋势才能帮助区分限制环节。
保护措施需要恢复栖息地连通性、降低非自然死亡并维持足够有效种群大小。圈养繁育可以补充部分个体,却不能替代自然生态系统。
总结
动物的繁殖方式是生命史权衡的具体体现,动物必须在后代数量与质量、当前繁殖与未来繁殖机会之间作出抉择。不同种类在生存环境和进化压力下发展出各自独特的繁殖策略。传统上往往以r-选择与K-选择两极来描述,但真实情况远比分类更为复杂,需要结合实际数据深入分析每个物种的具体特征和环境背景。
种群数量的变化,不仅仅取决于个体的出生、死亡等生理过程,还受到食物资源、天敌、疾病和栖息地变化等生态因素的影响。密度制约和阿利效应等机制,会导致种群在过多或过少时,出现生长受限或灭绝风险。
要真正理解和管理野生动物种群,我们需要综合考虑遗传多样性、社会结构、外部压力因素和历史环境变迁。只有找出种群增长与恢复的真正限制环节,才能制定出科学有效的保育措施,实现持续的生态平衡。