雌雄之间的博弈
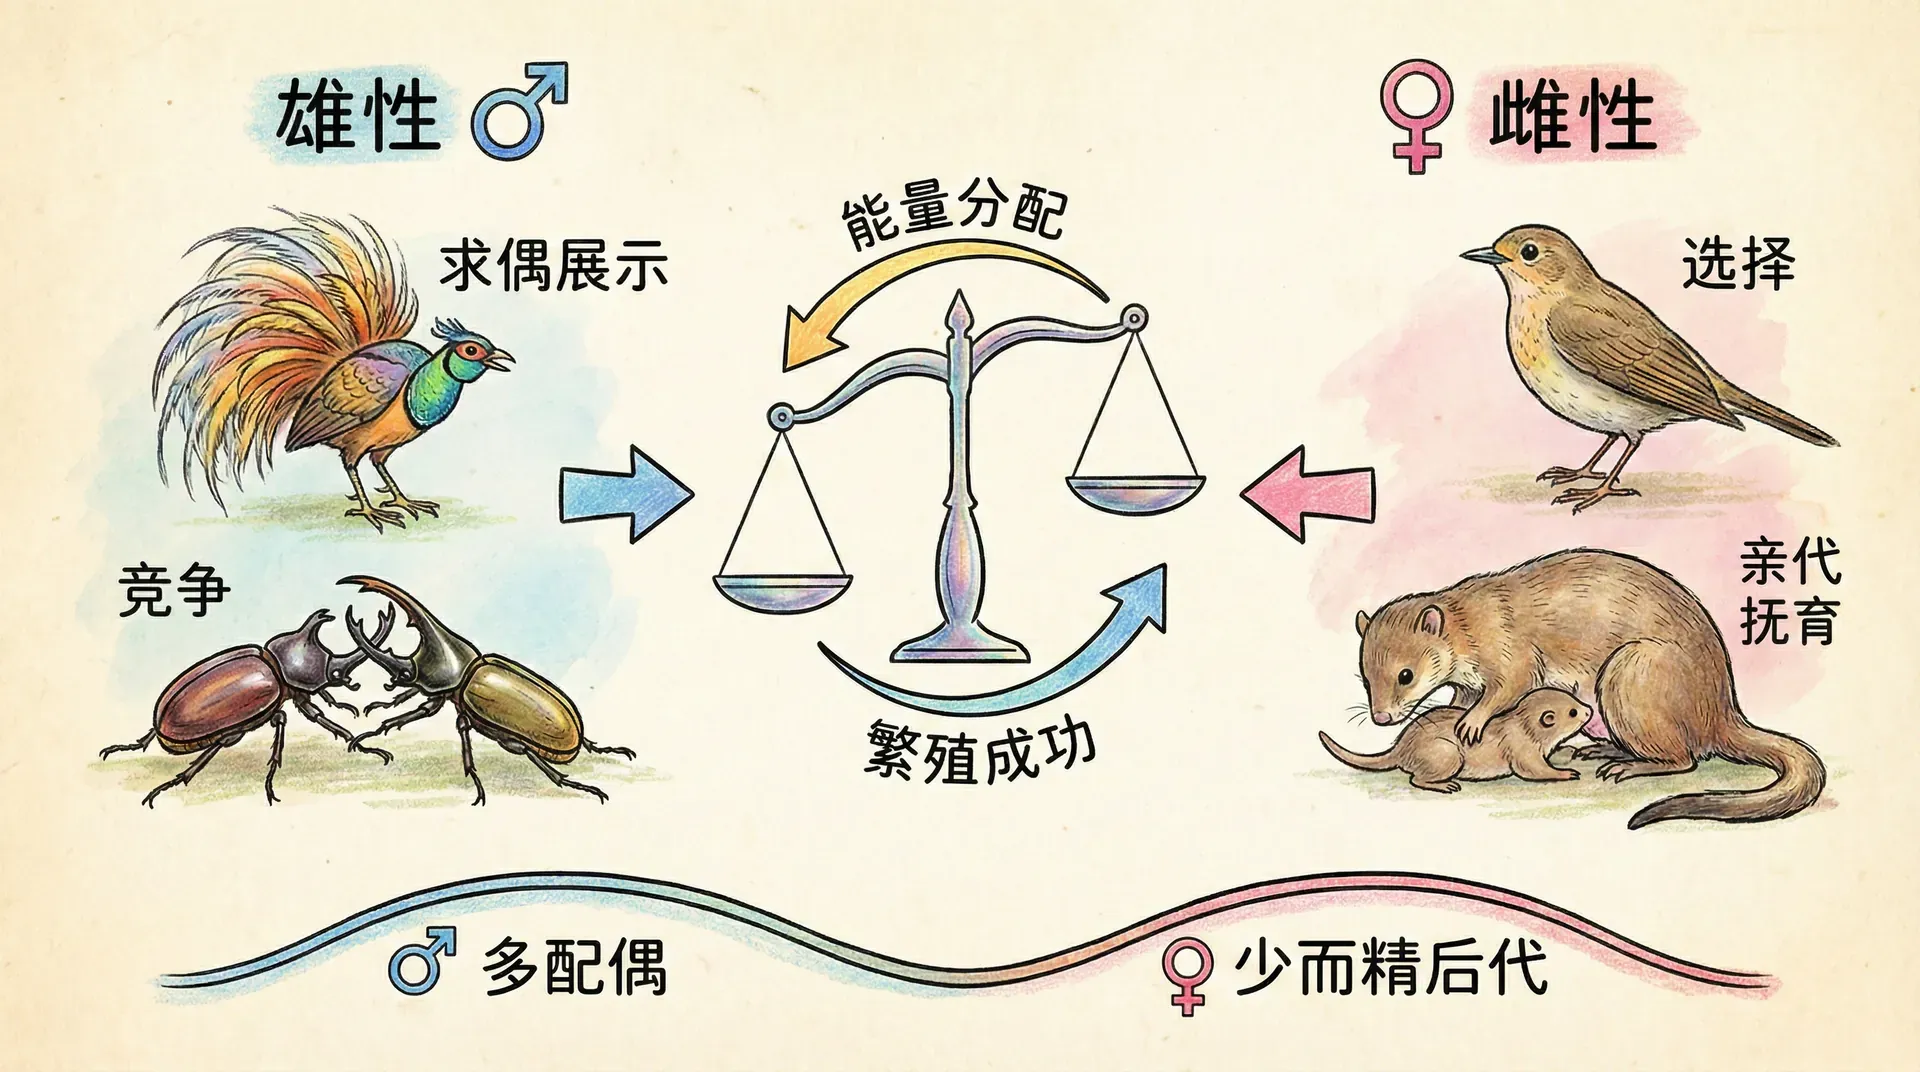
有性生殖中,配子大小、亲代投入和配偶竞争常会造成不同的选择压力。把这些差异称为“博弈”,是为了分析双方利益可能一致也可能冲突,并不表示每个个体都按固定性别脚本行动。
生物的性别系统非常多样。许多物种雌雄异体,也有雌雄同体、环境决定性别或一生中改变性别的物种。任何关于两性差异的概括,都需要限定物种和生态条件。
“雌”和“雄”在这里按产生的大配子与小配子定义。染色体、性腺、外形和行为的对应方式因物种而异。
卵通常较大并提供细胞质,精子通常较小且数量多,这叫异配生殖。它影响配偶竞争的起点,却不能单独决定全部行为;育幼方式、配偶可获得性、死亡风险和社会关系都会改变结果。
性别比例的进化平衡
在许多二倍体、随机交配且亲代投入近似的种群中,费希尔原理预测对稀少性别的投资会获得较高边际收益,选择因此常把出生时的性别投资推向接近相等。关键是亲代投资回报,不是家庭有意识“补齐”人口比例。
若产生两种性别的成本不同、局部配偶竞争强、近交常见或一方能帮助亲代,平衡比例可能偏离 。膜翅目昆虫的单倍体—二倍体遗传方式也会改变性别分配条件。
接近 是特定假设下的投资平衡,不是自然界必须遵守的人口配额。
模型中的比例还要与出生、成年和繁殖群体的比例区分。两性死亡率和迁移率不同,同一个种群在各阶段会呈现不同数字。
亲代投资的不对称
亲代投资指的是父母为提高现有子代的生存和繁殖成功所付出的资源,而这些付出通常会减少其为其他子代或未来繁殖所作的投资。这些投资可以包括配子的产生、妊娠、产卵、守巢、哺育、供食、防御和保护等方面。
虽然两性的初步区别源于配子的大小和数量,但亲代投资的后续阶段却可以由任一性别担当。例如,鱼类中有的物种由雄性守卵,鸟类经常出现双亲共同育雏。不同物种和演化策略影响着两性在各阶段的投资分工及其对繁殖策略演化的影响。
鸟类中双亲照顾常见,海马和海龙由雄性育幼,一些鱼类主要由雄性守巢,也有物种几乎没有育幼。哪一方投入更多,取决于亲子确定性、照顾对幼体的增益、再次交配机会和成体生存成本。
投入较多的一方通常更谨慎选择配偶,投入较少且繁殖机会差异较大的一方可能竞争更强。但当照顾角色或配偶数量改变,这些倾向也可反转。不能把统计趋势写成所有雌性或雄性的天性。
雌性的反制策略
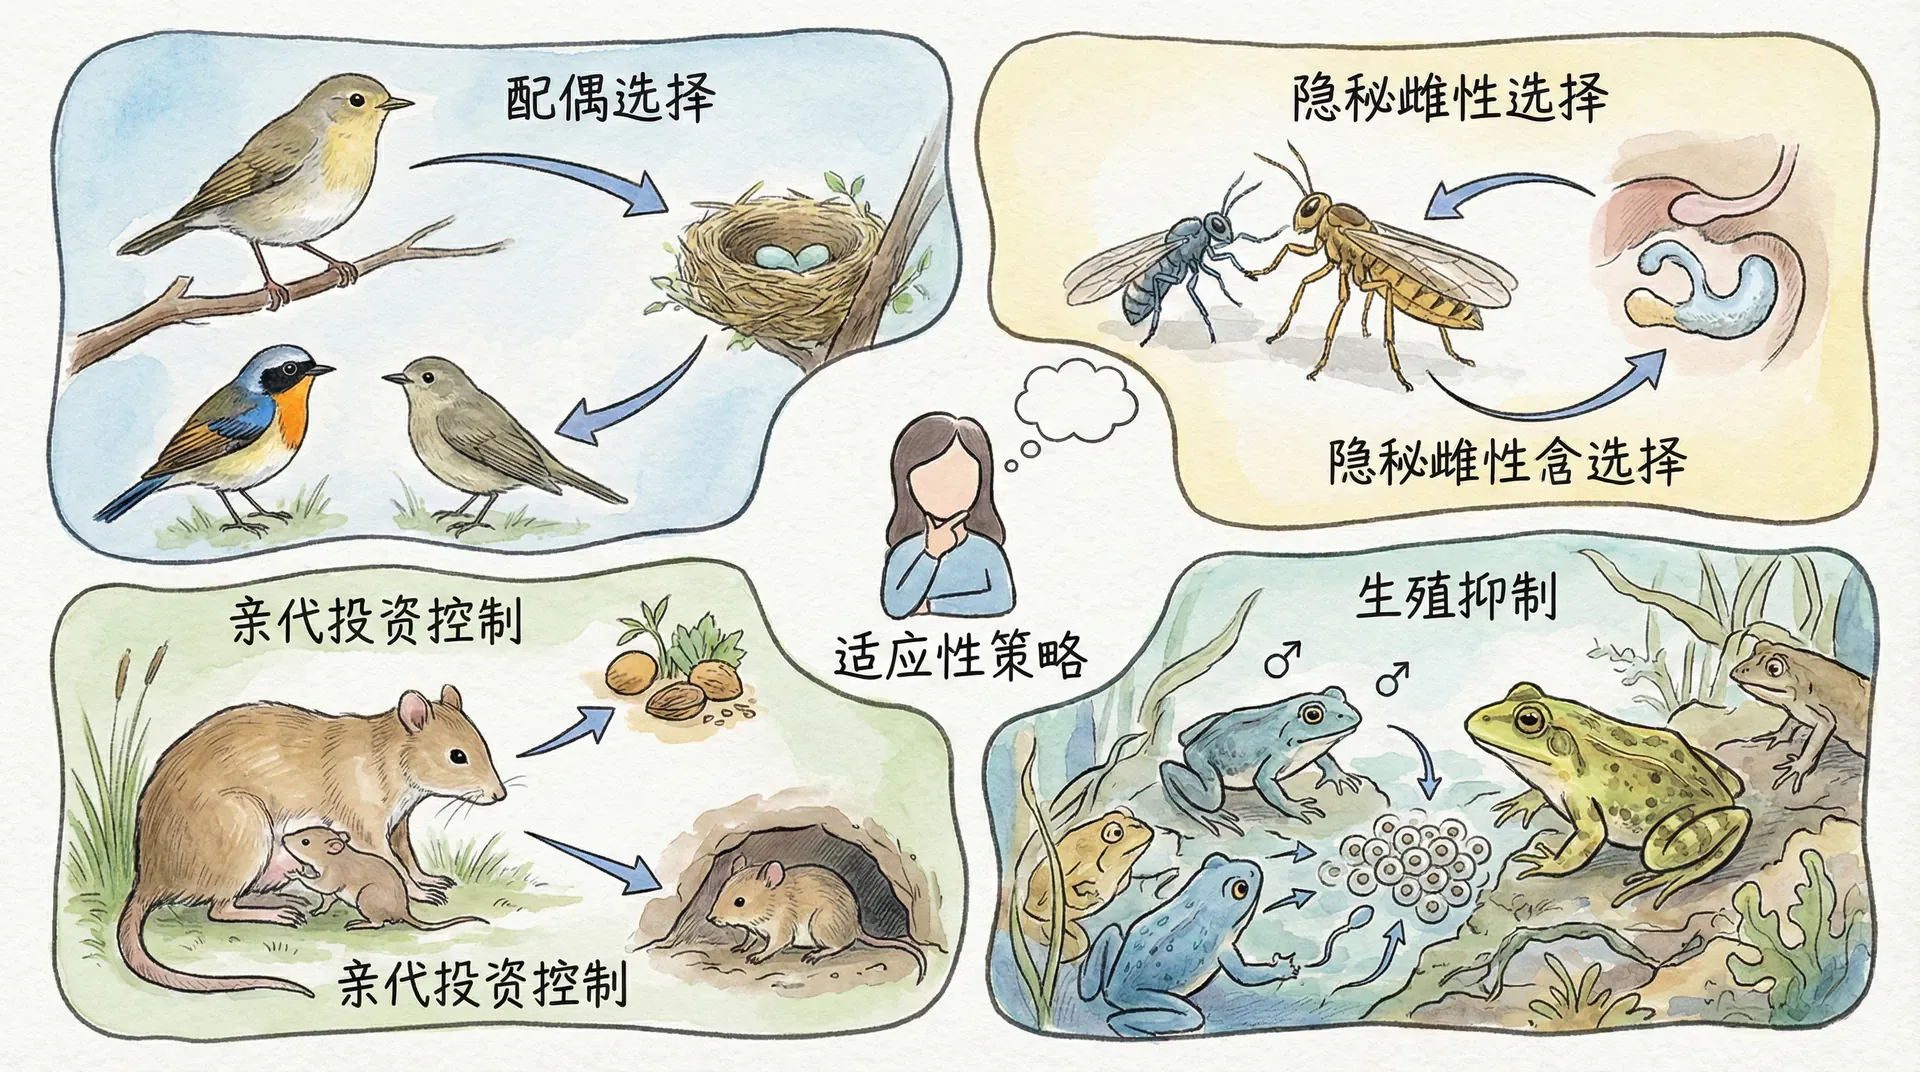
性冲突发生在某项行为提高一方繁殖成功,却降低另一方收益时。拒绝、选择、隐蔽交配、精子储存和配偶防卫都可能参与。称为“反制”不表示个体理解进化目标,而是不同性状在共同演化中相互改变选择条件。
配偶选择可能依据领地、育幼行为、求偶展示或与自身基因的相容性。观察到偏好后,还要检验偏好是否稳定、信号是否可靠,以及后代或亲代究竟获得什么收益。
策略一:家庭型伴侣
当幼体需要双亲照顾时,能守巢、供食或防御的伴侣可能提高后代存活。行为比单一外表更能反映未来投入,但个体过去的表现也未必完全预测下一次繁殖。
配对关系也会随季节和繁殖失败而改变。把某物种称为终生忠贞或一方必然抛弃另一方,往往忽略了群体与年份差异。
策略二:追求强者基因
“好基因”假说认为某些展示可反映健康或遗传质量,选择者可能让后代获得间接收益。检验它需要证明展示具有遗传基础、与适合度相关,而且偏好确实提高后代表现。
另一种可能是费希尔失控:偏好与展示发生遗传相关,即使展示不直接反映生存质量,也可共同增强。感觉偏向、物种识别和避免近交同样可能产生配偶偏好。
障碍原理提出昂贵信号较难伪造,但“越浪费越真实”不是普遍规律。信号可靠性可以来自生理约束、社会惩罚或共同利益,需要逐个系统验证。
多个假说可以同时解释偏好。比较它们,需要让每个假说给出不同、可检验的预测。
两性差异的表现
性选择能够导致雌雄之间在体形、颜色、武器(如鹿角、鸟类的尾羽)以及各种行为上的显著差异。这些表现在动物界极为常见,有时甚至成为鉴别雌雄的直接标志。
差异的程度受多种因素影响,比如配偶数量的分配是否均衡、父母对后代的照顾方式、以及物种所处的生态环境等。即便是近缘的物种,雌雄差异的表现形式和强度也可能大不相同,反映了性选择压力在不同分支中可以产生多样化的进化路径。
外表装饰
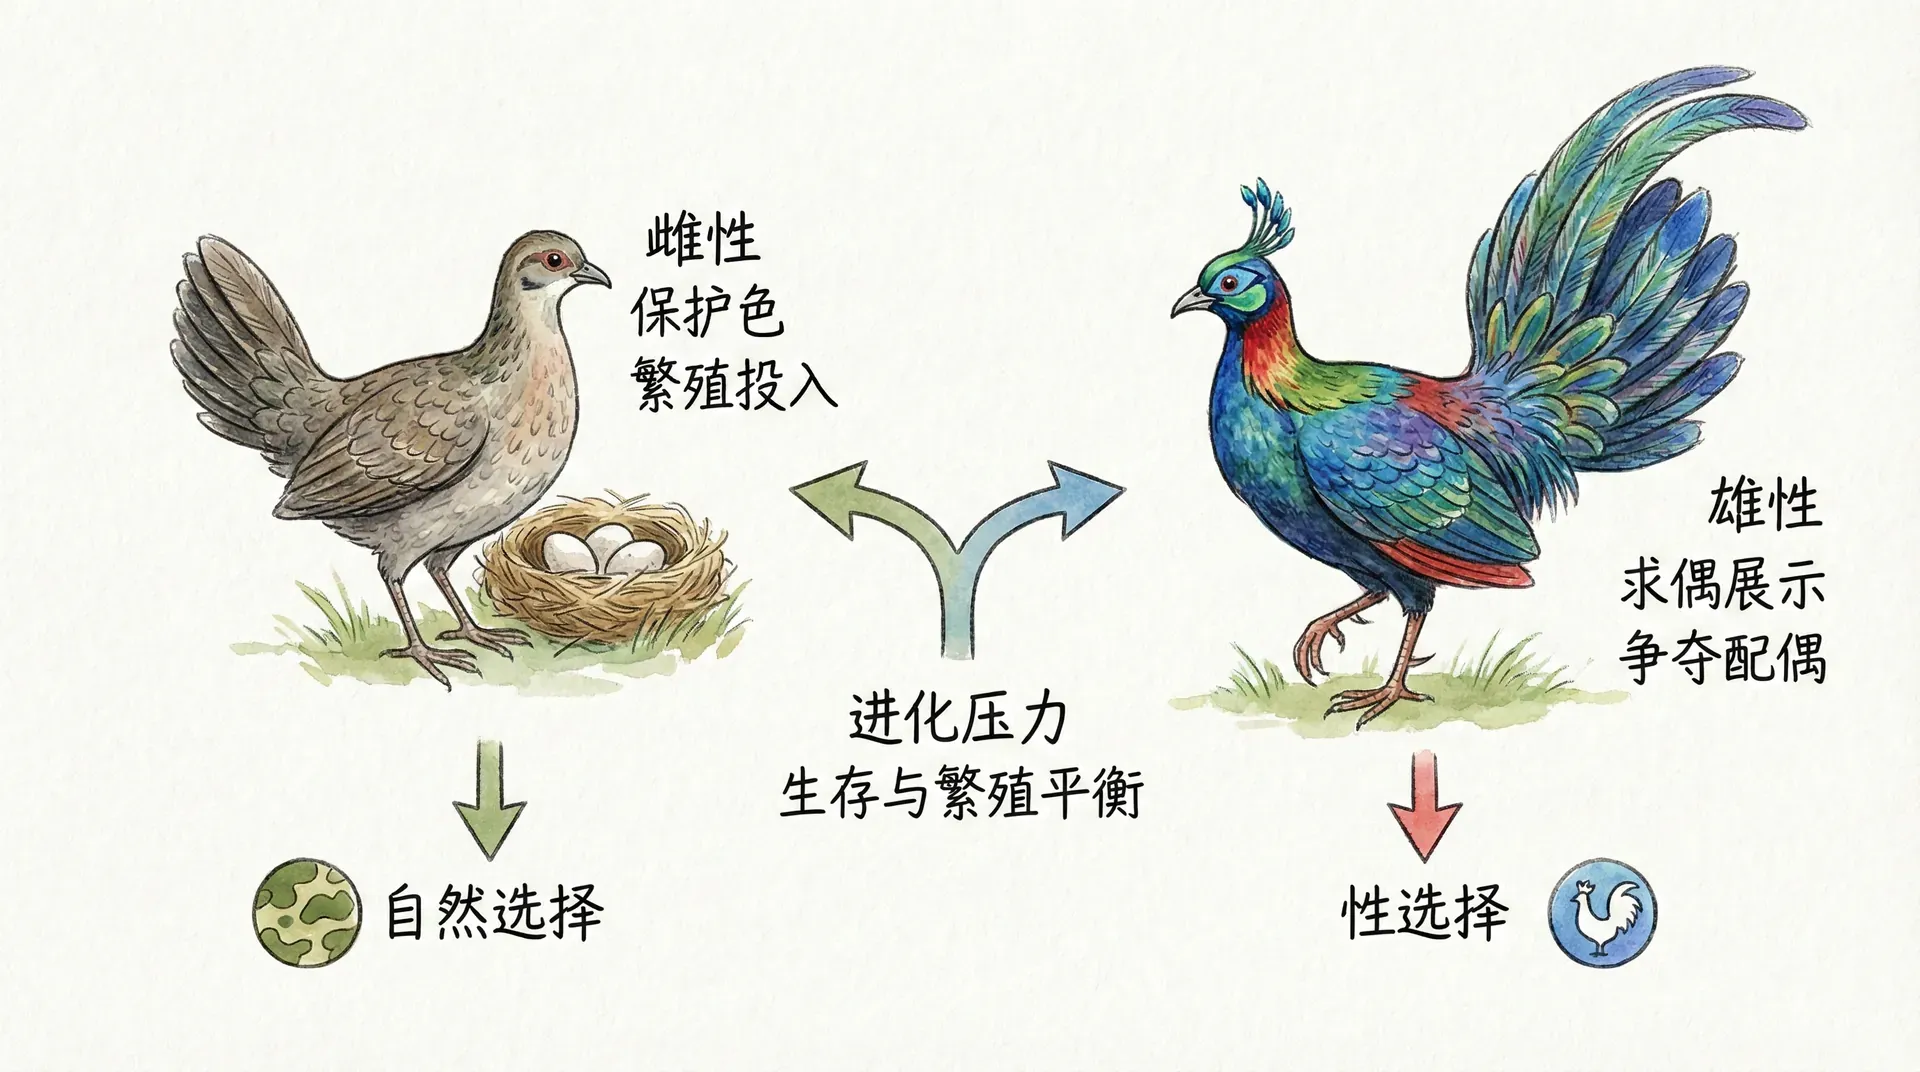
孔雀尾羽、鹿角和鸟鸣等外表装饰不仅用于吸引异性,也常在同性间竞争中发挥作用。这些特征能够传递如健康状况、抗病能力或体力等状态信息,有时也反映了携带者过往在生存或竞争中的优势。与此同时,偏好和展示可以在进化中互相反馈,导致特征的不断夸张或复杂化。
不过,这些夸张的展示通常伴随较高的代价。例如,长尾羽可能增加被捕食的风险,巨大的鹿角也需消耗额外资源来生长和维持。因此,外表装饰的具体形态往往是“性选择”与“自然选择”多方面压力权衡后的结果。例如在不同环境下,展示的夸张程度和类型会因生态风险、资源分布或捕食压力而发生变化。
不能从一项装饰直接判断个体“基因更强”。免疫、营养、年龄和寄生负担都可能影响表现,研究者需要重复测量并追踪真实繁殖成功。
配偶选择的挑剔程度
选择成本高、潜在配偶差异大时,比较配偶可能更有收益;配偶稀少或繁殖季短时,过度挑选会错失机会。同一个体会随年龄、状态和环境改变标准。
配偶选择不是单向过程。双方都可能评估,也可能在不同繁殖阶段争夺照顾和资源。用“雌性挑选、雄性展示”概括全部物种,会遗漏大量双向选择和角色反转。
交配倾向
一夫一妻、一雄多雌、一雌多雄和多雄多雌都可在动物中出现,社会配对与遗传亲子关系还可能不同。交配系统由资源分布、育幼需求和个体密度等条件形成。
频繁交配可能提高受精机会,也增加时间、能量、疾病和冲突成本。不存在所有雄性都追求数量、所有雌性都追求质量的绝对规则。
人类社会的思考
人类的生殖和配偶选择不仅有生物演化的基础,还受到社会、文化、技术等多方面因素的影响。避孕、法律、经济和性别观念等变数,使得用动物模型直接推断人类行为常常过于简单,容易产生刻板印象。
进化心理学的假说必须在不同文化和社会环境中进行严谨检验,不能只用单次或单一文化的调查来判定普遍规律。当下观察到的男女行为差异,可能来源于生物和社会化的共同作用,没有哪一个比例或表现是确定不变的。
亲密关系中的同意、平等和责任属于伦理和社会制度范畴,不是进化过程单方面决定的。生物学的核心价值在于揭示行为的多样性、条件性,而不是为性别、外貌或收入等贴上“天生”的标签。理解“博弈”是权衡合作与冲突的结构,有助于避免把物种层面的统计趋势误用于个体判断。