生存竞争中的策略选择
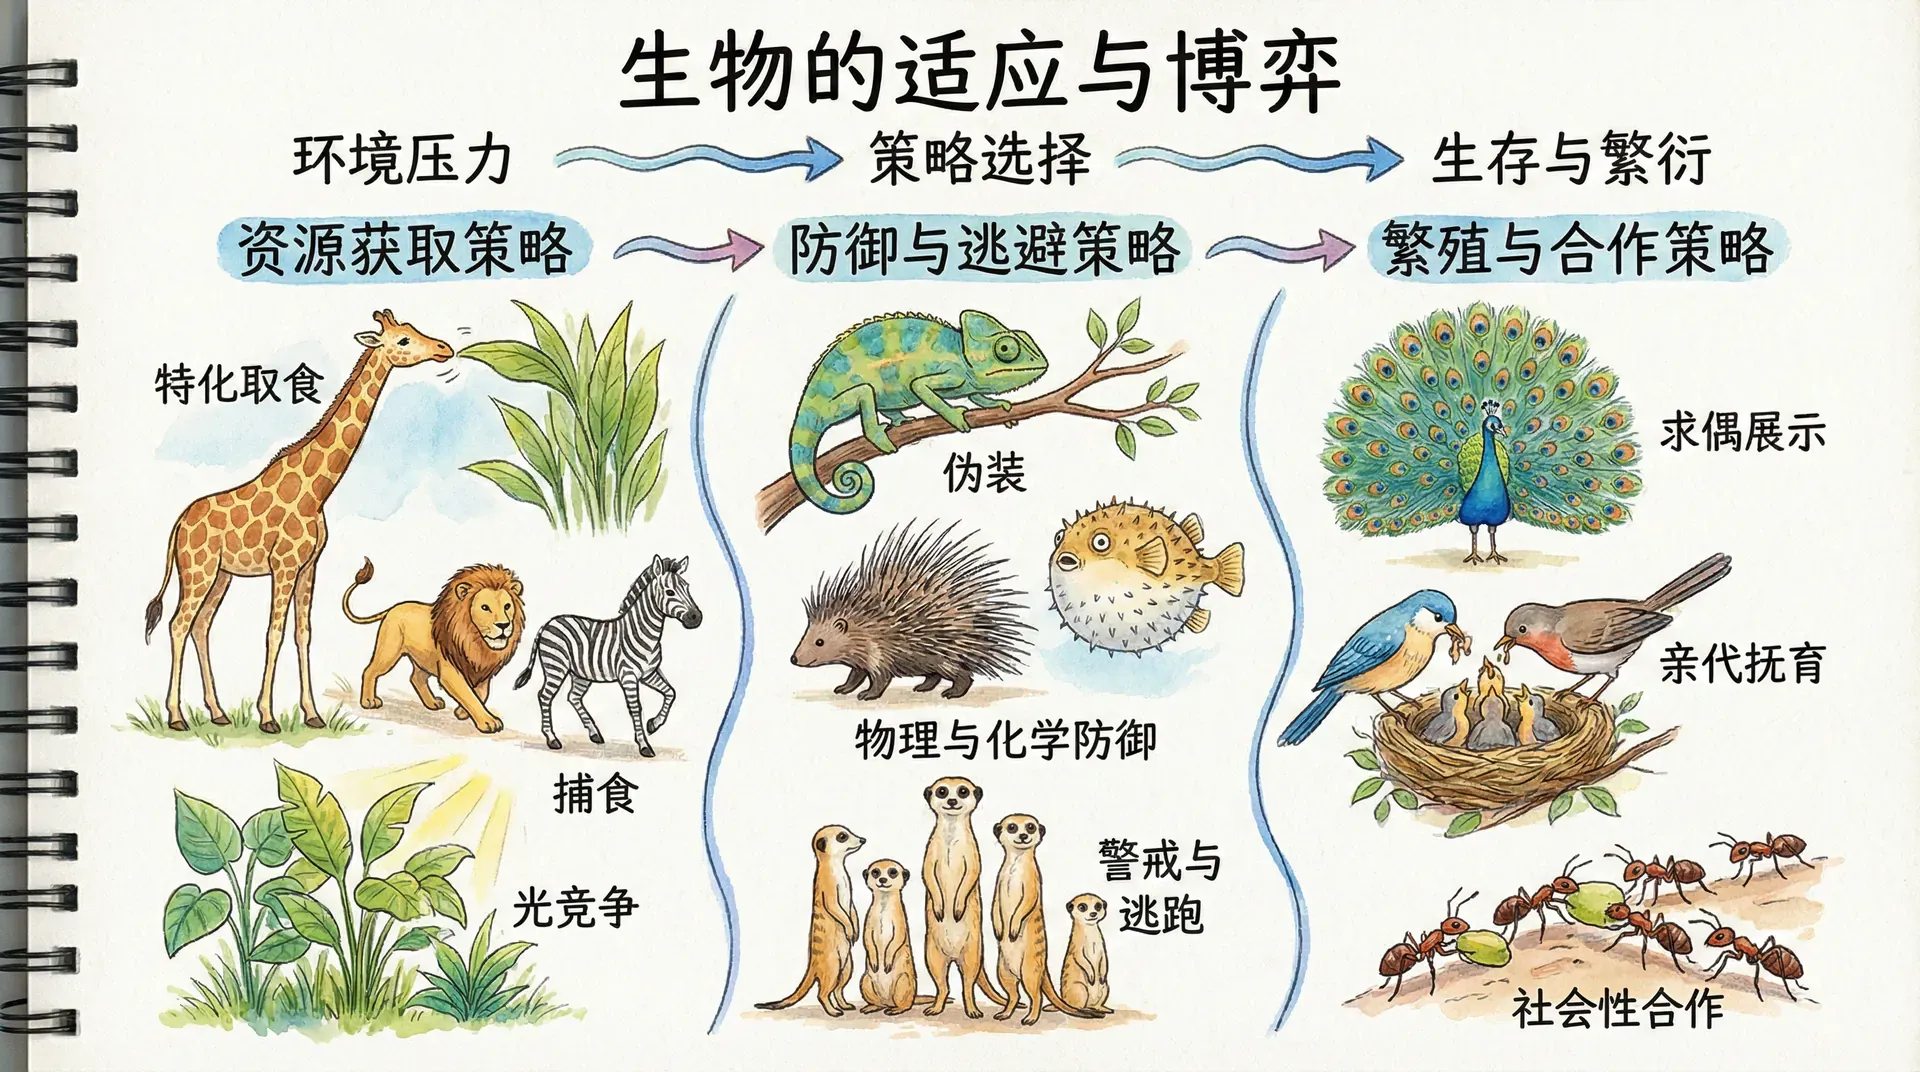
同种动物会争夺食物、领地和配偶,但冲突很少等同于“不惜一切代价”。受伤会降低觅食和繁殖能力,打斗还消耗时间与能量。许多行为因此表现为展示、评估和退让,让个体在冲突升级前获得信息。
行为生态学用成本与收益研究这些选择结果。“策略”指在特定条件下形成的一套行为规则,不表示动物经过数学计算,也不表示基因在幕后制订计划。
策略是研究者对行为规则的概括。动物可依靠感觉、激素和学习作出反应,不需要知道收益矩阵。
为什么不是殊死搏斗
致死冲突对胜者也可能代价很高。角、牙齿和体形既能用于攻击,也能用于展示,个体常根据对手大小、资源价值和自身状态决定是否升级。若展示足以区分实力,双方都可能避免不必要的伤害。
仪式化行为并非“为了物种利益而克制”。能够根据风险调整行为的个体,往往更有机会在未来继续觅食和繁殖;长期选择由此保留了某些评估和退出规则。
结果也受环境影响。退让后还有其他资源时,争斗价值较低;唯一巢位或繁殖机会受到威胁时,冲突更可能升级。不能用一条固定的“动物守则”解释所有物种。
没有升级为致死打斗,不代表个体在保护物种。较低成本的冲突方式本身就可能提高行动者的长期收益。
斗争的成本与收益
在分析动物冲突时,通常可以从以下几个方面来衡量成本与收益:
- 获得资源的收益:获得领地、食物、配偶等直接提高生存和繁殖机会的好处。
- 展示成本:通过叫声、姿态等非直接体力对抗方式展示,虽然避免了更大风险,但仍然消耗能量,可能吸引天敌。
- 受伤风险:升级为激烈冲突的可能性及其带来的伤害或致残,影响个体后续觅食和繁殖能力。
- 放弃后的替代机会:如果放弃争夺,此后还有没有其他可利用的资源或机会,影响当前冒险的价值。
需要注意,所有这些成本与收益,都应综合考虑其对未来存活和繁殖的长期影响,而不是仅仅关注一次争斗的输赢结果。
资源持有者常比闯入者更愿意防守,这可能来自熟悉地形、先占信息或失去资源后的机会较少。所谓“所有权规则”是统计倾向,实验中改变资源价值或个体状态,行为也会改变。
成本和收益不是固定分数。年龄、饥饿、季节和过去经验都会改变同一资源对个体的价值。动物还会评估相对实力。体形、体力、叫声和武器大小都可能提供信息,但信号只有在难以伪造或欺骗会付出代价时才较可靠。
进化稳定策略
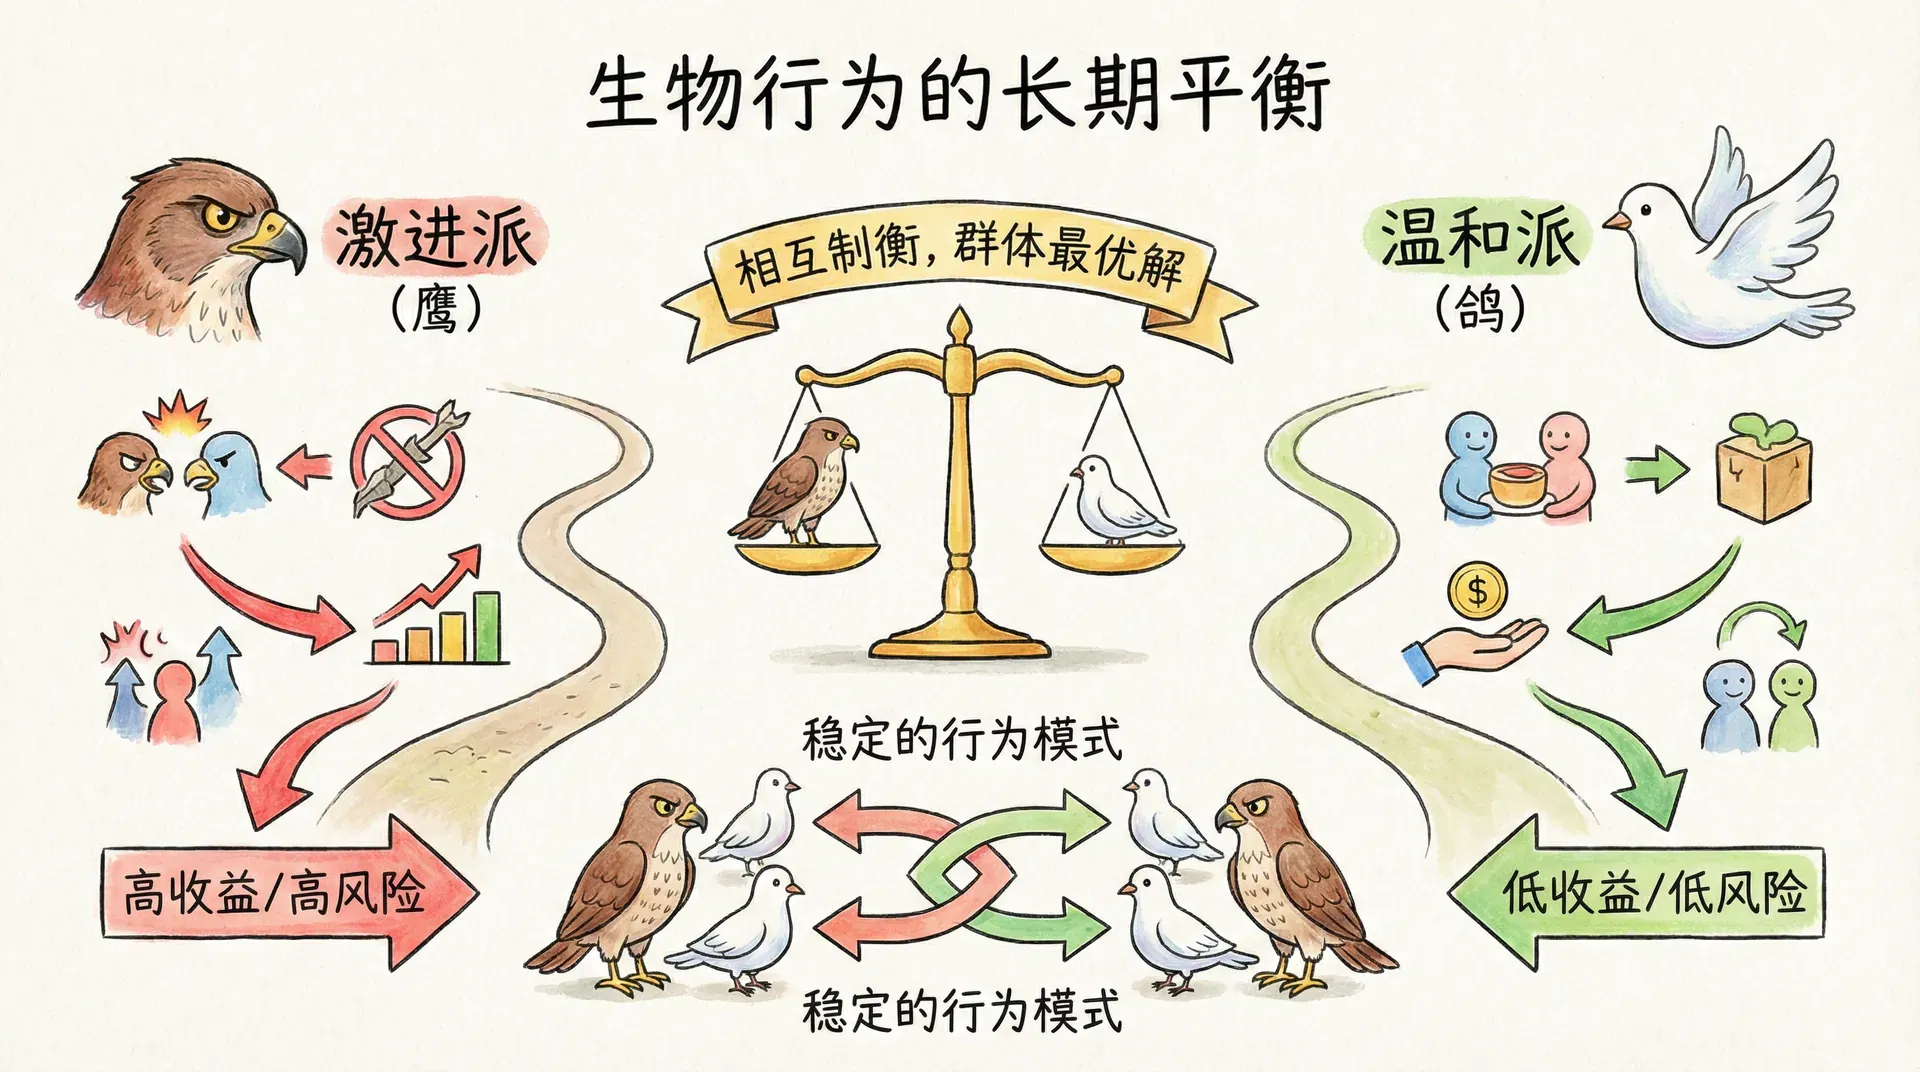
进化稳定策略(ESS,Evolutionarily Stable Strategy)是博弈论和进化生物学中的一个重要概念。它描述了一种策略组合:当种群中的大多数个体都采用这种策略时,其他少数出现的替代策略将无法获得更高的长期适应度,不足以入侵或取代原有策略。因此,ESS本质上是一种对抗“入侵式创新”的稳定状态,仅在当前环境和种群构成下成立。
需要注意的是,ESS强调的是在特定频率下的相对收益最大化,并不意味着此策略在道德、社会性或生态层面最优。环境发生变化或新型策略出现时,原有的ESS也可能被打破。在生存竞争和演化过程中,ESS往往通过长期的自然选择逐步形成,是适应性次优但较为持久的结果。
用模型来理解
鹰鸽模型把冲突简化为两种规则:鹰派会把争斗升级,鸽派先展示、遇到升级则退出。设资源价值为 ,严重冲突成本为 。当 时,纯鹰派之间平均收益受到高成本拖累,种群可能形成混合平衡。
全是鸽派的世界
如果种群中所有个体都选择鸽派策略,冲突带来的直接成本极低,竞争者们会通过礼让或象征性展示将资源分配开来。这使得整体环境相对温和,个体不易受伤,群体的平均收益较为稳定和均衡。
但这种“理想化的和平”很容易被打破——一旦出现极少数鹰派,这些个体由于无需承担与同类强烈争斗的高昂代价,可以轻松从温顺者手中夺得资源,获得巨大的竞争优势。因此,纯鸽派世界看似和谐,实际上是对新兴进攻策略极其脆弱的,难以长期维系。
全是鹰派的世界
如果每个个体都采用鹰派策略,那么每次遇见都可能迅速升级为剧烈冲突。尽管胜者能获得全部资源,但这也伴随着高昂的受伤甚至致死成本,尤其当损伤代价()超过资源收益()时,所有参与者的平均收益都会大幅降低,个体生存压力极大。
此时,能够有效回避直接冲突、采用更灵活或条件化策略(如威胁展示或更懂得退让的组合型行为)的变异者,往往可取得更优的长期胜率和生存状态。因此,纯鹰派世界虽然强硬,却并非进化上最优解,也无法稳定存在于现实生态系统中。
数理上的“稳定平衡”
在最简单的随机配对模型中,当 ,鹰派的平衡频率为 。这个比例完全依赖设定的收益矩阵;改变资源价值、伤害成本或配对方式,平衡就会改变。任何固定比例都不能直接套到真实动物种群。
更复杂的策略
真实动物常使用条件策略,例如先展示、根据对手实力升级,或让资源持有者坚持而闯入者退让。记忆、个体识别和资源差异都能产生比鹰鸽二分更复杂的行为。
“还击者”在某些模型中能抑制无条件攻击,却不是所有环境下的稳定答案。若信息有误、重复相遇概率低或反应成本高,其他策略可能更好。模型的价值在于揭示条件,而不是评选永远的赢家。
改变 、 或配对规则后重新计算,是使用鹰鸽模型的核心。记住一个比例远不如理解比例从何而来。
领地行为的本质
领地是指个体或群体积极主动防卫、排他性使用的特定空间,这与动物日常活动范围(如觅食、活动区域)不同,后者不一定受到强力守护。领地行为往往出现在资源高度集中、空间分布可预测,而且拥有该地带能显著提升个体或家族利益的情境下。
只有当对领地的防卫成本低于所获收益,动物才会投入精力维持明确的边界,对入侵者表现出攻击或威慑行为。若资源零散或流动性大、防守难度过高,个体更可能采取游牧或共享策略,领地行为就难以进化和稳定存在。
鸟鸣、气味标记和视觉展示可以降低反复打斗的成本。边界并非不可改变;季节、食物密度、邻居身份和繁殖状态都会影响领地大小与防卫强度。
“先到者获胜”可能来自资源持有优势,也可能只是先占个体本来更强。实验若要区分,需要交换个体位置或改变占有时间,而不能从一次观察直接推断规则。
体型差异的影响
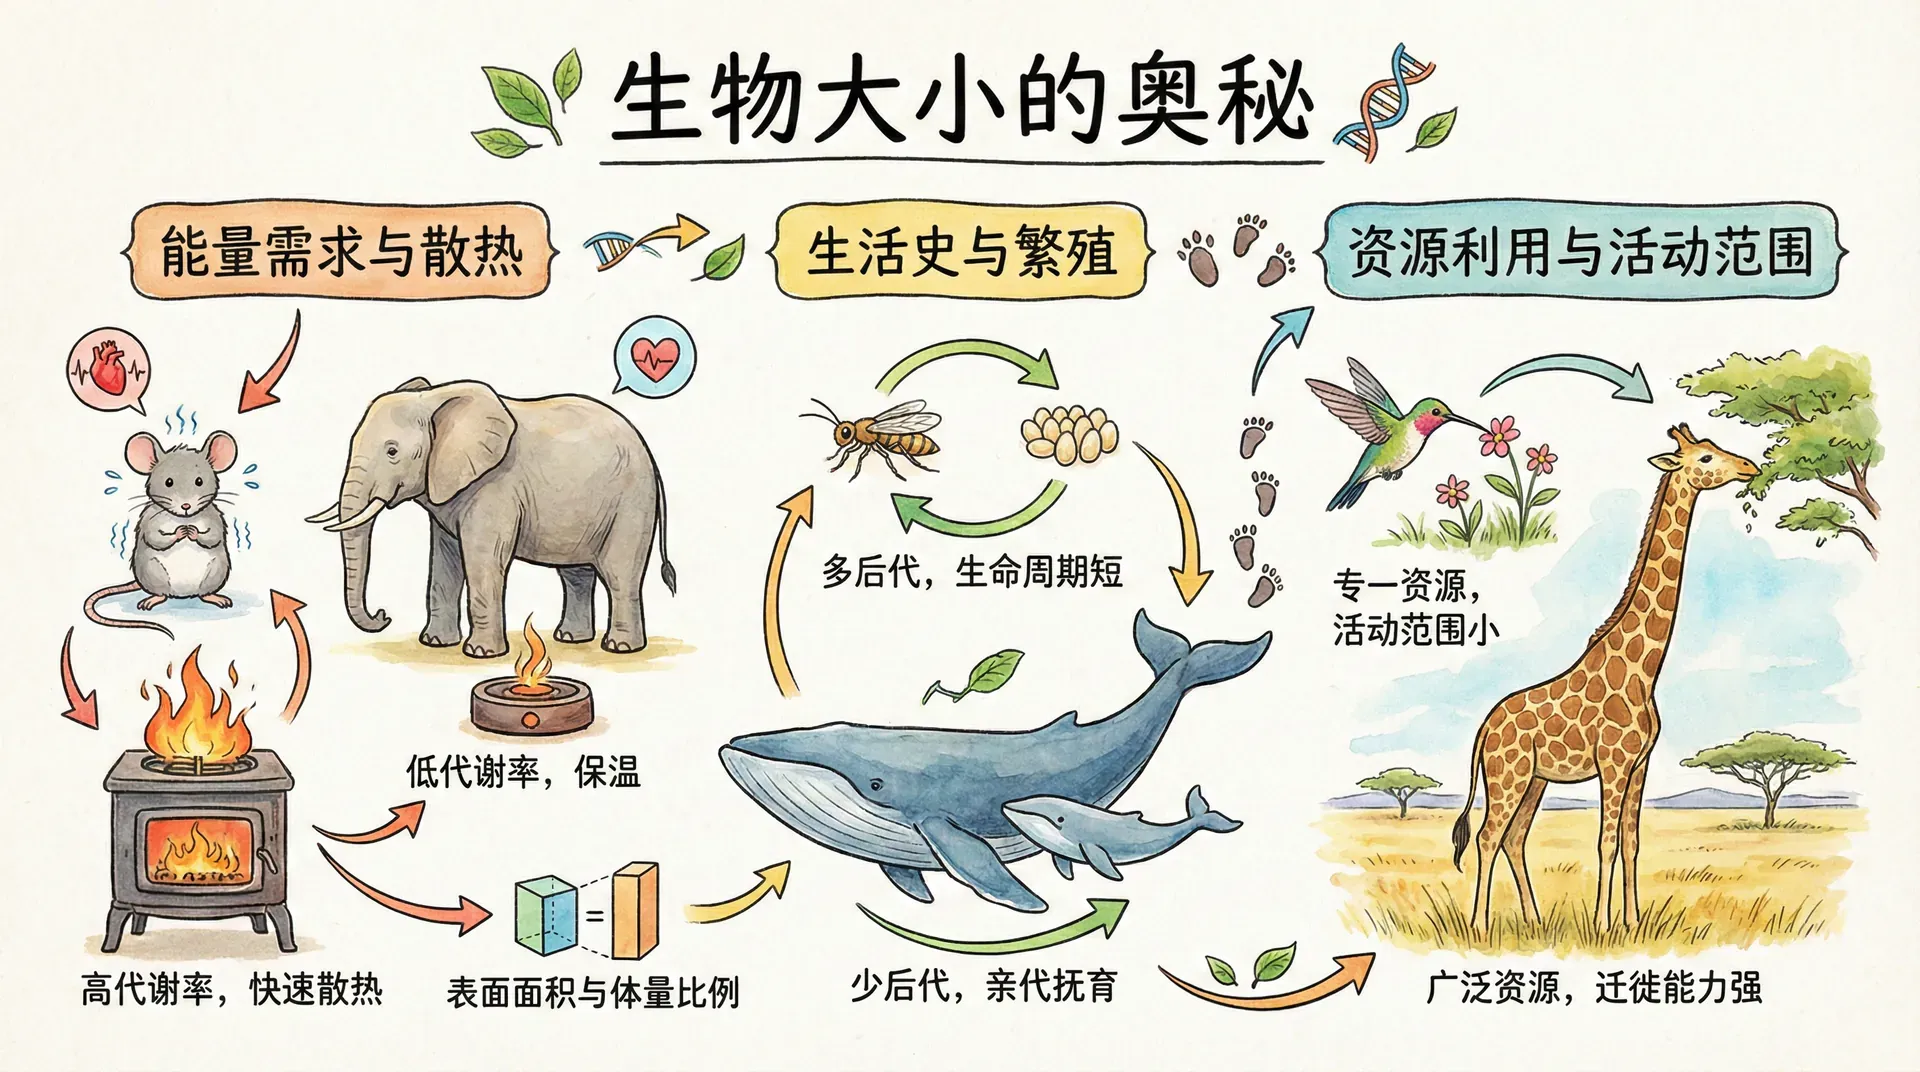
较大体形有时提高争斗能力,但维持身体需要更多食物,灵活性和散热也可能受限。小个体可以通过速度、隐蔽或选择不同时间获取资源。选择作用于完整的成本收益组合,不会永远偏爱更大体形。
动物常通过姿态、声音或武器大小估计对手,但评估不是精确测量。经验、激素状态和先前胜负都会影响决定,这类“胜者效应”与“败者效应”能在短期内改变群体关系。
这些关系是可检验的预测,不是所有物种都遵循的阈值表。研究者需要结合自然观察和控制实验估计参数。
记忆与等级制度
当个体能够相互识别对方身份时,群体中的成员往往经历多次争斗,逐步建立起稳定的支配等级关系。这种等级制度有助于减少每次见面都因争夺地位或资源而发生激烈冲突的频率,从而节省能量,降低受伤风险,让群体关系更加可预测。
然而,支配结构并非一成不变。个体的年龄、健康状况、结盟方式或新成员加入等变化,都可能打破原有的等级秩序,引发新的竞争或重组。有些动物甚至会记住自己与每个成员的胜负记录和互动历史,调整自己在群体中的行为与策略,使等级制度动态变化、适应环境。
支配地位通常增加某些资源的优先权,但高位个体也可能承担防卫和维持联盟的成本。低位个体并非完全失去繁殖机会,它们可等待时机、迁移、形成联盟或采用隐蔽求偶方式。
支配等级描述动物关系,不是对社会等级的认可。自然存在的现象不会自动成为人类制度的正当理由。
等级制度是特定生态和社会条件下的结果,不能直接为人类组织中的不平等提供自然依据。人的制度由法律、文化与有意识协商塑造,评价它需要独立的伦理和社会证据。
不同物种之间的竞争
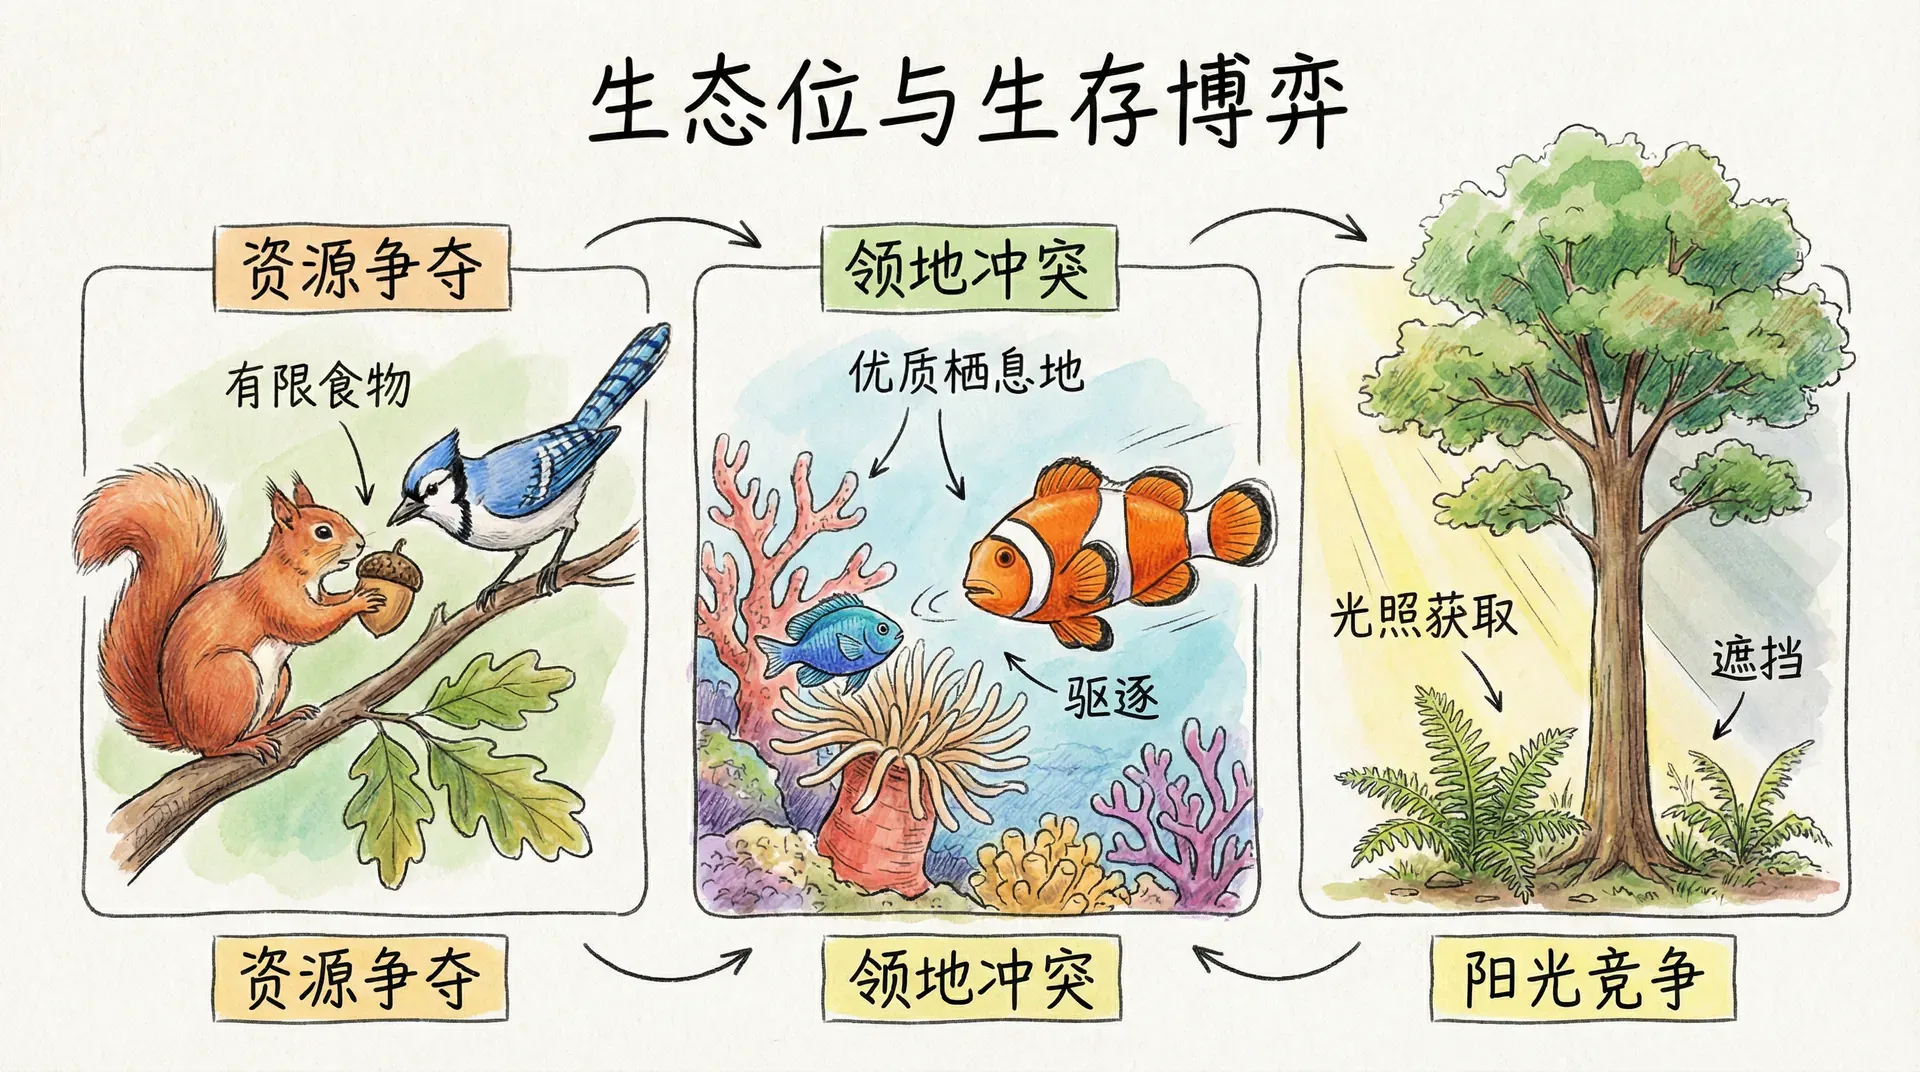
物种间竞争发生在它们使用相同限制资源时。生态位差异可以减弱竞争,例如使用不同食物、空间或活动时间。竞争也会随气候、捕食和资源供给改变,并非两个物种相遇就一定有一方被淘汰。
竞争排斥原理针对的是生态需求近乎相同、资源持续受限的理想条件。自然群落具有空间异质性、季节变化和多种相互作用,因此相似物种也可能长期共存。
共同演化并不意味着双方不断“升级”成更强者。一个物种的改变会改变另一个物种的选择环境,结果可能是军备竞赛,也可能是资源分化、耐受或互利关系。
基因的合作
完整性状通常需要许多基因产物配合。一个等位基因能否增加,取决于它在常见遗传背景中的平均效应。所谓基因“合作”,描述这种功能相容性,不表示DNA分子组成团队或共享目标。

同一基因可能影响多个性状,不同基因也可能互相改变效应。重组会不断产生新组合,自然选择则改变这些组合中等位基因的频率。这一过程可形成协调的发育网络,也会保留权衡和遗传冲突。
把设计师、木匠等职业直接对应单个基因会造成误解。肌肉、神经和免疫等系统都由大量基因与环境共同构建,基因功能更像网络中的关系,而不是一份固定岗位说明。
稳定的基因库
种群基因库中的等位基因频率会随选择、漂变、迁移和突变变化。所谓稳定通常是动态平衡:平均频率在一段时间内变化较小,个体和基因组合仍在不断更替。
负频率依赖选择能维持多种策略。当某策略稀少时收益较高,变常见后收益下降,就可能形成长期多态。平衡选择、空间环境差异和杂合子优势也能保存遗传多样性。
ESS讨论策略频率,间断平衡讨论化石记录中形态变化的节奏,两者不是同一理论的直接证明。概念之间能否连接,需要明确机制和数据,不能只因都含“稳定”就画等号。
总结
冲突行为反映了资源价值、受伤风险、可获得信息和未来机会之间复杂的权衡。鹰鸽模型、ESS(进化稳定策略)和频率依赖选择为分析这些竞争策略提供了有力的理论工具,但它们得出的结论高度依赖于模型中的参数设定和实际生态条件。实际观察中,不同种群或环境下,策略演化的方向和多样性都可能发生改变。
理解策略演化最关键的一步,是将“看起来像选择”的现象严格转化为科学可测的问题:谁承担了真正的成本?谁获得了实际收益?这种行为是如何遗传或通过学习稳定传递的?如果环境条件发生变化,行为结果是不是也会随之调整?只有这样,我们才能从生动诱人的故事叙述,迈向可以反复检验和证伪的进化生物学解释。这种思路让进化理论成为连接经验数据与策略演化机制的桥梁。