生命的起源
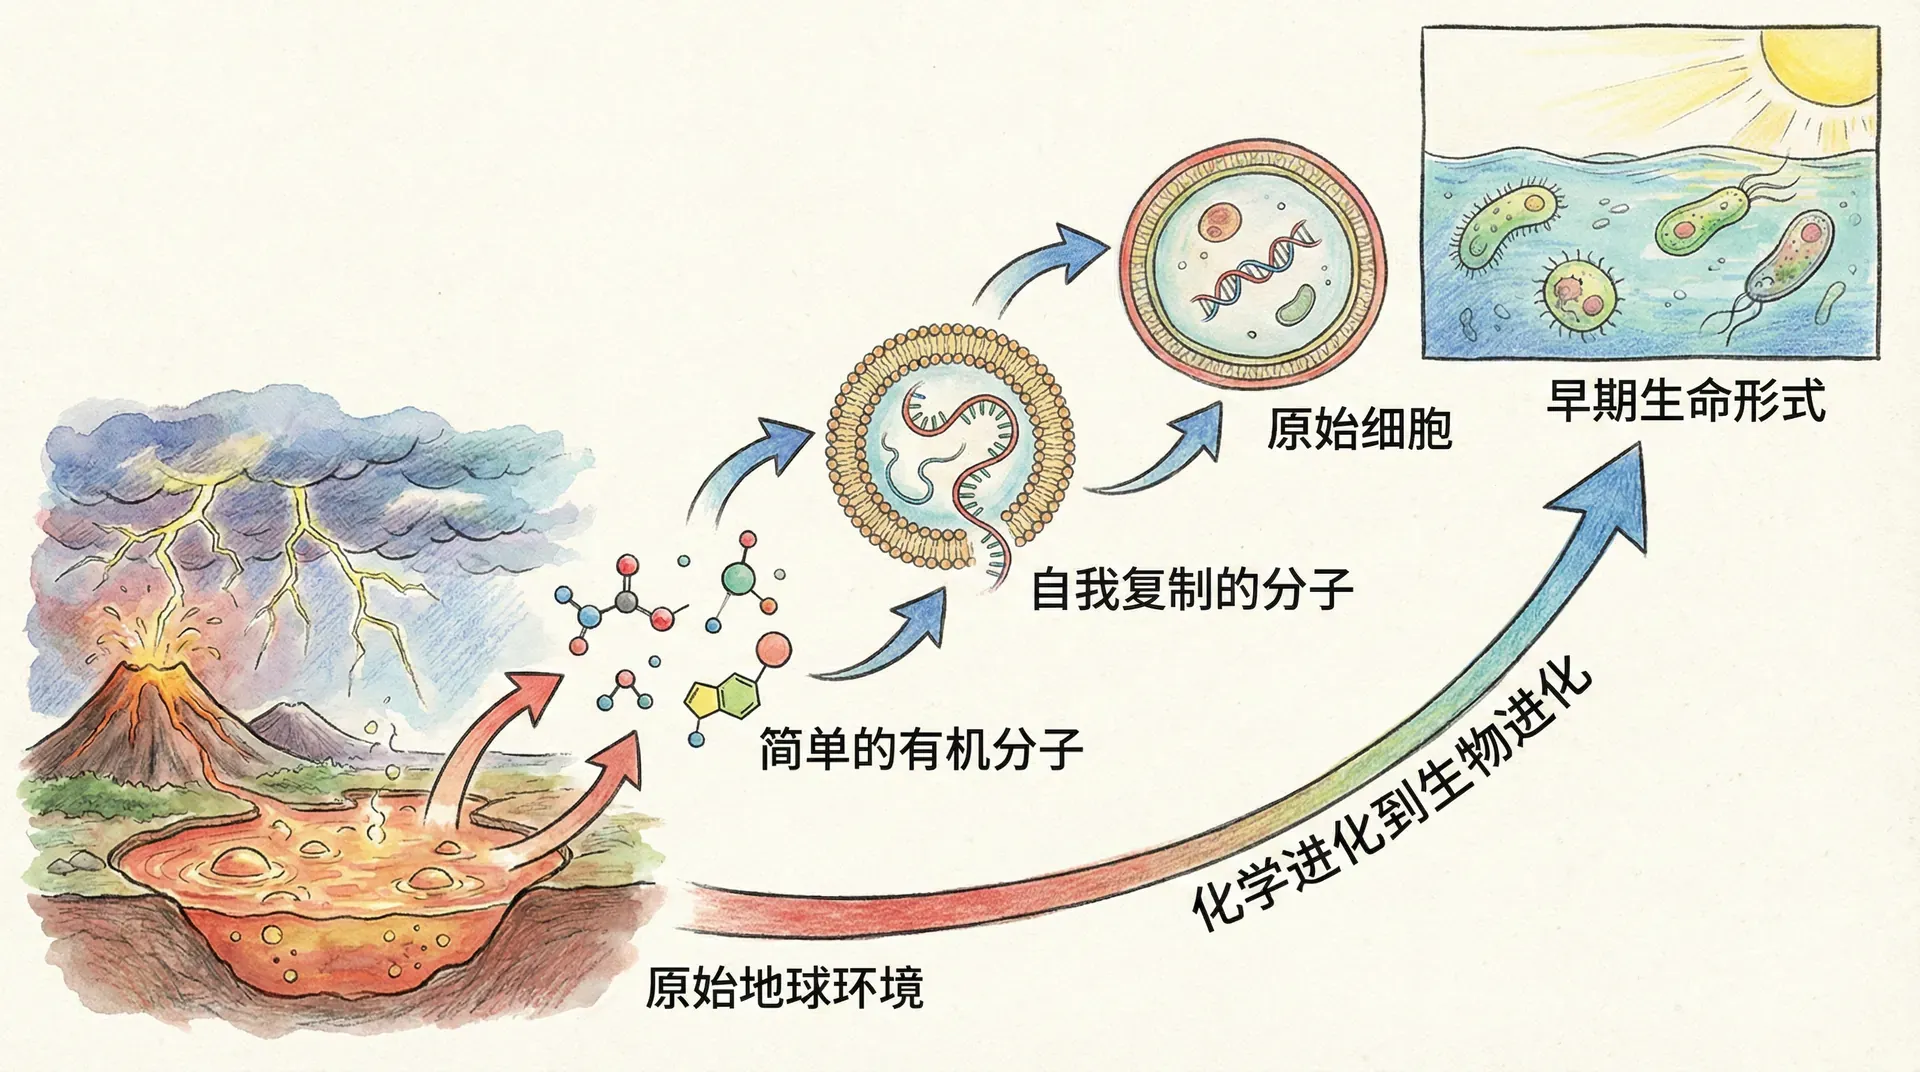
地球上的生命都来自既有生命,但最早的生命不可能沿着这条链无限回溯。生命起源研究试图解释:在早期地球环境中,非生命的化学体系如何逐渐具备能量利用、信息复制和边界维持等特征。
目前还没有一条被证实的唯一历史路线。实验能展示某些步骤在一定条件下可以发生,地质和天文证据能约束早期环境,却很难直接保存最初生命的完整记录。因此,RNA世界、代谢先行和原始细胞等都应作为可检验的假说来理解。
万物皆稳定
稳定性
自然界中的结构能够持续存在,通常是因为形成与破坏达到某种平衡。岩石很稳定,是因为化学键和环境条件让它不易改变;水面上的气泡只能短暂存在,是因为薄膜会排水并破裂。稳定本身不等于生命,也不等于发生了自然选择。
生命体系的特殊之处在于,它们远离热力学平衡,需要持续获取能量和物质来维持有序结构。细胞停止代谢后会逐渐失去这种动态稳定。理解这一点,有助于把“稳定的物质”与“能够维持和繁殖的生命系统”区分开。
有序、会增长或消耗能量中的任一特点,都不足以单独定义生命。生命来自多项性质构成的系统。
化学结构能否积累,还取决于产生速度、降解速度和环境是否提供保护。矿物表面、冰层、潮湿与干燥的循环,以及海底热液环境,都被研究者用来检验不同分子形成和富集的可能性。
从无机到有机
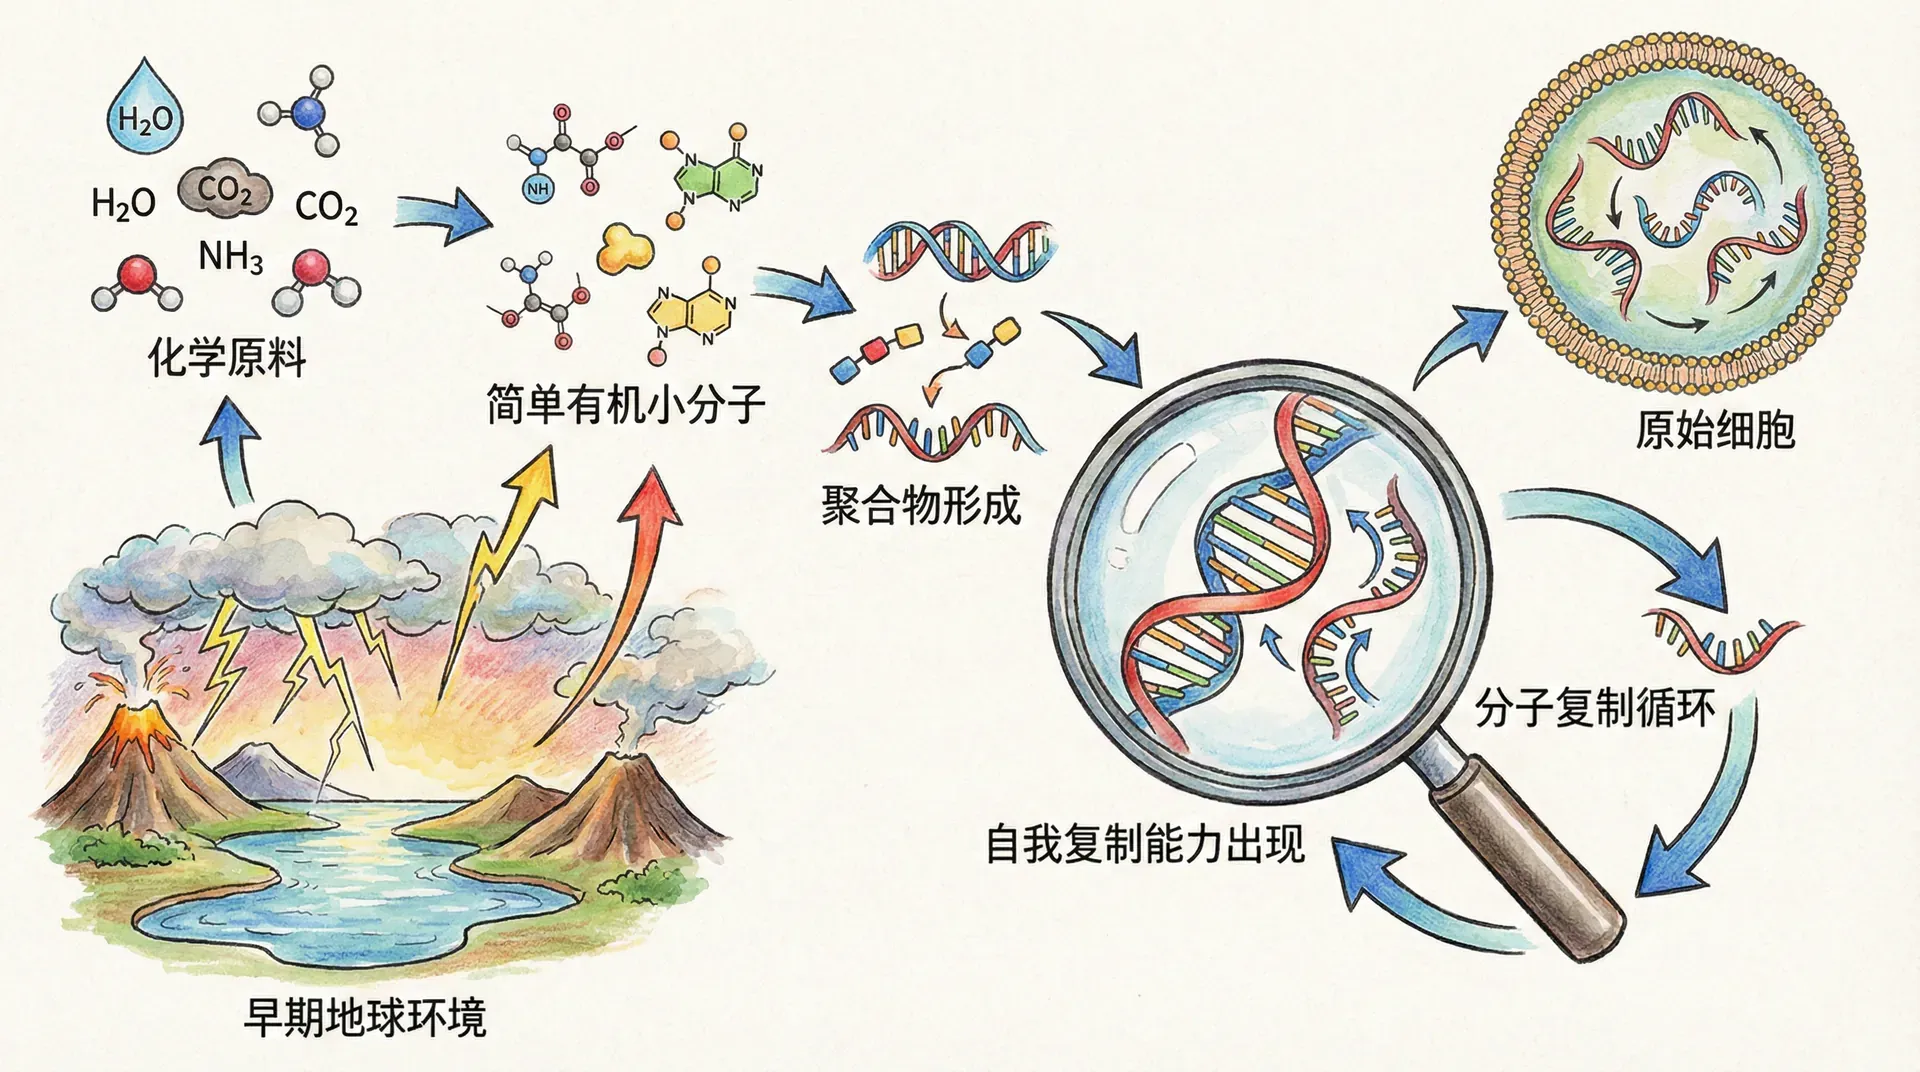
有机分子可以在没有生命参与的条件下形成。经典放电实验表明,在特定气体和能量来源下能够产生氨基酸等小分子;陨石中也检测到多种有机物。这些证据说明生命原料可由非生物过程产生,却不等于实验已经制造出生命。
实验展示“在这些条件下可以发生”,地质历史则要求这些条件在早期地球上真实存在并能持续衔接。
早期地球的大气成分、海洋化学和能量来源仍有不确定性。研究者会使用不同气体组合、紫外线、放电或地热条件重复实验,比较哪些反应在地质上更可行。

从小分子到能复制的体系,中间还包括浓缩、聚合、催化和隔离等难题。任何完整解释都必须说明这些步骤如何在同一环境或相互连接的环境中衔接,而不能只列出一串看似自然的顺序。
复制分子的诞生
原始汤
“原始汤”描述的是有机分子可能在水体或局部环境中积累的设想。宽广海洋会稀释反应物,因此潮池、矿物孔隙、火山区和冰晶间隙等能否提供浓缩条件,成为实验关注的重点。
水有利于分子移动和反应,却也会使某些聚合反应更困难。周期性的干湿变化可能促进小分子连接,脂质小泡则可能把反应物聚集在有限空间。不同假说解决不同环节,尚不能拼成一部已确定的历史纪录。
第一个复制者
最早的遗传体系是什么,仍无定论。RNA既能储存序列信息,也能在某些情况下催化反应,因此“RNA世界”是假说中的重要候选。但现代实验得到的RNA复制体系仍需特定条件和人工支持,不能据此认定自然界第一个复制者必然是RNA。
可能还存在比RNA更简单的前体分子,或者信息复制与代谢网络曾共同演化。科学价值不在于给未知对象编出一段细节完整的故事,而在于提出可以实验比较的路径:原料是否能形成、分子是否能延长、复制误差多大、体系能否持续。
复制过程中的“错误”
任何复制体系只要不是完全准确,就会产生变异。误差太高,信息无法稳定保存;误差太低,又缺少可供选择的差异。能否在这两者之间维持足够信息,是早期复制体系面临的关键约束。
“复制—变异—差异延续”是一组必要条件。仅有化学反应更快,还不能证明已经发生达尔文式演化。
并非每个变化都有利。大多数变化可能无效或有害,少数在特定环境下提高复制或持续时间。只有当差异能够被继承,并导致后续副本数量不同,达尔文式选择才可能发生。
生存竞争
“竞争”在这里不是分子之间的主动争斗,而是多个复制体系使用相同、有限的原料和能量。某一类型若复制更快、降解更慢或更善于获得原料,它在混合物中的比例可能上升。
这种变化也可能来自随机性。样本很小的时候,某类分子的增加未必源于优势;环境突变也可能偶然保留一部分类型。区分选择与随机过程,是从分子体系延伸到种群进化时同样重要的原则。
资源的限制与竞争
资源有限时,个体的复制速率不可无限增加。每个复制者在争夺原料时,消耗得越多,剩余资源就越少,这种直接竞争限制了总体生长。某些类型可以通过利用不同资源或迁移至不同微环境,规避与主流群体的直接竞争,从而获得生存优势。
当资源有限时,竞争不仅加剧,也促使一些复制者形成合作关系。例如,一种分子的代谢产物能成为另一种分子的原料,逐步连接成互惠共生的网络。这样的合作提高了整个系统对资源的利用效率。
不过,这种合作关系并非总能稳定维持。合作网络只有在成员保持空间关联,并且共同收益不被“搭便车”的非贡献类型大量侵占时,才更容易持续存在。如果合作变得易被剥削,系统也会倾向回到竞争主导的状态。
进化的加速
催化分子可以显著提高特定化学反应的速率,让某些反应在有限时间内高效完成。而隔离结构,则有助于把协作有利的分子组合封闭在同一空间,使其内部的相互作用得以持续并避免被外界打断。
当催化分子和隔离结构相结合时,进化过程中受到选择的不再只是某个单一分子,而是可以扩展到由多种分子构成、具备一定程度协作关系和自我维持能力的原始体系。这为复杂生命体系的出现铺平了道路,使分子的组装与合作成为新一层级的进化单元。
“更快”不意味着进化朝着复杂生命预定前进。许多支系可能中断,简单而高效的体系也可能长期存在。我们今天看到的复杂生命,只是历史上延续下来的一部分结果。
从分子到细胞
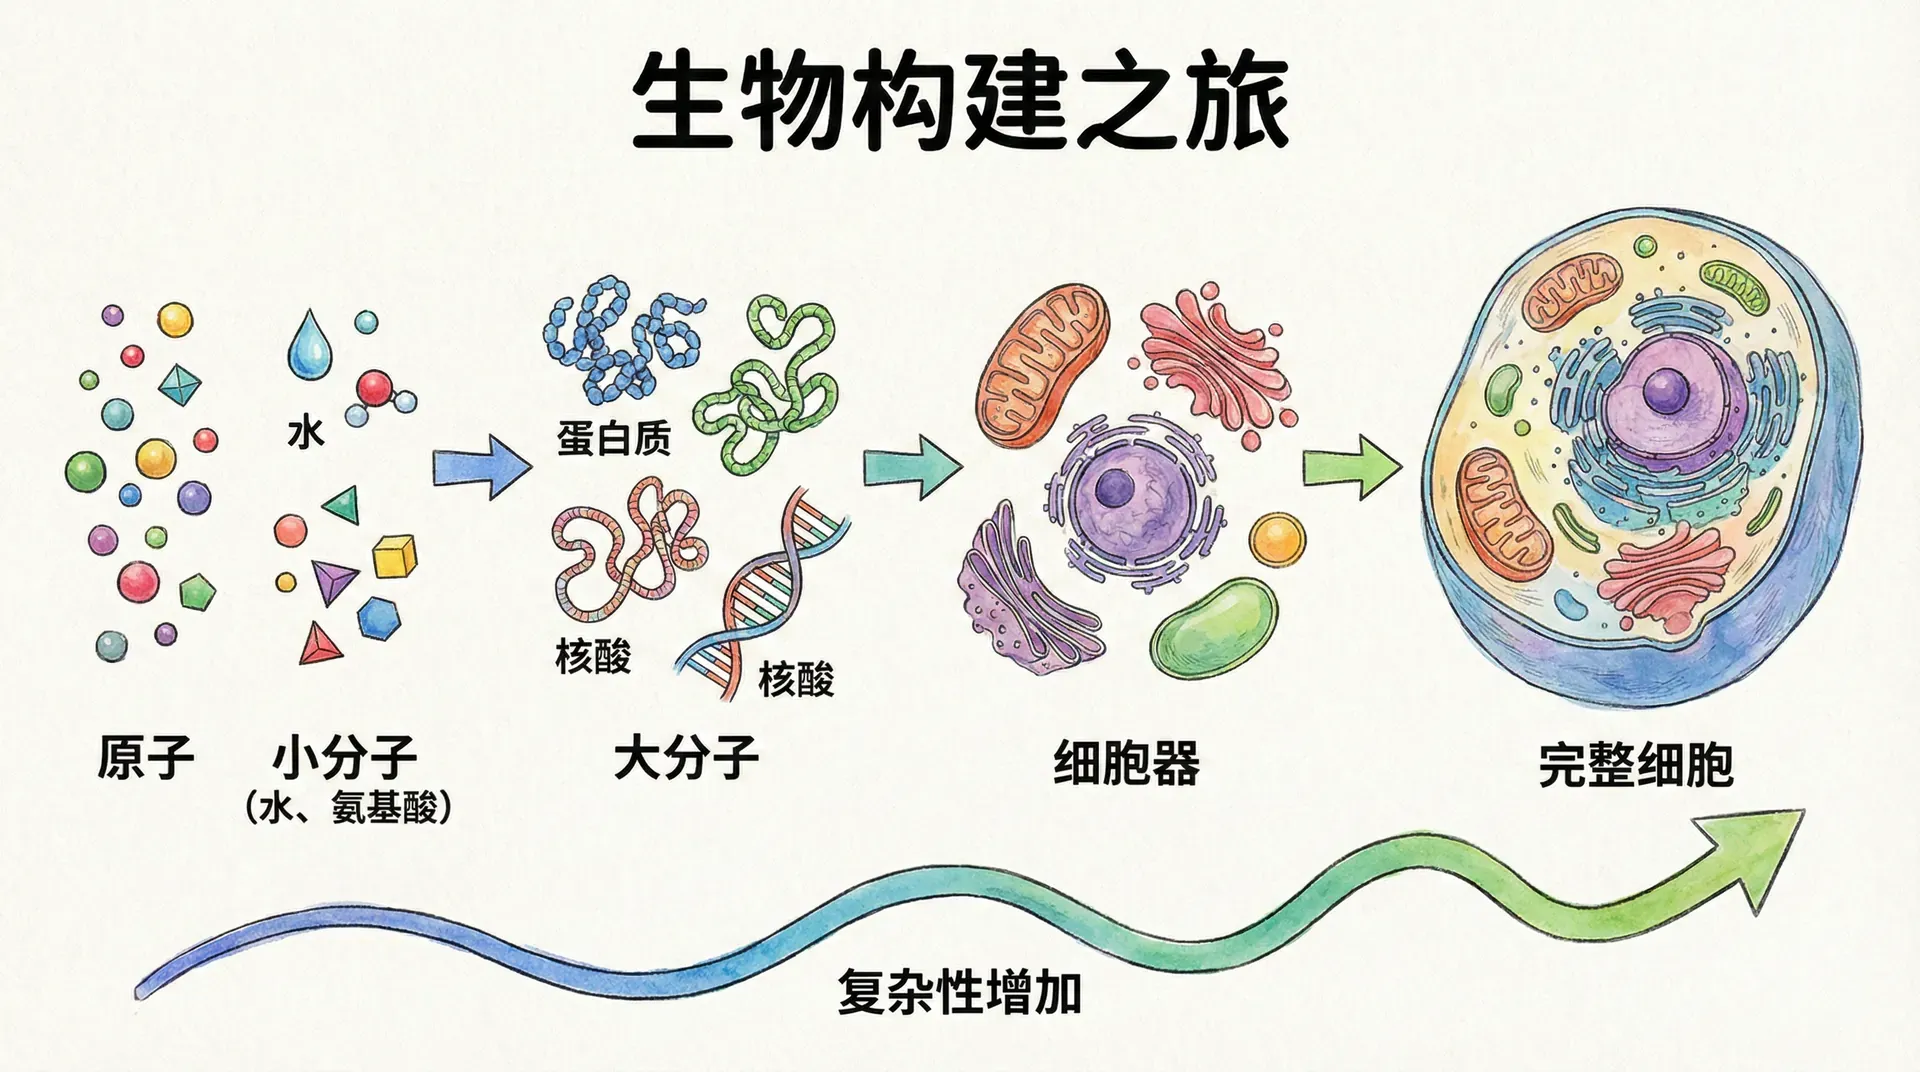
脂质分子在水中可以自发形成小泡,为内部反应提供边界。若小泡能吸收原料、增长并分裂,内部复制体系的差异就可能影响整个小泡留下“后代”的机会。这类结构常被称为原始细胞模型。
真正的细胞还需要协调膜运输、能量转换、信息复制和催化网络。现代细胞极其复杂,不能直接当作最早生命的样子。研究原始细胞,是把复杂问题拆成可检验步骤,而不是复原一个已经确定的祖先。
原始细胞研究的目标,是逐步连接边界、代谢和遗传,而不是一次跨越从小分子到现代细胞的全部距离。
生存机器的概念
把细胞或生物体称为复制分子的“生存机器”,可以突出遗传信息依赖物质系统才能延续。但这个比喻容易让人误以为基因在设计身体。更准确的说法是:过去能共同完成复制、代谢和边界维持的组合,留下了更多延续至今的后代。
膜、酶和遗传分子并非先后独立完成后再组装。它们很可能经历了长期共同演化,任何一部分的改变都可能改变其他部分的选择条件。
现代生命中的复制分子
现代细胞通常由DNA长期储存遗传信息,RNA参与信息传递和调控,蛋白质承担大部分催化与结构功能。这个分工并非绝对:RNA仍具有催化作用,一些病毒以RNA为遗传物质,许多蛋白质也参与DNA复制和修复。
所有已知细胞共享遗传密码、核糖体和基本代谢特征,支持它们拥有共同祖先。但“共同祖先”并不等于“第一个生命”,它已经可能是经过很长时间演化的细胞群体。
我们是基因的生存机器
人的身体保存并传递遗传信息,也能学习、形成目标并建立文化。基因影响这些能力的发育基础,却不为每个人规定唯一的人生选择。将人称为“机器”只能作为局部比喻,不能代替对神经、社会和文化过程的理解。
遗传信息的延续也不是生命价值的唯一尺度。科学可以研究繁殖差异怎样形成,却不能从中推导个人必须繁殖、必须追求某种生活方式。
总结
生命起源的研究跨越了化学、地质学、天文学与进化生物学等多个学科。相关实验和观测已经证明,地球早期环境能够在没有生命参与的条件下生成许多生命所需的关键有机原料,并促使一些复杂分子的形成过程。然而,从简单的小分子到能进行自我复制、进化的细胞之间,仍然存在多个尚未完全理解的关键环节,包括信息传递、结构自组装和原始代谢的起源等问题。
科学上,可靠的学习和研究方法,是将已有的证据、构建的模型和尚未解决的未知明确区分。例如,有机物的非生命合成已被实验证实;“RNA世界”和原始细胞模型是得到了不同证据支持的重要假说。不过,第一批能够自我复制的分子体系究竟是什么、它们在怎样的条件下诞生,以及其完整的历史过程,这些问题仍需要更多探索,目前还没有定论。