互助共生
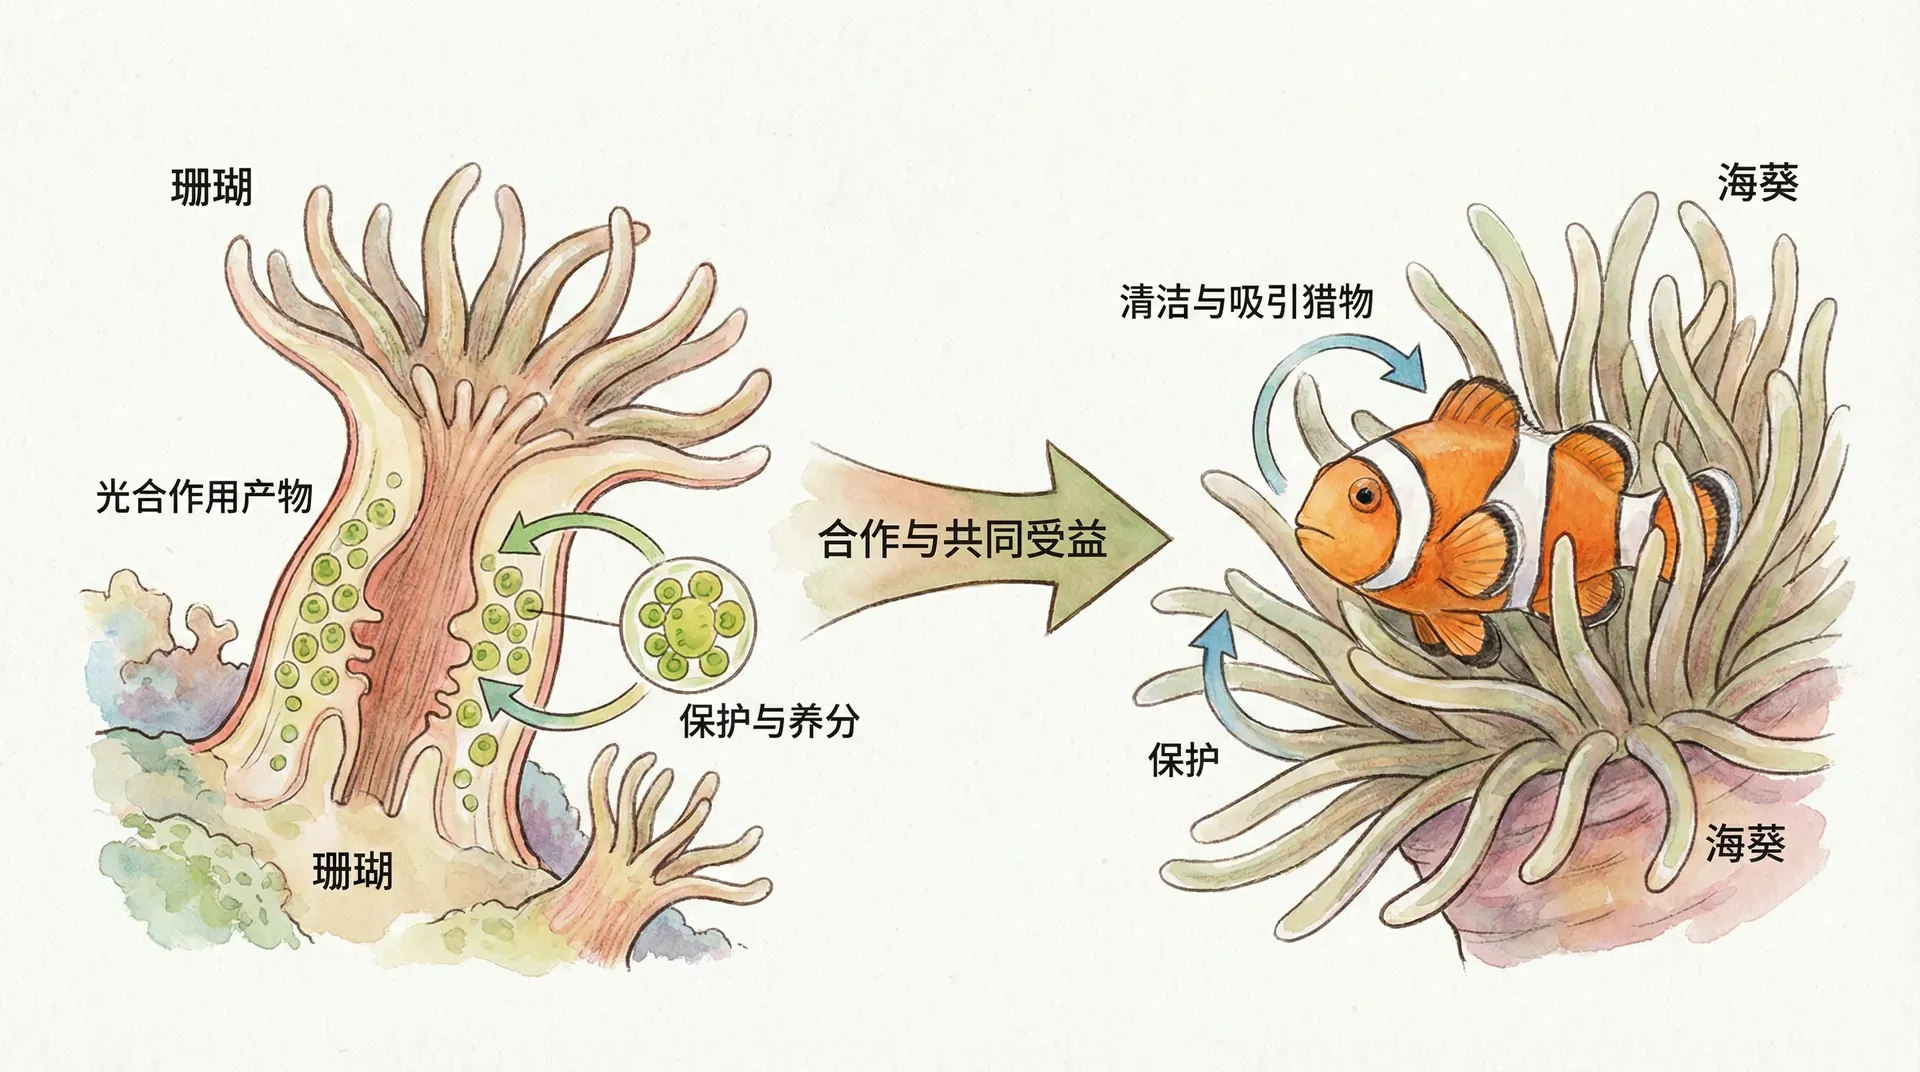
合作行为会给参与者带来收益,也可能伴随成本和利益冲突。亲缘选择、互惠、共同防御和互利共生都能促成合作,但它们依赖的条件不同。看到动物相互帮助时,第一步不是给行为贴上“无私”标签,而是测量谁得到什么、谁付出什么。
互助与共生虽然都涉及生物之间的联系,但含义并不相同:
- 互助:一般是指同种生物个体之间互相协助的行为,比如哨兵行为、合作抚育后代等,强调行为的直接互动。
- 共生:是指不同物种之间在进化过程中形成的长期、紧密的生活关系。共生可以细分为:
- 互利共生(双方都受益,例如蜜蜂与花朵)
- 偏利共生(只有一方受益,另一方不受损,例如藤壶附着在鲸鱼身上)
- 寄生关系(一方受益,另一方受损,例如跳蚤寄生在哺乳动物身上)
因此,观察到不同生物的合作时,要根据具体关系和时间尺度,判断其属于哪种类型。
危险区域理论
群居动物遇到捕食者时,位置会影响风险。处在群体边缘的个体更容易被攻击,向中心移动可以降低自身危险,这就是“自私兽群”模型的核心。它说明个体层面的躲避行为也能形成紧密群体。
警戒、同步逃跑和稀释效应还可能共同降低风险。稀释效应指捕食者一次通常只能抓住少数猎物,群体越大,单个个体在一次袭击中被捕的概率可能越低;它不要求个体主动帮助同伴。
群居也有代价,例如食物竞争、疾病传播和显眼度上升。最佳群体规模随捕食压力与资源分布变化,不能只用“越多越安全”概括。
群体大小是收益与代价的平衡,不是个体越多越安全。食物分布和捕食方式改变时,平衡也会移动。
警报信号的代价与收益
警报信号能够提前提醒周围的个体逃避威胁,提升群体的整体存活概率。然而,发出警报的个体往往面临被捕食者优先发现、或因警报中断觅食等直接代价。
这类信号的实际效益大小,取决于诸多因素,如捕食者的类型和行为方式、发声者在群体与环境中的位置、听者与发声者之间的亲属关系,以及群体对信号的整体反应。有时,只有特定听众受益显著,而发声者未必得到等量回报。
场景举例与分析
1. 亲缘关系驱动
如果附近亲属因警报提高存活率,发声者可能获得间接适合度收益。验证这一解释,需要证明发声概率随亲缘结构变化,而不是只看到同一群体中有亲属。
2. “通知策略”:传递群体安全信号
有些警报可能向捕食者表明它已经被发现,从而降低继续追击的收益;不同叫声还可提示空中或地面威胁。信号功能要由捕食者和听者的反应实验区分。
3. “避免脱队”,集体优势
发声者也可能通过协调同伴逃跑而减少自己被单独锁定的风险。这里的收益直接回到行动者,不需要假定它为群体牺牲。
4. 互惠网络与虚假警报
个体若反复相遇,警戒贡献可能形成互惠;但虚假警报也可能用于夺取食物。听者会根据发声者可靠性、情境和过去经验调整反应,信号系统因此始终受到可信度约束。
多个机制可以同时成立。好的研究会提出能区分它们的预测,例如移除亲属后警报是否减少、捕食者已经发现猎物时叫声是否改变。
一个观察可以同时符合多种解释。只有预测在某些条件下分开,数据才有可能区分机制。
草原精灵的跳跃谜题
一些羚羊在察觉捕食者时,会突然四肢伸直、高高跃起,这一举动被称为“跃跳”(stotting)。跃跳显然需要消耗大量能量,而且还会让个体变得更加显眼,表面上似乎增加了自身被发现的风险,因此它长期以来被视为动物信号学中的一个谜题。
研究发现,跃跳行为并非个别羚羊的偶发动作,而是在捕食情境下常见且持续出现的现象。科学家提出多种假说尝试解释其功能,包括:向捕食者展示自己的健康和逃跑能力以劝退追击、警示同伴周围有潜在危险,或利用跳跃获得更好的视野来察看四周环境。跃跳已经成为检验动物警戒与信号理论的经典案例之一。
跳跃行为主要解释
跃跳可能向捕食者展示身体状态,表示追逐成本很高;也可能向同伴传递危险,或帮助个体观察草丛。不同物种、年龄和捕食情境下,作用可能不同。
不能从“跳得高的个体更少被抓”直接判定因果。健康个体既可能跳得高,也可能跑得快,需要控制体况和捕食者选择。
跳跃高度与获救概率
图中若展示的是教学参数,应理解为比较趋势的模型数值,而不是某个野生种群的通用实测概率。真实研究会记录跃跳频率、捕食者是否放弃、个体体况和最终逃脱结果,并报告样本量与不确定性。
一种可靠信号不一定因为“昂贵”才可靠。若低质量个体在生理上难以做出同样动作,或者捕食者能当场检验信号,较低成本也可维持诚实。
信号功能要由接收者反应来判断。只描述发信者动作,无法证明信号传递了什么。
社会性昆虫的合作
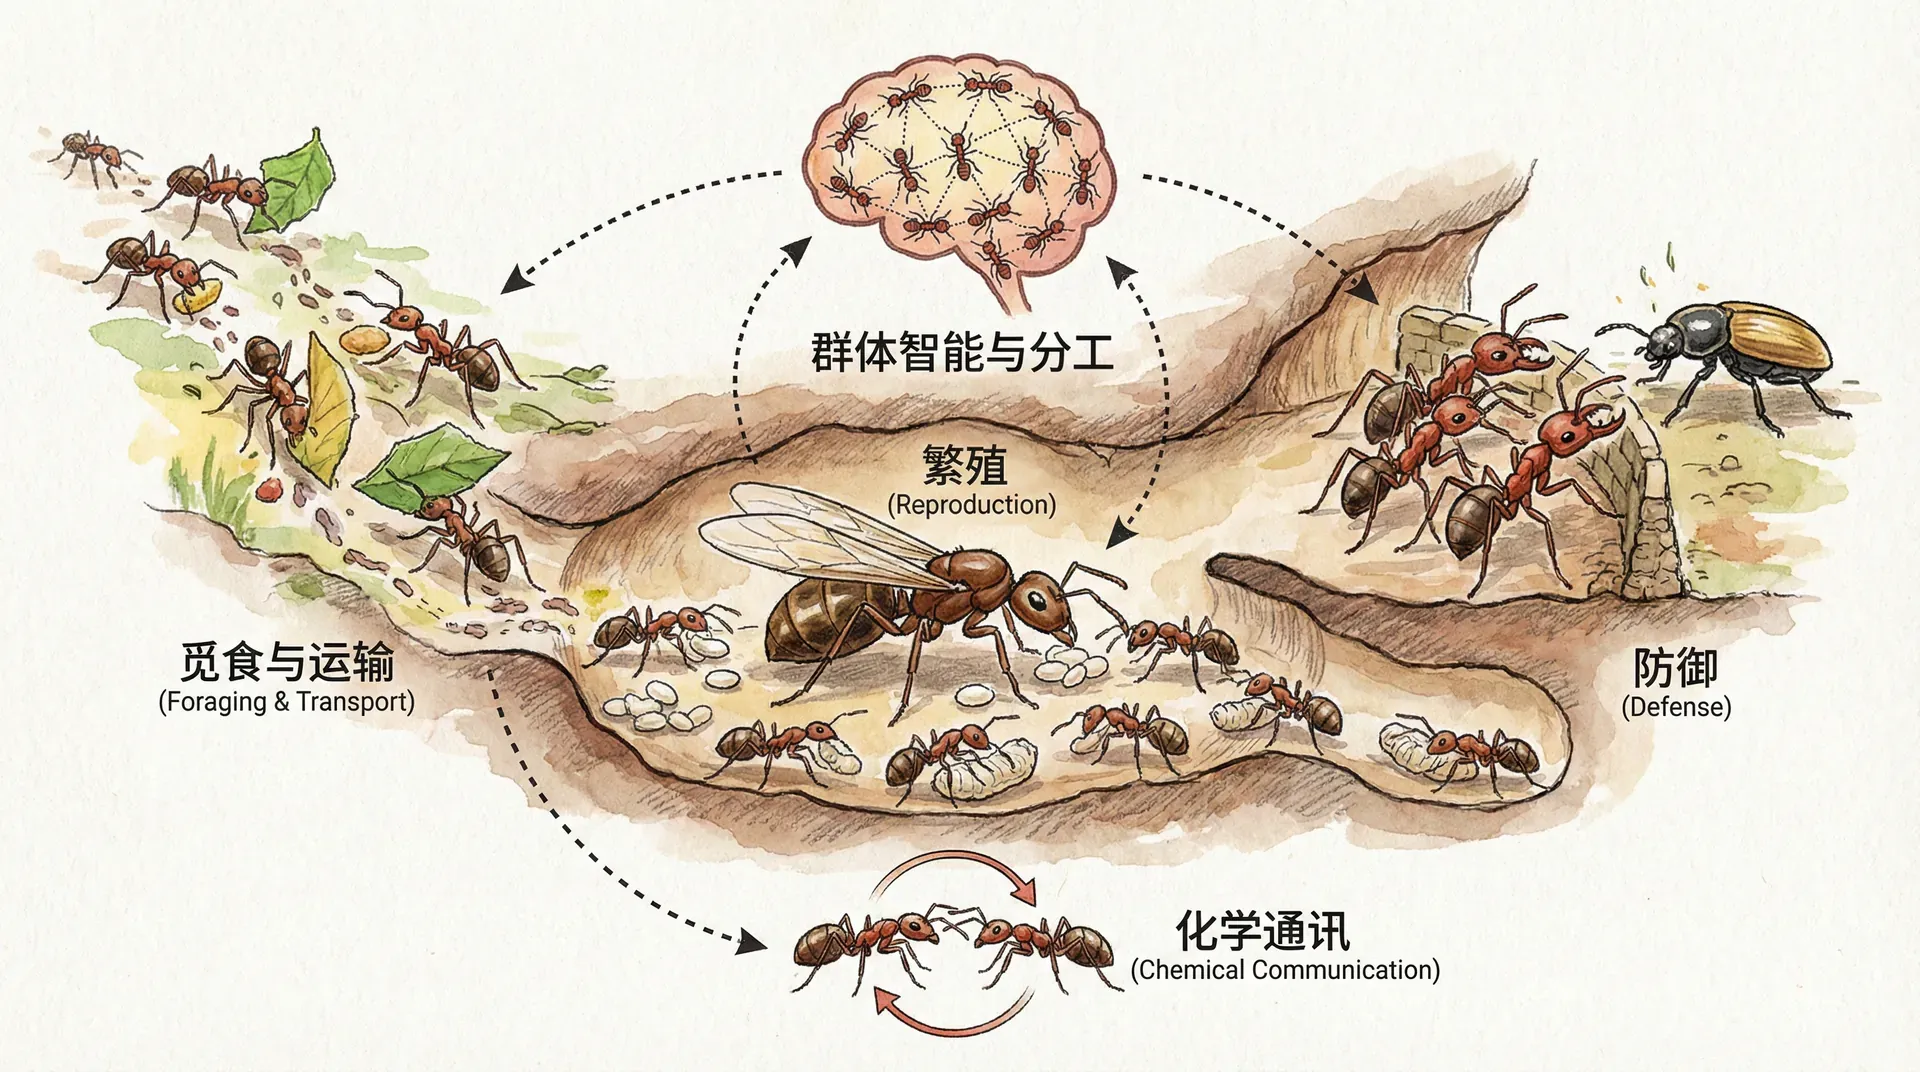
蚂蚁、许多蜜蜂和胡蜂形成有繁殖分工的群体。工虫帮助建巢、采食、防御和育幼,自身通常很少繁殖。亲缘选择是重要解释,但群体生态、巢穴继承和祖先婚配制度也不可缺少。
社会性并非单靠一个“合作基因”产生。它涉及发育可塑性、信息素通讯、亲代照顾和群体生命周期等多层机制,且在不同昆虫支系中独立演化。
高亲缘度可以提高帮助亲属的间接收益,却不能单独产生社会性。生态收益和群体形成历史同样要接受检验。
膜翅目昆虫的遗传密码
许多膜翅目昆虫采用单倍体—二倍体性别决定:未受精卵发育成单倍体雄性,受精卵发育成二倍体雌性。在单次交配且没有近交等简化条件下,全同胞姐妹之间的相关度可达 。
但高姐妹相关度不是社会性出现的充分条件。许多单倍体—二倍体物种独居,一些二倍体物种却高度社会化;蜂王多次交配也会降低工蜂之间的平均相关度。研究更重视祖先单配偶制、共同育幼收益和群体形成方式的结合。
工虫是否更偏好姐妹,还受到谁控制性别分配、工虫能否产卵和群体内冲突的影响,不能由一个相关度数字直接决定。
性别比例的争夺战
蜂王和工虫在决定群体中雄性与雌性投资比例时,常常面临不同的遗传利益:
- 工虫由于与姐妹的相关度较高(在某些条件下可达 ),通常更希望增加雌性(姐妹)个体的比例,以提高自身间接遗传收益。
- 蜂王与儿女(不管雌性还是雄性)的常染色体相关度都是 ,因此对性别比例并无偏好。
工虫偏向姐妹的程度,受到多种因素影响,例如:
- 蜂王的交配次数(多次交配会降低工虫平均相关度)
- 工虫能否分辨同父异母与异父异母姐妹
- 培养雄性与雌性所需的资源和代价
因此,性别比例的演化既有亲缘结构的影响,也受到识别能力、资源分配机制等生态和行为因素的调节。
观察群体的成虫数量不能直接代表投资比例,因为雄性和雌性幼虫的培养成本可能不同。研究者需要计算生物量或资源投入,并考虑工虫生育的雄性。
奴役体系的反转
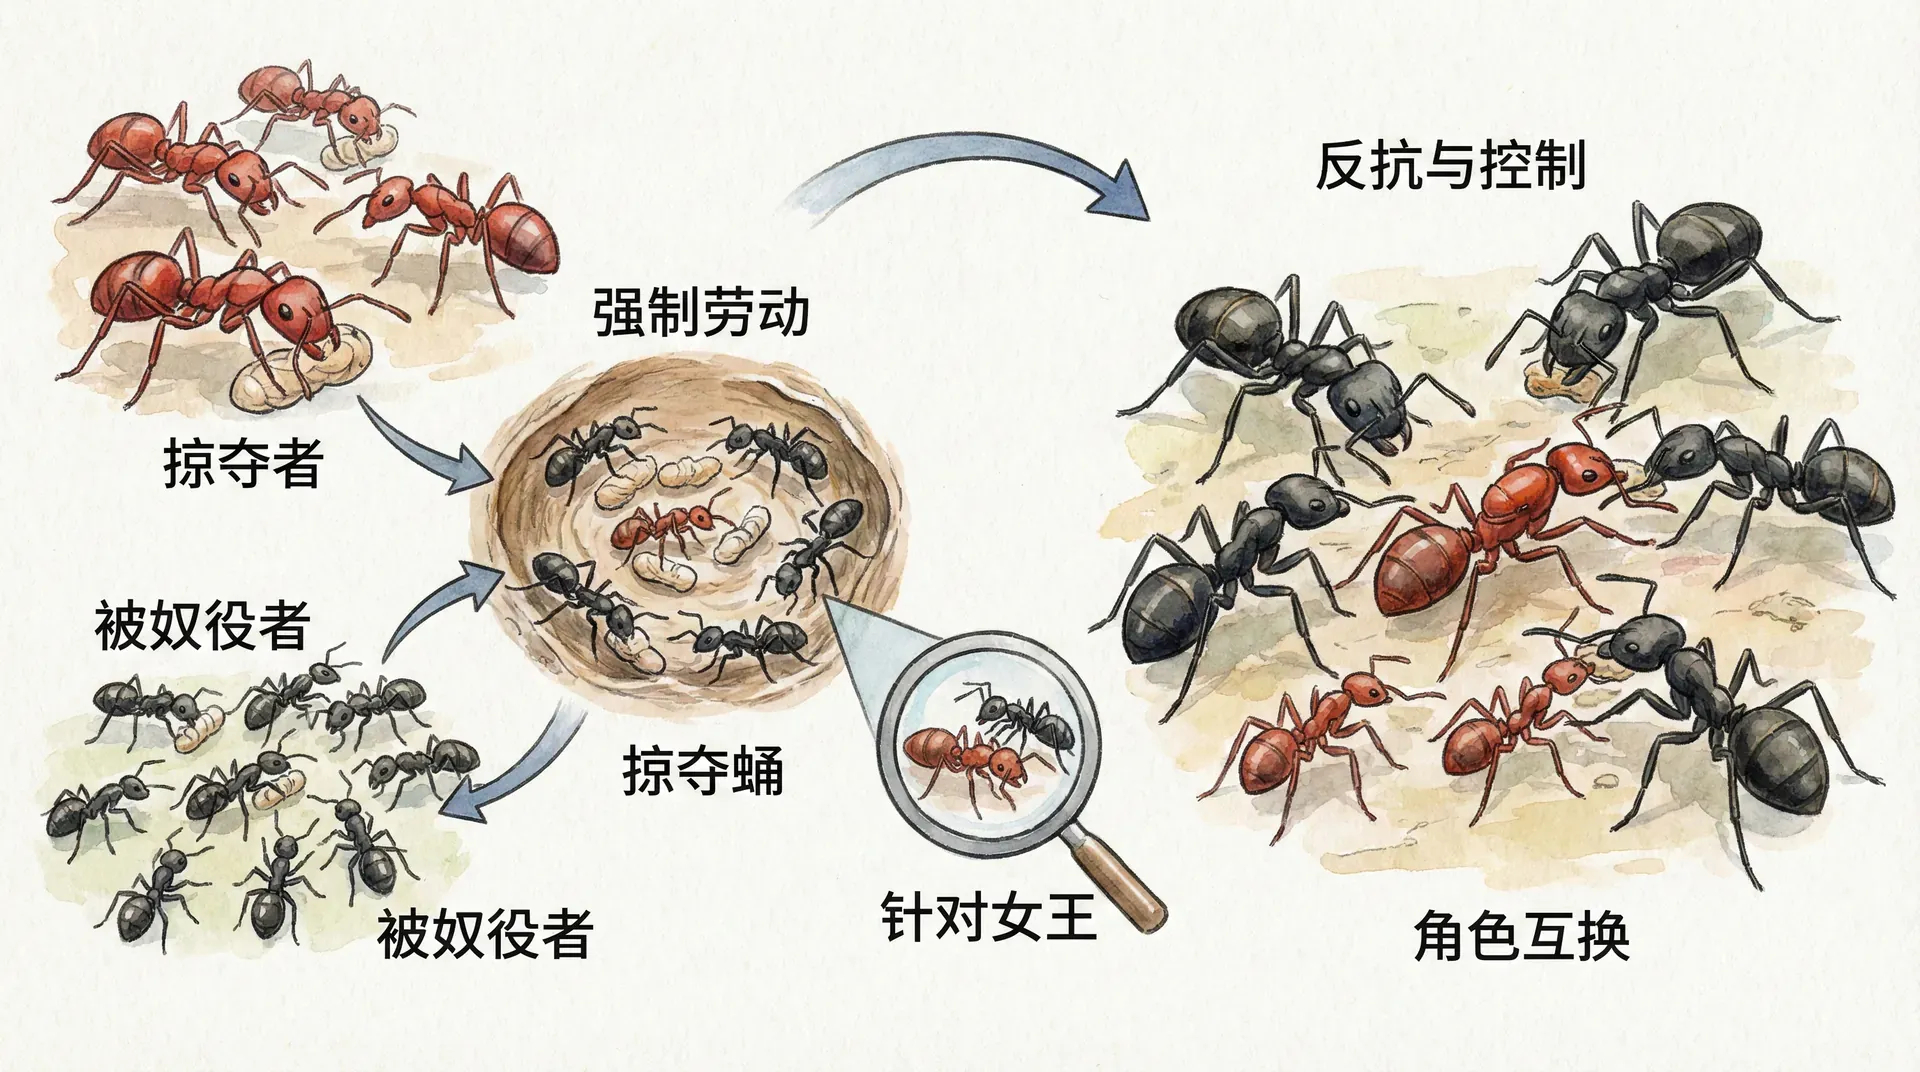
某些蚂蚁会袭击其他物种的巢,夺取蛹;羽化后的工蚁把寄生巢气味当作本巢线索并承担劳动。这类社会寄生利用了幼虫期形成的巢伴识别系统。
宿主并非毫无反应。一些种群会加强巢防御、识别寄生者或破坏寄生巢中的后代。寄生压力不同的地区,抵抗行为也可能不同,为共同演化提供了可比较的自然实验。
奴役蚁体系演化机制对比
“反转”不是群体觉醒,而是带有不同识别和抵抗倾向的宿主留下后代数量不同。描述机制时,应避免用未经证实的固定成功率填补数据空白。
蚂蚁的农业革命
切叶蚁采集植物材料培养真菌,并从真菌获得营养。蚂蚁维持菌圃、清除污染,真菌则把植物底物转成蚂蚁可利用的食物。这是长期共同演化形成的互利共生。
某些细菌还能产生抑制菌圃病原物的化合物,系统因而包含多方相互作用。参与者利益大体一致,却仍存在传播方式、资源分配和病原入侵带来的冲突。
共生不是一次“发明”,也不是蚂蚁理解农业原理后作出的计划。能够更有效维持菌圃的行为和微生物组合在群体繁殖中更常延续,复杂关系由许多小变化积累形成。
蚂蚁与蚜虫的契约
一些蚂蚁取食蚜虫排出的蜜露,并保护蚜虫免受天敌攻击。收益随蜜露质量、天敌压力和替代食物变化;在某些条件下,蚂蚁也会捕食蚜虫。
因此,互利关系是条件性的。双方净收益为正时关系可维持,环境变化后可能转弱甚至转为剥削。用成本收益表记录不同条件,比称为永恒契约更准确。
互惠利他的演化条件
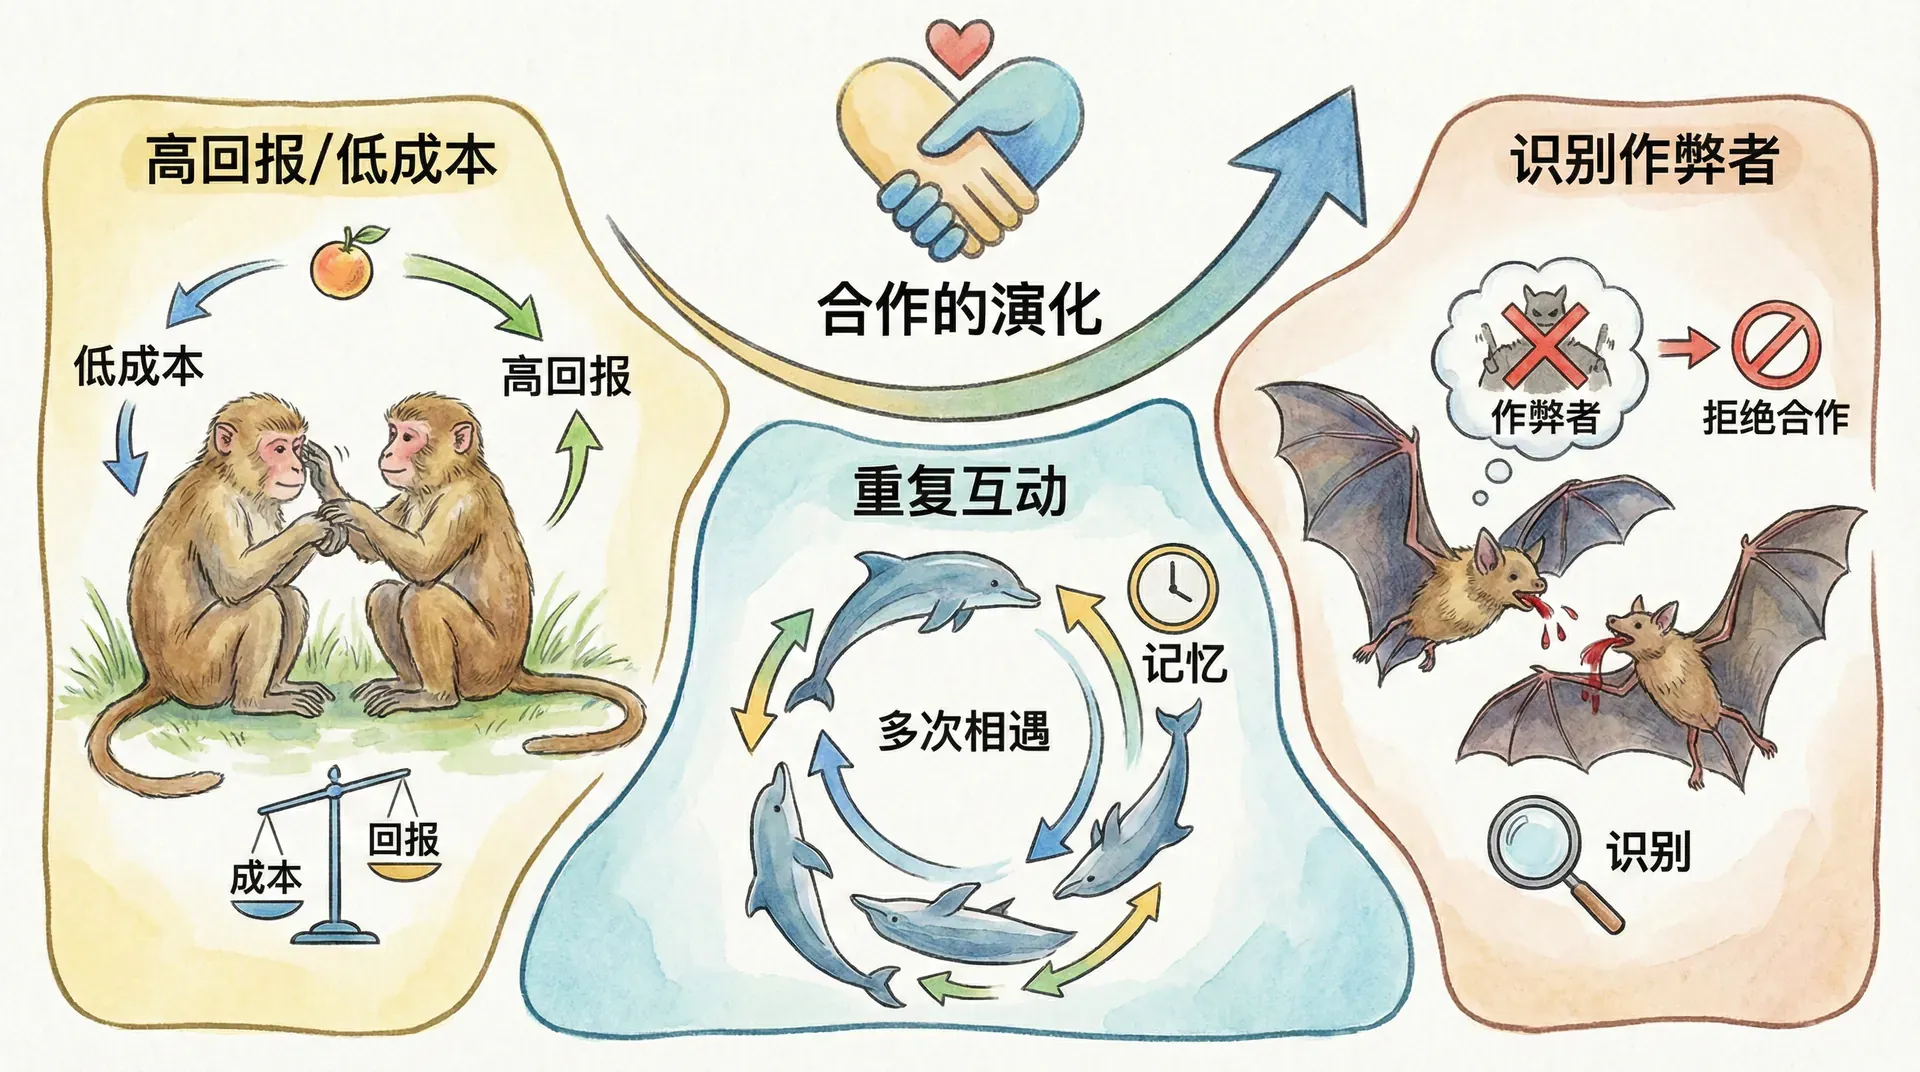
直接互惠要求个体有再次相遇的机会,能根据过去互动调整行为,并且帮助的长期收益可能超过当前成本。吸血蝙蝠分享食物是常见研究案例,但亲缘、熟悉度和需要程度都会影响分享,不能只归因于“你帮我、我帮你”。
合作还可由间接互惠和声誉维持:个体帮助他人后,可能从第三方获得合作。不过这需要信息能够传播且不易伪造,错误声誉也会破坏系统。
惩罚有时能减少搭便车,却本身有成本,并可能引发报复。制度、伙伴选择和空间结构都能改变合作收益,没有一套策略在所有群体中自动胜出。
重复相遇只是一个条件。信息、退出机会和收益结构共同决定合作能否维持。
延迟回报的互惠问题
回报间隔越长,合作越依赖记忆、个体识别和关系稳定。动物未必精确记账,它们可以形成对伙伴的总体容忍度、熟悉感或行为偏好。
短期没有对等回报,不等于互惠失败。帮助的价值会随饥饿程度、风险和能力变化,公平交换也不必每次数量相等。研究者通常分析较长时间的净流向。
欺骗能否扩散取决于被识别的概率、失去伙伴的代价和寻找新伙伴的机会。伙伴可以退出不良关系时,选择本身就能约束利用者。
人类社会中的互惠机制
人类能够超越亲缘关系与简单面对面互动,通过语言、声誉、契约、教育和抽象符号等多种机制,在极大规模和复杂度上建立合作网络。现实社会依靠规则、法律、制度和文化规范来促进信任与协调,抑制欺骗与搭便车。这些社会机制高度复杂,其运作远不能简化为单一的动物行为模型。
在分析人类或其他动物的表面合作行为时,应持续提出质疑:是否存在亲缘关系的影响?个体之间是否有重复互动或长远关系?各方是否都获得直接或间接收益?有没有环境或情境变量能够带来更简单的解释?这些层层追问和仔细检验,有助于我们将关于合作的理解建立在严谨、可证伪的科学基础上,也帮助避免过度拟人化或泛化简单化的归因。