基因的智慧策略
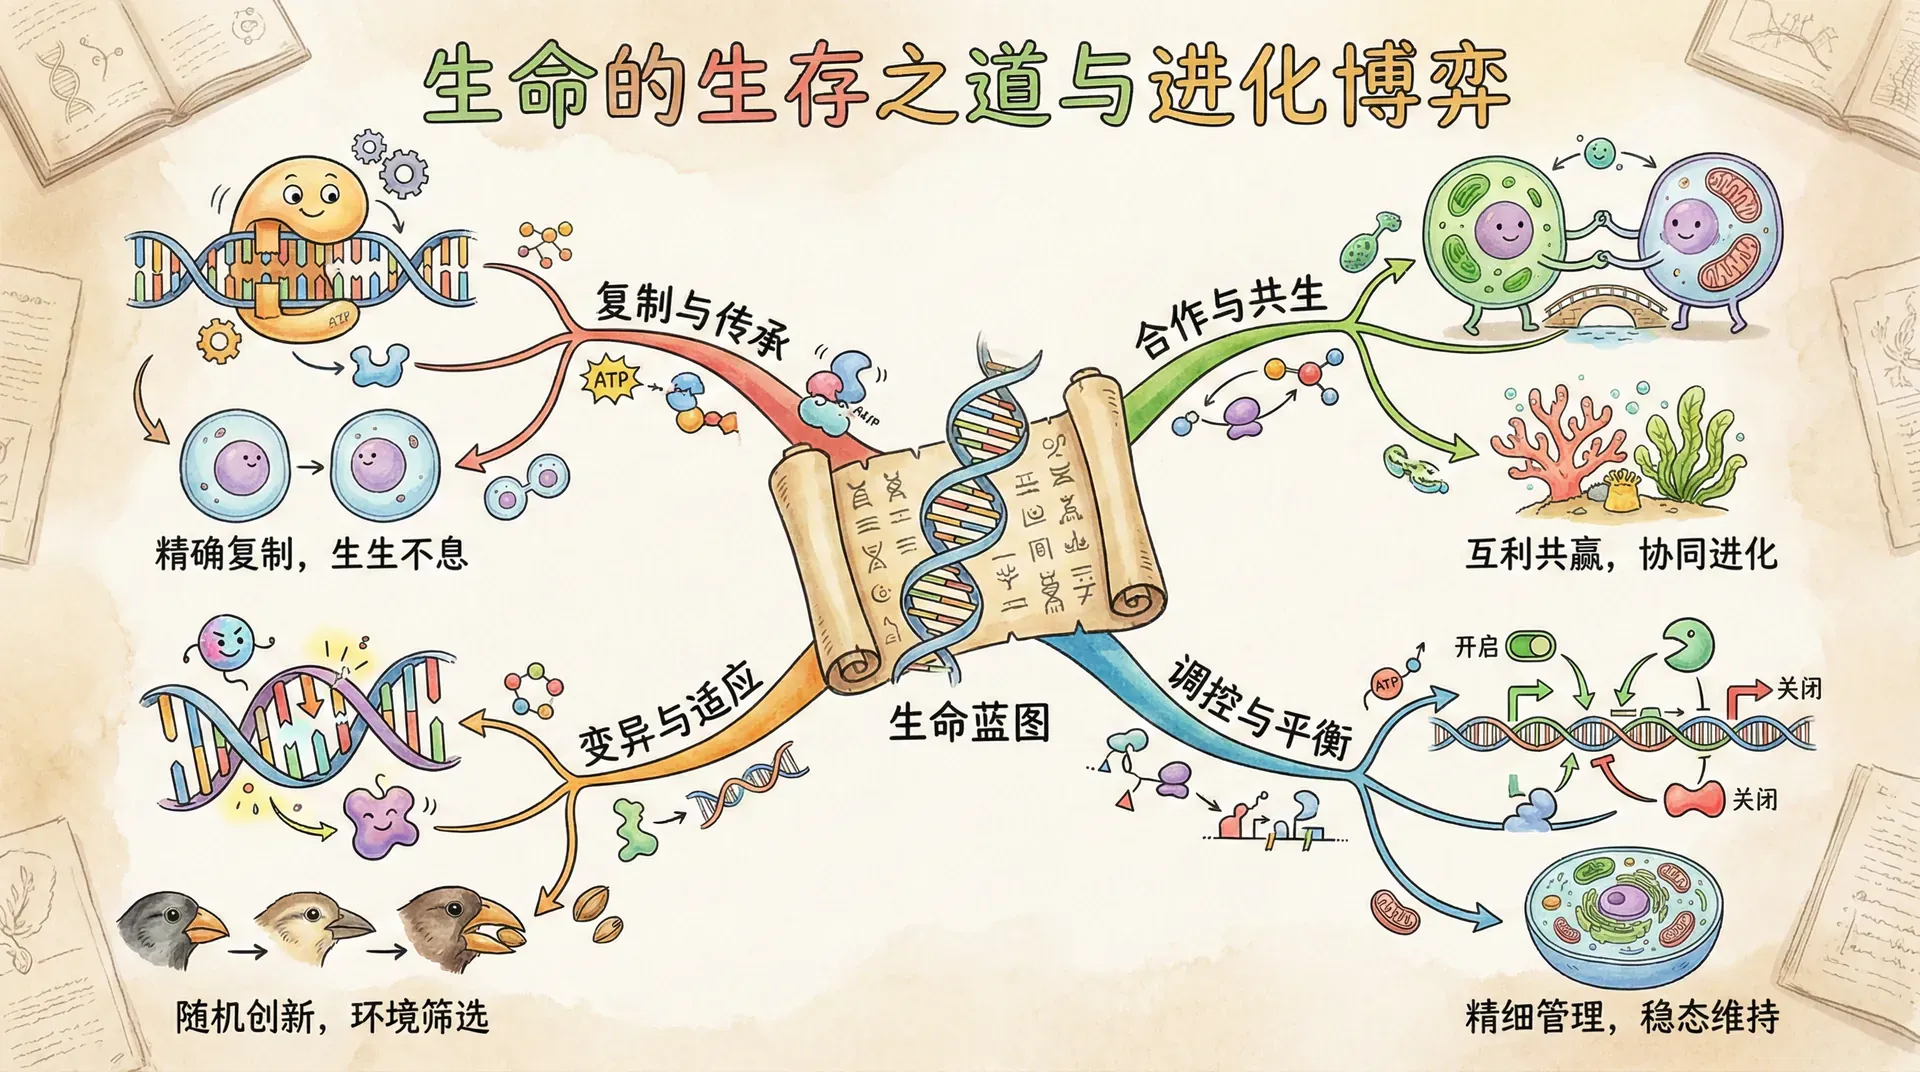
标题中的“智慧”是一种比喻。基因没有意识,也不会寻找亲属或计算收益。自然选择只会让某些遗传变异在后代中变得更常见;如果一种行为同时影响行动者和亲属的繁殖结果,亲缘关系就会进入这项计算。
亲缘选择关注的是等位基因在行动者及受益者之间的统计关联。它解释了为何付出成本的帮助行为在某些条件下仍可能演化,也提醒我们:亲近并不自动产生帮助,帮助也不一定源自亲缘。
基因识别的策略
动物不需要识别某段具体DNA。亲属识别通常依赖熟悉度、共同成长地点、气味或叫声等线索,这些线索与亲缘关系存在统计关联,却可能出错。
绿胡子效应
“绿胡子效应”指同一遗传因素同时产生可识别标记、识别该标记的能力,以及对带标记者的差别行为。绿色胡子只是思想例子,真实系统可涉及细胞表面分子、气味或颜色。
自然界已有少数符合条件的案例,例如某些微生物的黏附基因和社会性昆虫的特定识别系统,但每个案例都需要分子与行为证据。不能把一般的同类识别都称为绿胡子效应。
亲缘关系识别
更常见的机制是利用亲缘线索。与自己共同长大、来自同一巢穴或具有相近气味的个体,平均更可能是亲属。选择可以保留对这些线索作出不同反应的倾向,而不需要个体理解遗传学。
- 亲代可凭巢位、叫声或气味识别幼体。
- 群居哺乳动物可能通过熟悉度和气味区分群体成员。
- 社会性昆虫常以体表化学物质识别同巢个体。
人的家庭合作受亲缘、依恋、法律、文化和个人经历共同影响。亲缘选择能提出部分统计预期,不能把宗族制度或道德选择直接归为基因本能。
亲缘关系的数学计算

基本概率原理
对常染色体上的一个杂合位点,父母把某个等位基因传给每个子女的概率通常为二分之一。每次受精是独立抽样,因此一个孩子继承了某等位基因,并不会改变下一名孩子的概率。
亲属之间“平均共享一半”说的是相对于种群背景的期望相关度,不是整套DNA中只有一半相同。人类彼此绝大多数序列都相同,亲缘分析关注的是可变位点和共同祖先带来的额外相似性。
亲缘关系指数
进化生物学常用相关度 表示行动者与受益者在某等位基因状态上的统计关联。对于随机交配的二倍体常染色体模型,常见期望值如下:
这些值会受近交、种群结构、半同胞关系和性染色体遗传方式影响。使用时必须先说明谱系和基因系统。
计算方法
路径法先找到共同祖先,再沿每条不重复经过同一个体的遗传路径,每经过一次亲子传递乘以 ,最后把独立路径相加。全同胞经父亲和母亲各有一条两步路径,所以 。
第一代表亲通常共享一对祖父母。每位共同祖先对应四步路径,每条为 ,两位祖父母相加得到 。若共同祖先本身近交,还需要加入近交系数,简单路径法就要修正。
亲缘选择的经典条件写作 : 是受益者获得的繁殖收益, 是行动者承担的繁殖成本。它比较边际变化,不是说个体会算数,也不是单靠相关度就能预测行为。
应用汉密尔顿法则时, 与 必须用同一适合度尺度估计, 也要与种群背景相对应。三个量缺一不可。
野生动物中的亲缘选择
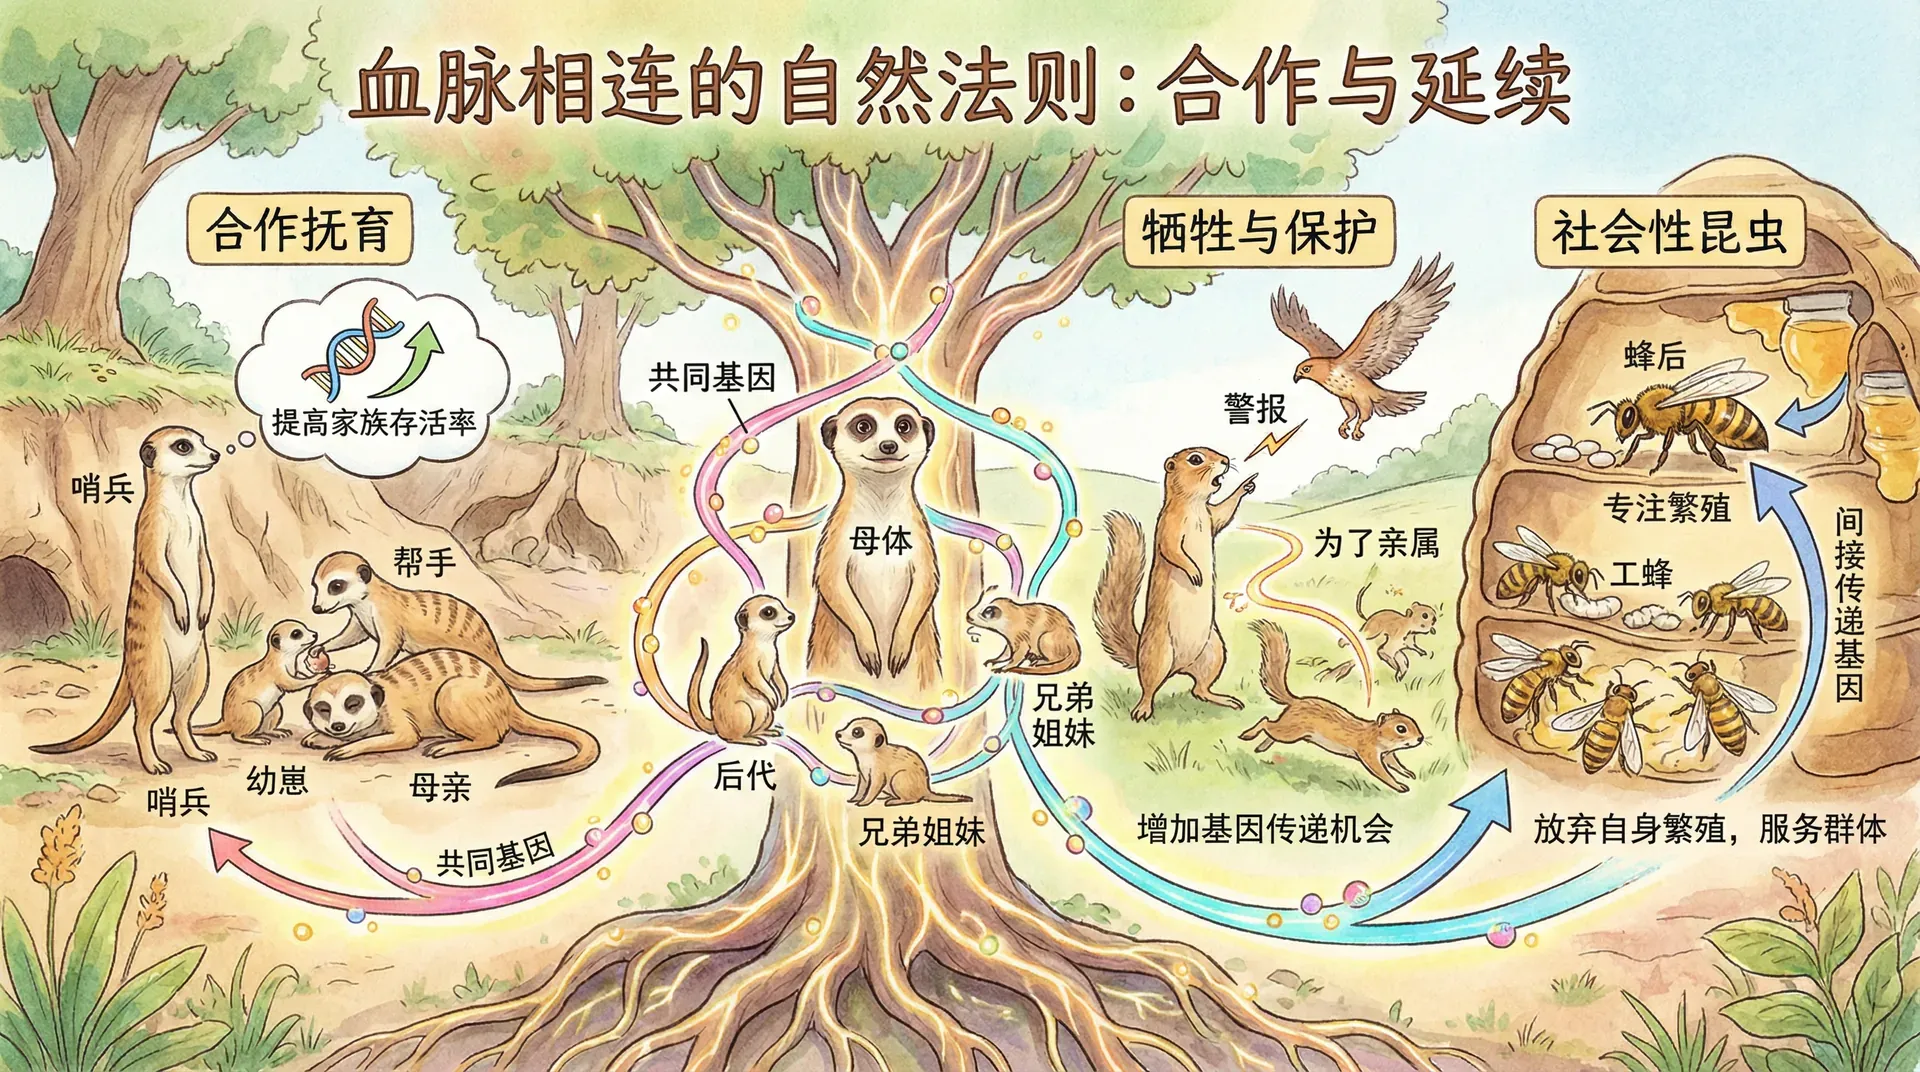
验证亲缘选择通常需要三类证据:行为是否带来成本和收益,帮助是否随亲缘度变化,以及替代解释能否排除。只看到动物救助同伴,还不能断定它由亲缘选择造成。
川金丝猴的群体行为
川金丝猴生活在多层次社会中,个体会警戒、结盟和照顾幼体。解释某次警报或防御行为时,需要知道发声者与附近个体的亲缘、捕食风险和社会关系。不能假定成年雄性一定留下吸引捕食者,也不能用未经测量的“平均相关度0.3”计算收益。
长期行为记录结合非侵入式遗传取样,可以检验亲属是否更常得到支持。即便亲缘有效,互惠、配偶关系和群体防御也可能同时发挥作用。
中华白海豚的救助行为
鲸豚托举受伤或死亡个体的行为已有观察记录,但行动者与受助者的关系并不总是清楚。它可能涉及母幼关系、社会依恋、对异常个体的反应或呼吸需求等多种机制。
行为的感人外观不能替代机制证据。判断亲缘选择,需要同时测量亲缘关系、行为成本和对生存或繁殖的影响。例如,中华白海豚保护也不能以“近亲繁殖高”为前提。小种群更需要关注遗传多样性、栖息地连通、航运噪声和污染等综合压力。
识别亲属的实际方法
动物可能根据共同成长、巢穴位置、气味、声音和表型相似性推断关系。规则通常“在平均意义上有效”,寄生者、收养和群体交换都可能造成误判。
研究者可通过交叉哺育、气味交换或播放叫声检验线索,但实验要避免伤害动物,并区分识别能力与实际选择:动物即使能认出亲属,也不一定在所有资源条件下优先帮助。
欺骗与反欺骗
合作与识别机制的发展为个体或群体提供了互惠与分工的条件,但也不可避免地带来了被“搭便车”或欺骗的风险。当一些受益者能够获得好处而无需承担相应的成本,这类变异可能积累并扩散,进而削弱合作体系的稳定性。为了应对这种风险,生物个体常会进化出更精细的识别、评估与拒绝机制,从而改变了选择压力和演化路径。
这种“利用—防御”之间的动态博弈,使合作与反合作特征在种群中共同进化,并不断调整策略和表现。具体包括:
- 识别机制提升后,投机者需要改进伪装或改变行为才能继续获益;
- 当欺骗行为盛行时,合作系统可能进一步收紧规则或部分退化;
- 合作与反合作个体不断相互塑造,推动更复杂的社会行为模式的产生与维持。
正是在这种持续的博弈与演化下,复杂的社会行为才能不断形成、调整并稳定。
杜鹃鸟的寄生策略
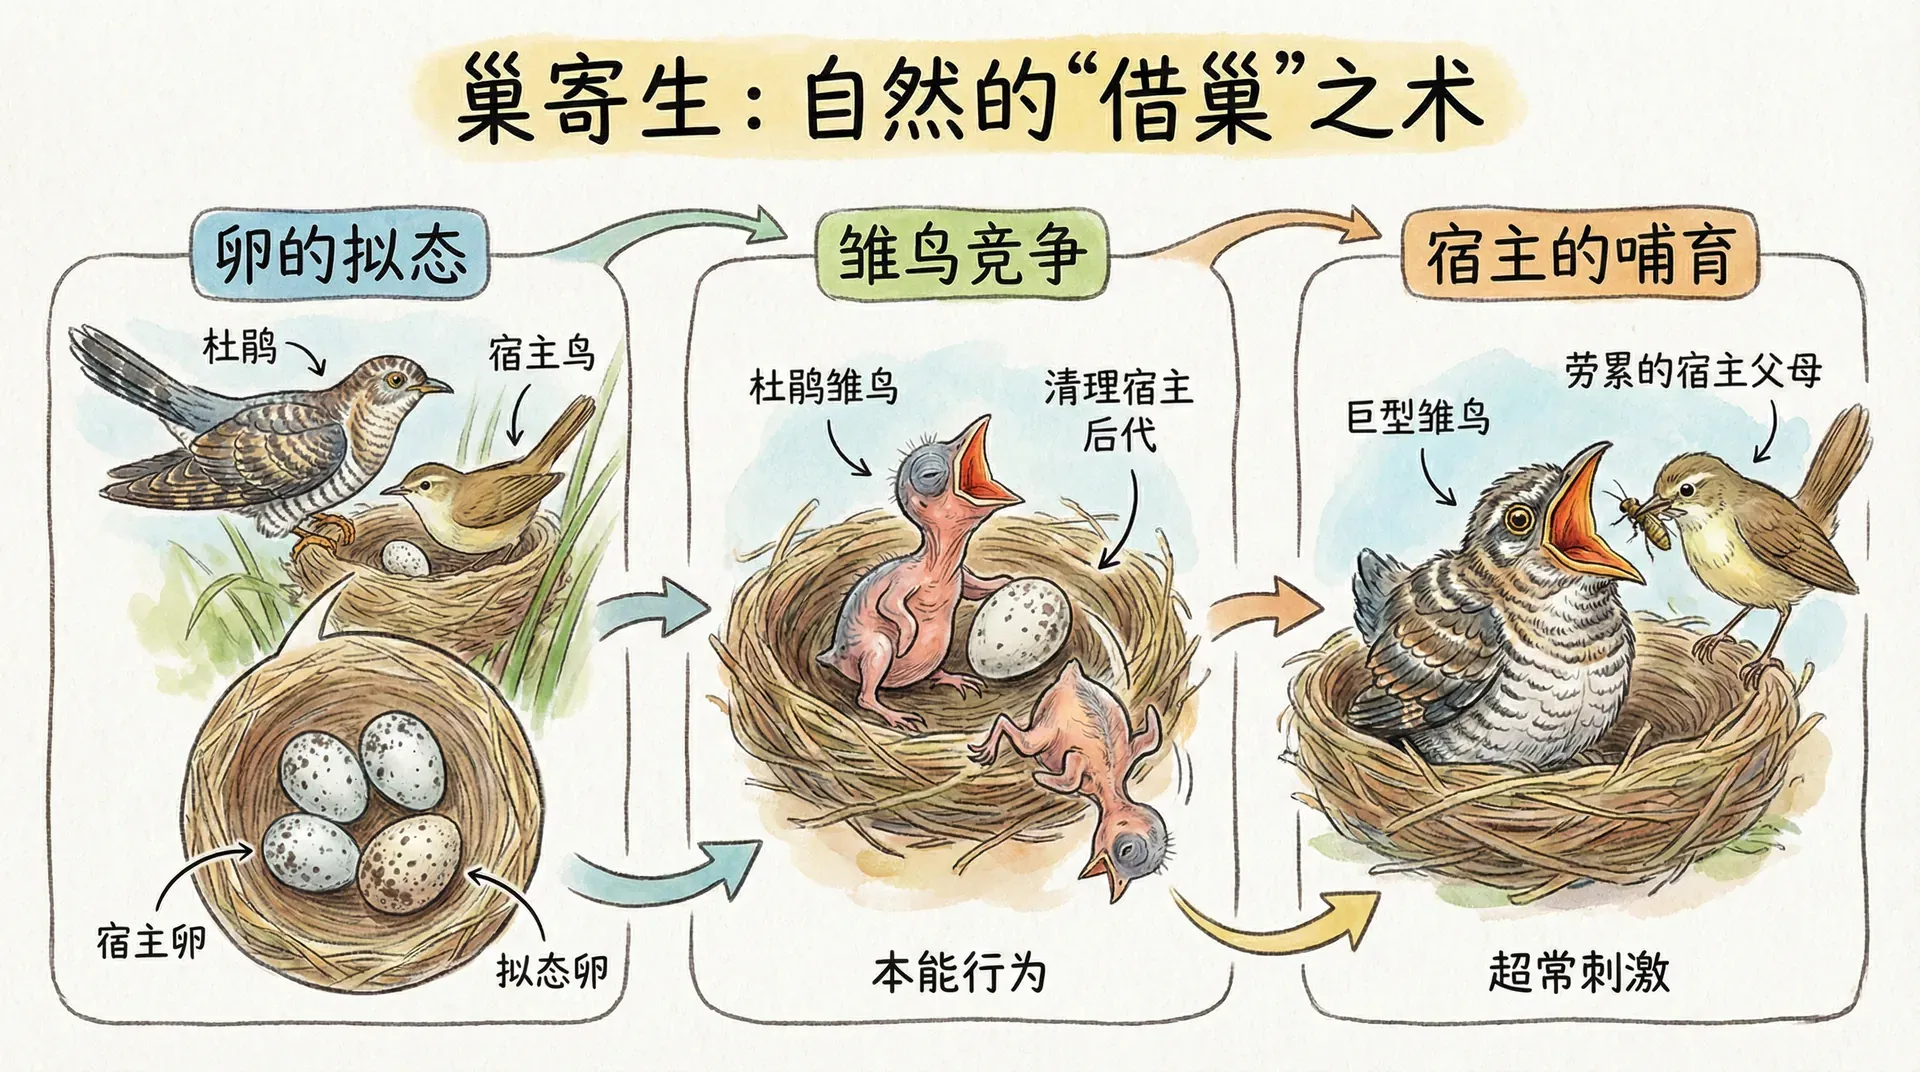
大杜鹃等巢寄生鸟把卵产在其他鸟巢中,由宿主孵化和育雏。不同杜鹃谱系常专门利用不同宿主,卵色和斑纹的相似性可降低被拒绝概率,但不是每枚卵都能完美伪装。
宿主可通过识卵、弃巢或攻击成鸟减少损失,识别也有把自己的卵误判为寄生卵的成本。双方特征随地区和种群而异,形成可测量的共同演化差异。
- 寄生带来的选择:更像宿主卵的类型可能更常被接受。
- 拒绝带来的选择:更能识别差异的宿主可能减少育雏损失。
- 识别的代价:误拒自己的卵会限制识别无限提高。
“欺骗”是描述信号与利益不一致的术语,不表示杜鹃有道德过错。巢寄生展示的是识别规则怎样在成本约束下共同演化。
父母照顾 vs 兄弟姐妹互助
为什么父母照顾更普遍
亲子和全同胞的期望相关度都可为 ,但行为成本、受益能力和关系确定性并不相同。亲代通常拥有采食和防御能力,幼体则处于高依赖阶段,因此亲代投入常有直接而显著的存活收益。
1. 确定性更高
亲缘确定性取决于繁殖方式。母亲对亲生幼体通常较确定,父亲的确定性随配偶关系和照顾方式变化;同窝个体也可能是全同胞或半同胞。动物使用的是线索,不是百分之百的遗传鉴定。
2. 能力与资源优势
成体通常更能获得食物和抵御捕食者,单位投入给幼体带来的收益可能很大。若幼体有能力帮助同胞,或者协助能积累育幼经验,手足照顾也可能演化。
3. 时间和繁殖价值
不同年龄个体的未来繁殖机会不同,但不能简单说年轻者价值更高。成体是否还能繁殖、幼体存活概率以及投入是否挤占其他后代资源,都要纳入生命史权衡。
4. 演化的稳定策略
亲代照顾只有在提高后代收益超过其机会成本时才会受到选择。鱼类、鸟类和哺乳动物的单亲、双亲或无照顾方式都存在,说明没有一种安排在所有生态环境中稳定。
兄弟姐妹互助行为的典型与限制
协助繁殖的鸟类中,成年子代会留在出生地帮助抚育弟妹。亲缘收益、独立繁殖机会不足、领地继承和群体收益都可能促成这种行为。社会性昆虫的工虫照顾同巢幼体,则还涉及祖先婚配制度和群体生活生态。
同胞也会争夺食物和亲代照顾。合作与竞争的平衡随资源和年龄改变,不能把手足关系固定成利他或敌对中的一种。
中国传统文化中的体现与意义
孝道、继承和家族互助是历史与制度形成的文化实践。亲缘选择可能提供一个背景假说,但具体规范需要由人类学、历史学和社会学证据解释,不能直接写成基因利益的社会化表现。
人能够照顾收养子女、朋友和陌生人,也能以法律限制裙带关系。这些事实说明,人类合作建立在亲缘倾向、依恋、互惠、规范和有意识价值选择的共同作用上。
进化解释回答某种倾向如何可能形成,伦理判断回答我们希望怎样生活。两类问题可以对话,却不能相互替代。
实际应用与启发
亲缘信息可用于保护管理,例如避免把稳定家族随意拆散、设计迁地繁育配对和评估近交风险。但保护目标不是最大化某个家族的基因,而是维持种群数量、遗传多样性、行为能力和栖息地功能。
亲缘结构完整有时有利于合作,但过高近交会增加有害隐性变异相遇的机会。保护决策应在社会稳定与遗传多样性之间寻找平衡,并由长期监测修正。
对人类社会行为的理解和借鉴
亲缘选择可帮助提出“亲属之间是否平均更愿意互助”这类问题,却不能预测某个家庭的具体选择。家庭关系还受抚养经历、资源、性别规范、法律和个人价值影响。
现代社会依靠声誉、契约、公共制度和共同身份,把合作扩展到陌生人之间。理解亲缘倾向的意义,在于看见它只是众多影响因素之一,并思考怎样用公平规则避免偏爱造成的不公。
用进化理论理解行为时,应把统计倾向与个人命运分开,把机制解释与价值评价分开。这样既能使用亲缘选择的洞见,也不会把复杂的人际关系化约为血缘。
总结
亲缘选择解释了帮助行为在满足 等条件时为何可能增加,但相关度、成本和收益都要通过真实数据估计。绿胡子效应、亲属识别和巢寄生展示了识别系统的多样性与局限。
基因不会认亲、权衡或制定方案。动物依靠线索作出行为,选择改变这些行为规则在种群中的比例。保留这一层区别,才能准确讨论亲代照顾、手足合作与人类家庭。