生物进化的历史进程
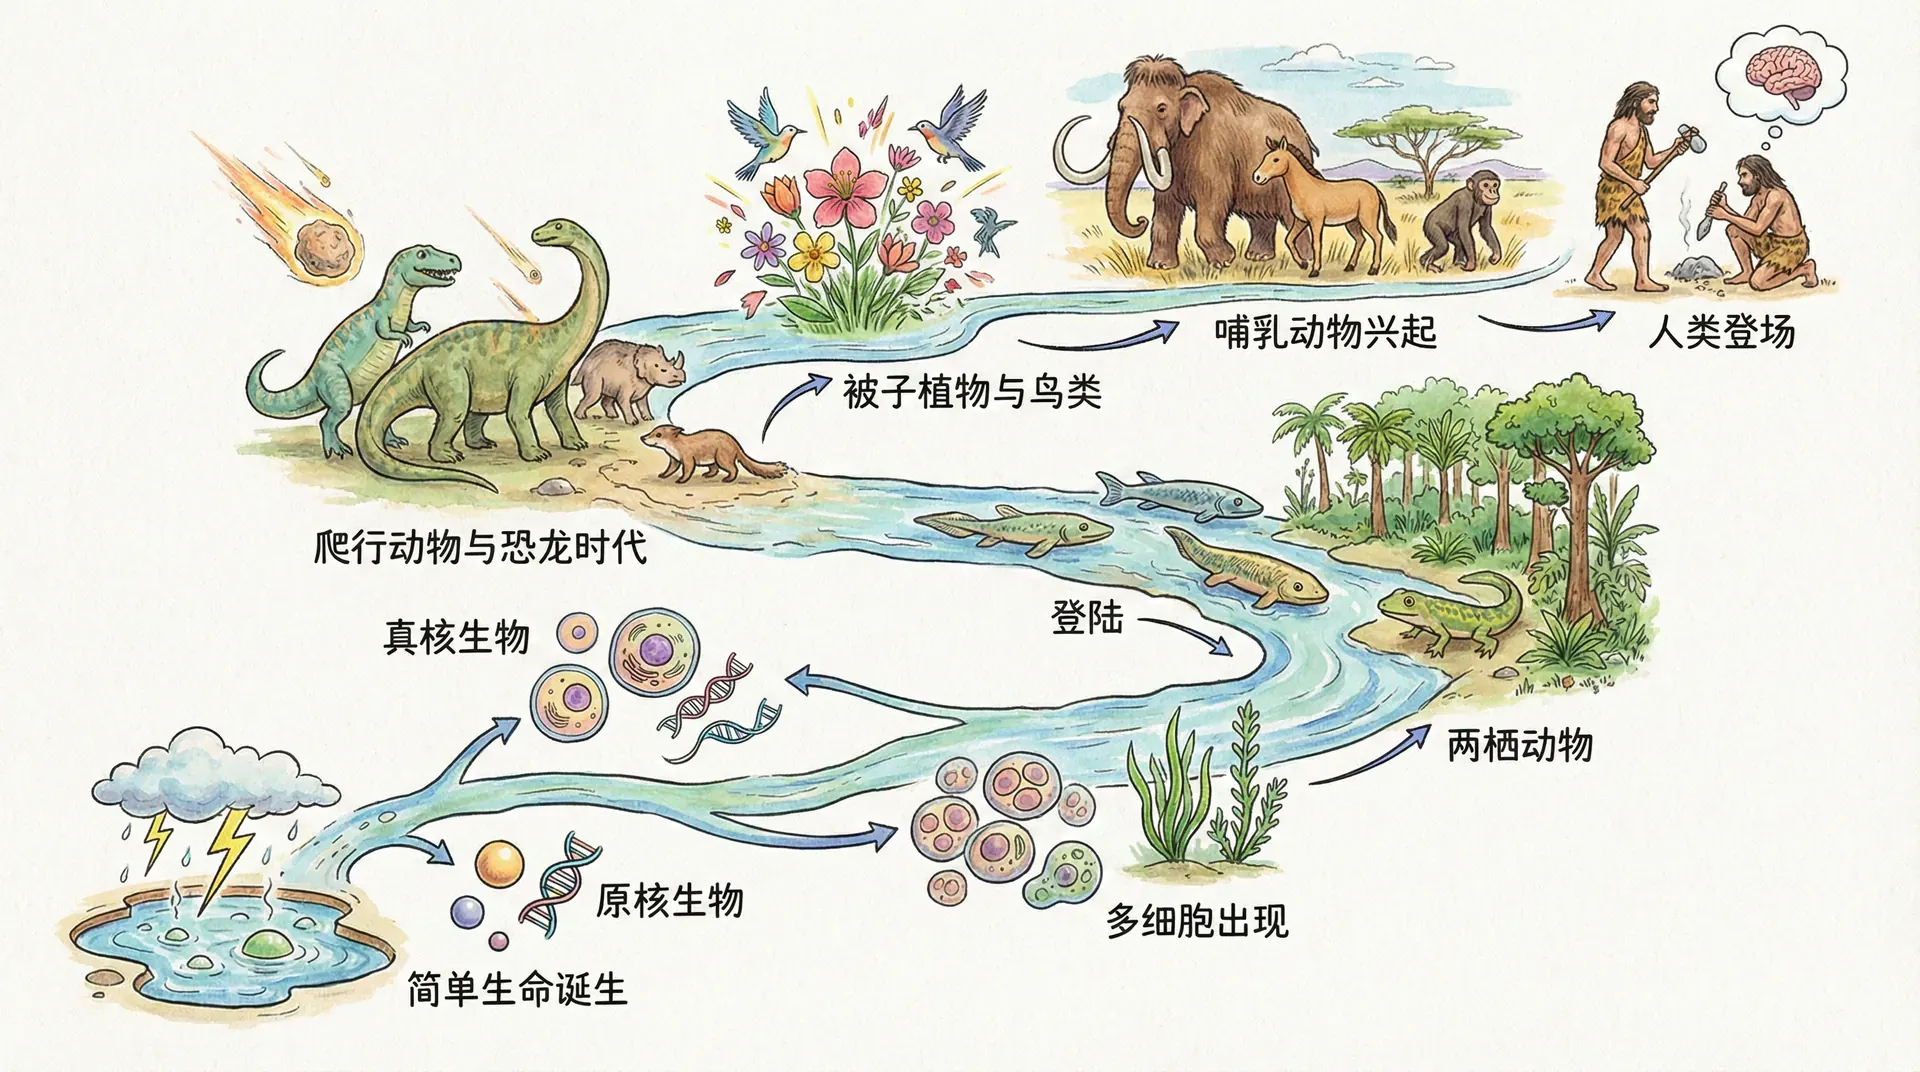
生命史不是从低级到高级的直线,而是一棵不断分支的树。现存细菌、植物和动物都经历了同样漫长的演化历史,只是适应了不同生态位置。复杂结构的出现没有预定目标,许多分支也曾繁盛后灭绝。
化石、比较解剖、发育生物学和分子序列共同帮助我们重建历史。证据可以给出大致先后和亲缘关系,却很少支持“某个器官在某一刻突然诞生”的简单故事。
多细胞生命的出现
多细胞性在真核生物中独立出现过多次。细胞黏附、通讯、分工和生殖细胞形成等变化逐步累积,使细胞群能够以整体方式生长和繁殖。多细胞并不总比单细胞有优势;它需要协调成本,却能形成更大体形、内部环境和专业化组织。
最早的多细胞生物可能结构简单。随着细胞分工增加,一部分细胞承担运动或摄食,另一部分负责繁殖。只有当合作带来的收益能够与共同繁殖联系起来,内部“搭便车”细胞才不至于轻易破坏整体。
植物、真菌和动物的多细胞性来源不同,细胞壁、发育方式和营养模式也不同。把它们放在一起比较,能看到相同挑战如何产生多种解决方案。
多细胞性不是一次发生后传给所有复杂生物的创新。不同支系独立获得它,说明相似挑战可以产生不同发育方案。
运动能力的革命
主动运动让生物能够寻找食物、躲避不利条件或接近配偶,但运动需要能量,也会增加暴露风险。肌动蛋白和微管等细胞骨架早已存在于单细胞祖先中,动物肌肉是在这些分子基础上形成的专业化组织。
运动能力并非动物专属。单细胞生物可以用鞭毛或伪足移动,植物也会通过生长、膨压和快速电信号改变器官位置。植物不能像多数动物那样整体迁移,却能以多种方式感知并响应环境。
运动与感知相互促进:移动越快,越需要及时获得方向和危险信息;感知越精细,越能提高运动收益。但这不是“环境要求神经系统出现”,而是具有不同感知和运动能力的变异留下了不同数量的后代。
神经系统的诞生
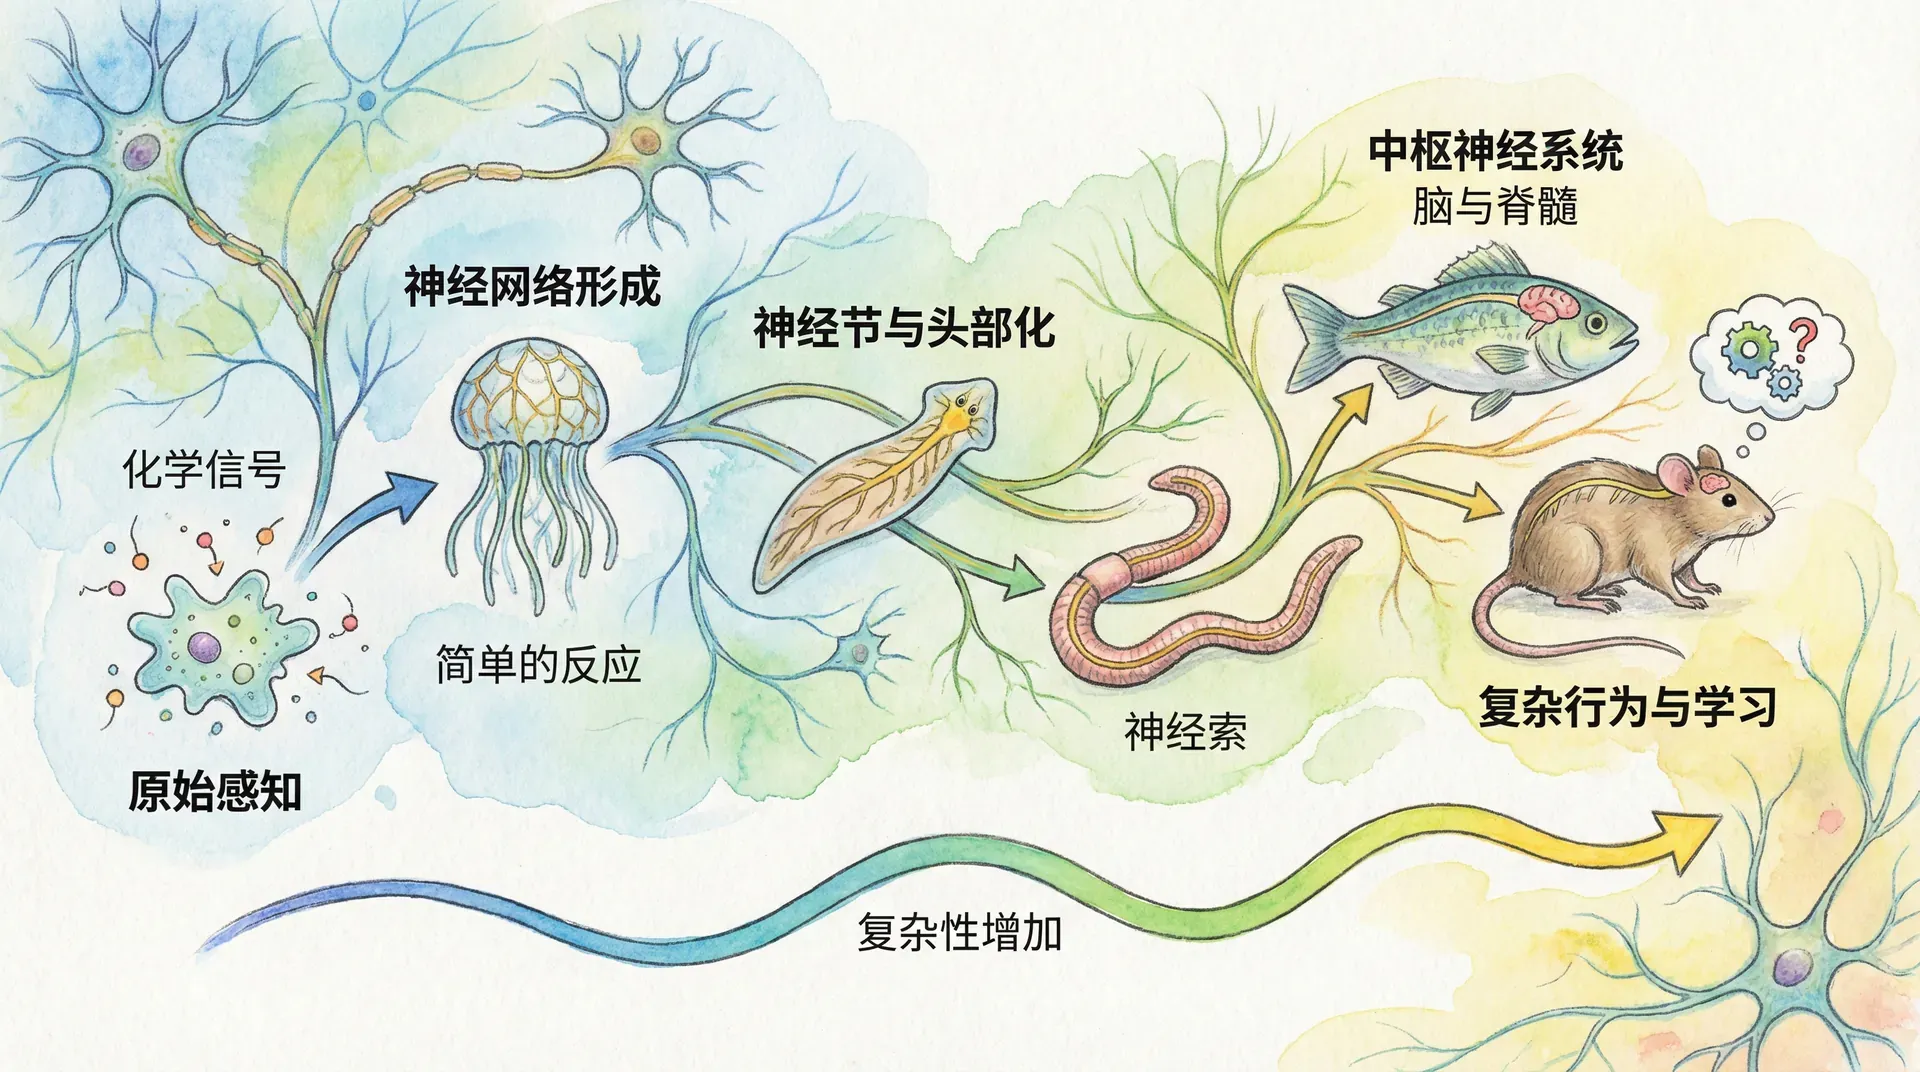
细胞之间用化学和电信号交流的机制早于神经系统。动物演化把这些机制组织成能快速传递信息的神经细胞与网络。简单神经网已经能协调收缩和摄食,集中化的神经节与脑则有利于整合来自不同感觉器官的信息。
神经系统不是一步完成的装置。不同动物支系拥有不同组织方式,有些没有集中的脑,却能完成复杂的环境反应。比较它们可以帮助研究者推断神经元类型和回路怎样逐渐多样化。
神经元的结构特征
神经元通常以树突接收信息、细胞体整合信号、轴突向远处传递动作电位,再通过突触影响其他细胞。并非所有神经元都严格符合这个形态,神经胶质细胞也参与代谢支持、髓鞘形成和信息调节。
人体脑中约有860亿个神经元,连接数量远多于细胞数量。轴突长度随细胞类型差异很大,长距离连接提高传输范围,也带来维持和修复成本。
感知与响应系统
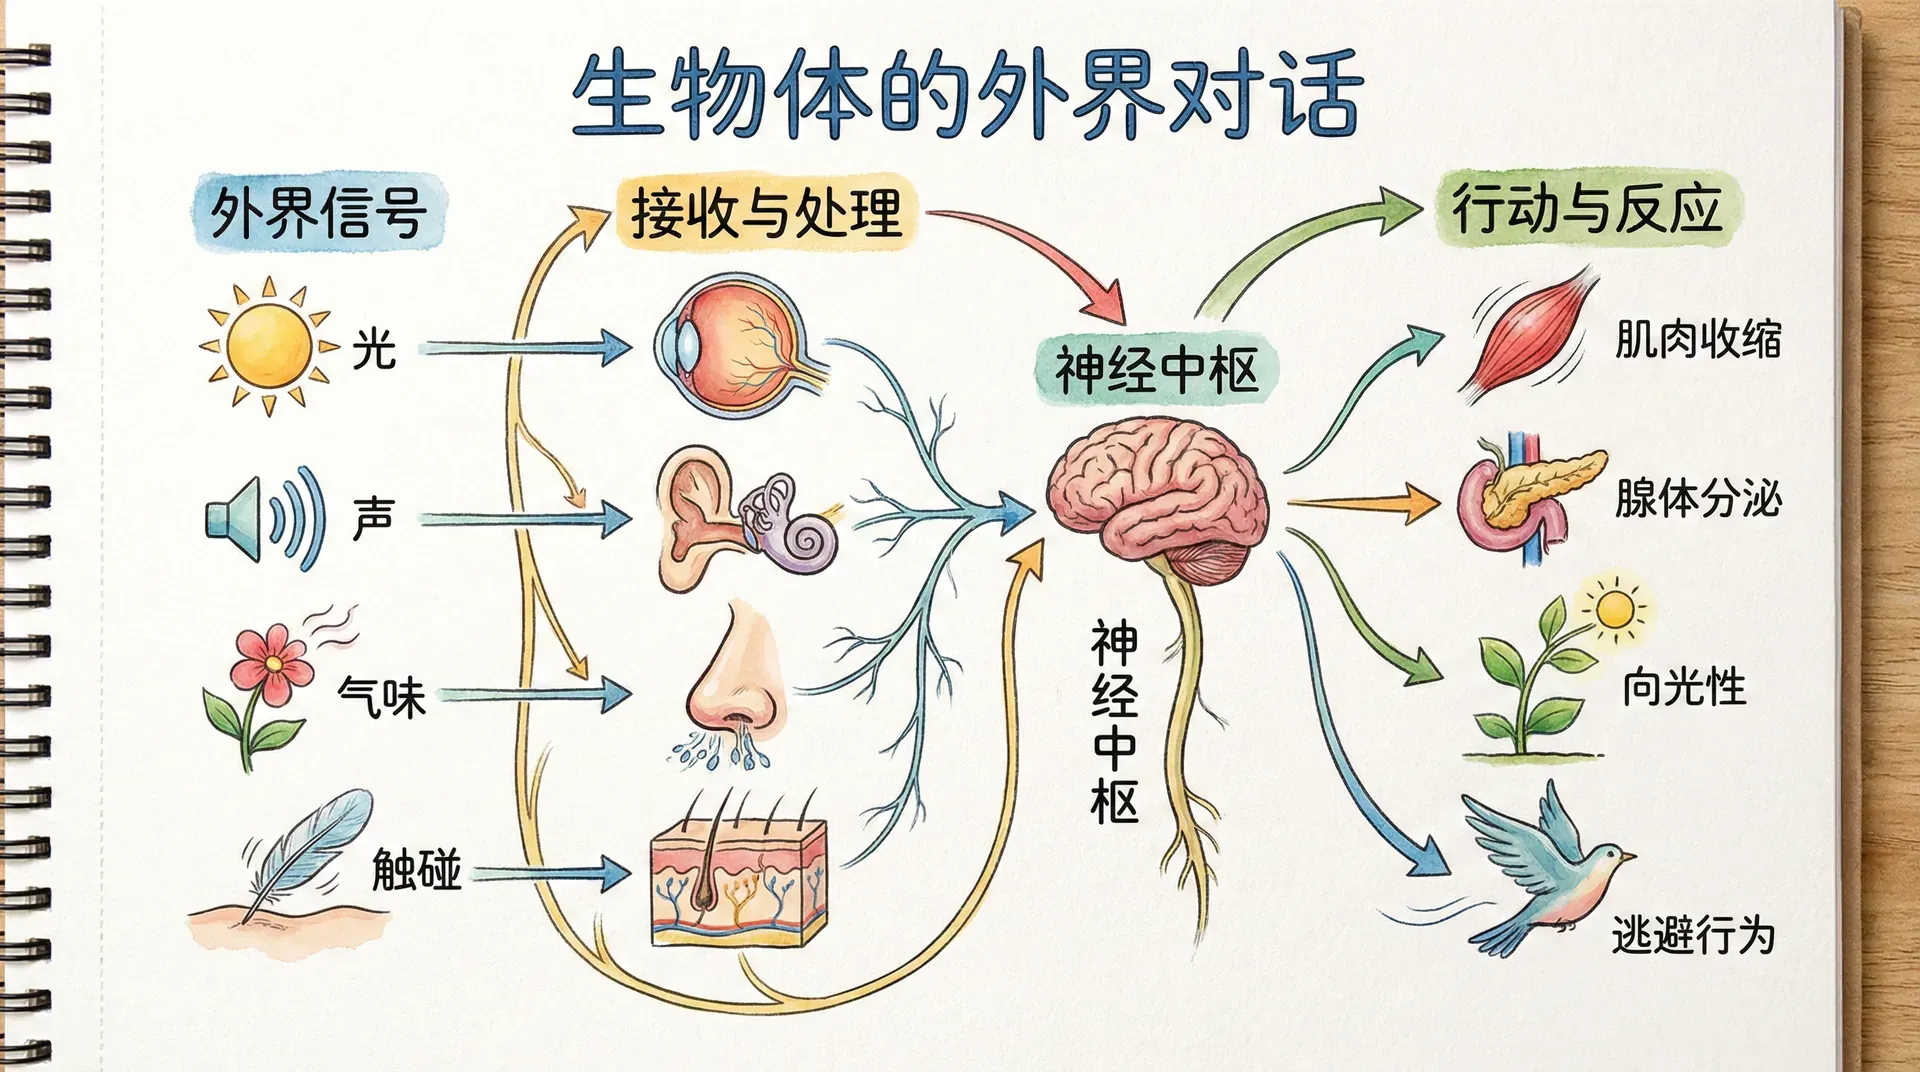
感觉受体把光、机械力、化学物质或温度变化转成细胞信号。神经系统整合这些信号后,调节肌肉、腺体和内部器官。这个过程常有噪声和延迟,因此动物不会获得环境的完整复制,而是提取与生存和繁殖相关的信息。
反射可以让生物快速完成固定的反应,而学习则能够使经验影响和改变后续的行为。二者并非对立,而是互为补充,其关系可以概括为:
- 反射通过先天的神经回路实现,反应迅速、稳定,适合应对常见和突发的刺激。
- 学习则使个体根据生活经验调整行为,例如通过改变突触连接或神经阈值,优化对环境的反应。
- 先天回路为学习提供基础结构,而学习又能在这个基础上,逐步塑造更灵活、适应性更强的应答能力。
这种结合使动物能够兼顾效率与适应性,更好地应对不断变化的环境。
记忆的演化意义
在环境具有一定可预测性时,记忆能帮助个体利用过去经验。食物位置、捕食者特征和社会伙伴都可能被记住。若环境变化太快,旧信息也可能误导,因此维持记忆和大型神经系统的成本必须与收益比较。
记忆有不同时间尺度和机制。短期状态改变、突触可塑性和长期结构变化共同参与,不应把记忆想成写入脑中的一份固定文件。
神经系统的复杂度与生活方式相关,并不构成物种价值的等级。简单回路可能非常适合稳定环境,复杂认知也会消耗大量能量并增加发育时间。另外,神经系统的演化不是单向增加神经元,而是让信息处理方式与生活环境相匹配。减少或简化结构也可能是适应。
目的性行为的本质
动物向食物移动、躲开危险,看起来像在追求目标。行为可以由内部状态、感知输入和反馈回路产生,并不需要假定基因预先知道环境或写好每一步动作。
进化中的“功能”指的是某特定反应、结构或行为在历史上帮助其携带者留下更多后代,是适应在自然选择下被保留下来的结果。这种功能的界定有以下几个要点:
- “功能”是对种群历史的总结,而不是事先设计的目的;
- 某一特征之所以存在,是因为在过去产生过平均更高的繁殖成功,而非当前一定“有用”;
- 功能的判定必须结合演化的因果链条,与个体的主观体验不同。
而个体在行为中的目标感,实际源自神经系统。例如:
- 神经回路能驱动个体朝向食物、逃避危险或追求舒适,表现为“有目的”的行动;
- 这种目标感是当下的生理与神经状态调节的结果,不等同于演化意义上的“功能”;
- 动物“像是在追求目标”,是神经系统集成感知、内部状态与反馈,形成的即时调控。
因此,不能把进化层面的“功能”和个体神经系统产生的目标感混为一谈,它们分别属于不同的分析层级,理解时需加以区分。
负反馈机制
负反馈会抵消偏离,使变量维持在一定范围。例如体温升高可引发散热反应,血糖变化可改变激素分泌。控制目标通常是可变的范围,而不是绝对不变的数值。
正反馈则会放大变化,例如凝血和分娩中的部分过程。生物系统常把正反馈用于快速切换,再由其他机制限制其范围。理解两类反馈的组合,比把身体看成一台按固定设定值运行的机器更准确。
反馈也能作用于行为。饥饿提高觅食倾向,进食后的信号使倾向下降;预测、学习和社会环境又会改变阈值。行为由多个回路共同决定,因此相同刺激未必产生相同反应。
遗传信息的控制方式
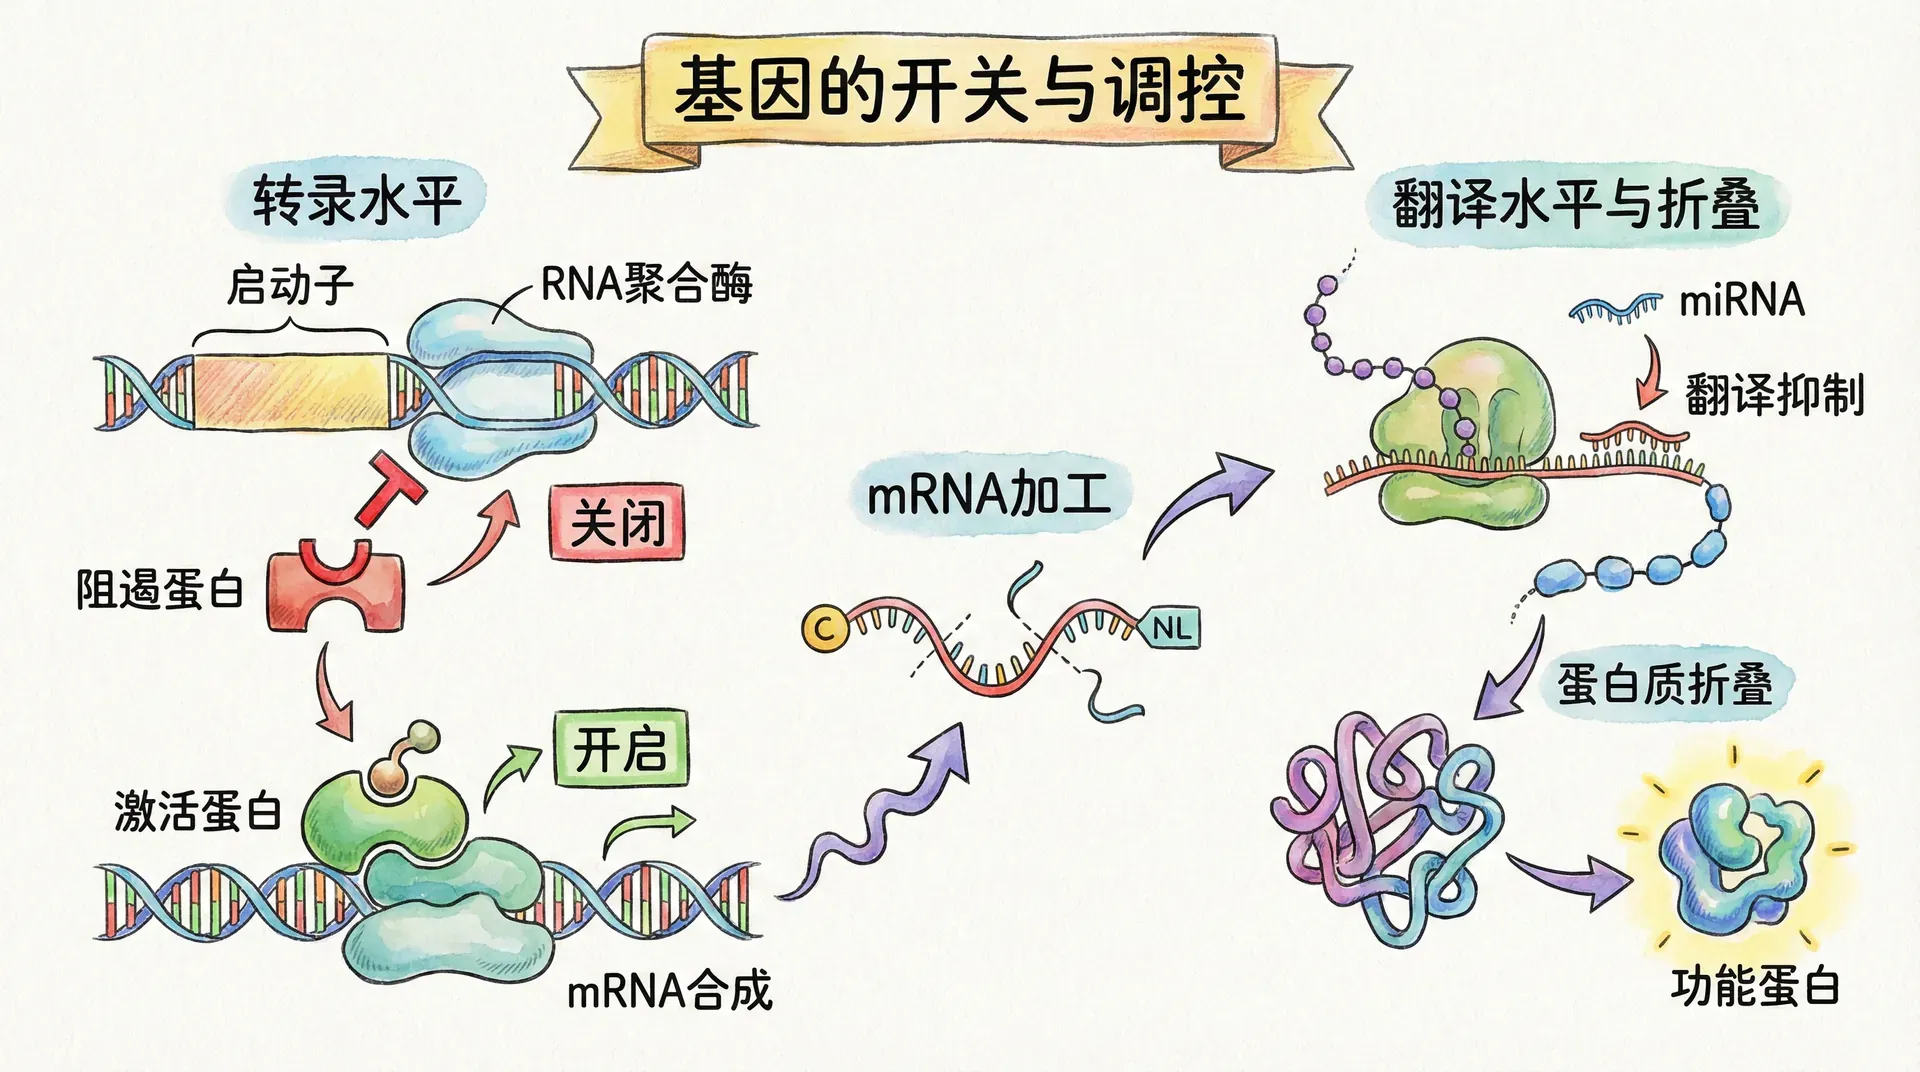
基因不直接发出行为命令。它们编码蛋白质或功能RNA,并通过调控网络影响细胞形成、激素水平和神经回路。环境输入在发育和实时行为中不断参与,最终反应是多层机制共同作用的结果。
调控序列决定某些基因在何时何处表达。小的调控变化可能改变器官发育或行为倾向,但其效应依赖其他基因和环境。把它称为“条件规则”比“祖先写好的程序”更贴切。
学习使个体能在一生内更新反应,进化则改变产生和更新这些反应的生物基础。两种时间尺度相互影响:能学习什么、学习速度和记忆代价都可能受到选择。
时间滞后的挑战
遗传适应需要跨世代积累。当环境变化速度超过种群产生和保留有利变异的速度时,原有性状可能不再合适。这种现象常被称为进化失配。
表型可塑性能够在一定范围内缓冲变化。例如温度、食物或社会线索可改变发育和行为;迁移也能让个体寻找更合适的环境。但可塑性有边界,也可能依据错误线索产生不利反应。
人类利用文化学习和技术迅速改变生活条件,进一步扩大了生物演化与当代环境之间的速度差。研究肥胖、睡眠和压力时,进化失配可以提供假说,却不能替代医学和社会证据。
总结
回顾生命演化的历史,从单细胞到多细胞,再到运动和神经系统,进化不断利用并改造已有结构,创造出新的功能。每种复杂性背后都离不开能量、发育和维护的投入,只有在合适的生态环境和长期压力下,才有可能被保留下来。
不同生物的结构与行为都是进化压力和偶然性的产物。外部环境变化、物种之间的相互作用和基因突变共同影响着每一次演化转折。创新不只是特异功能的出现,更包括多种能力的集成、模块组合与适应。
我们看到某些行为似乎有明确目的,其实是反馈调节、感知、学习和选择等机制长期协同作用的结果。基因和环境共同参与生命发展和调控,没有哪一方可以独自决定生命的全部过程。生命的适应能力,正是在不断平衡历史遗留、现实需求和未来不确定性中塑造而来。