糖类与脂质
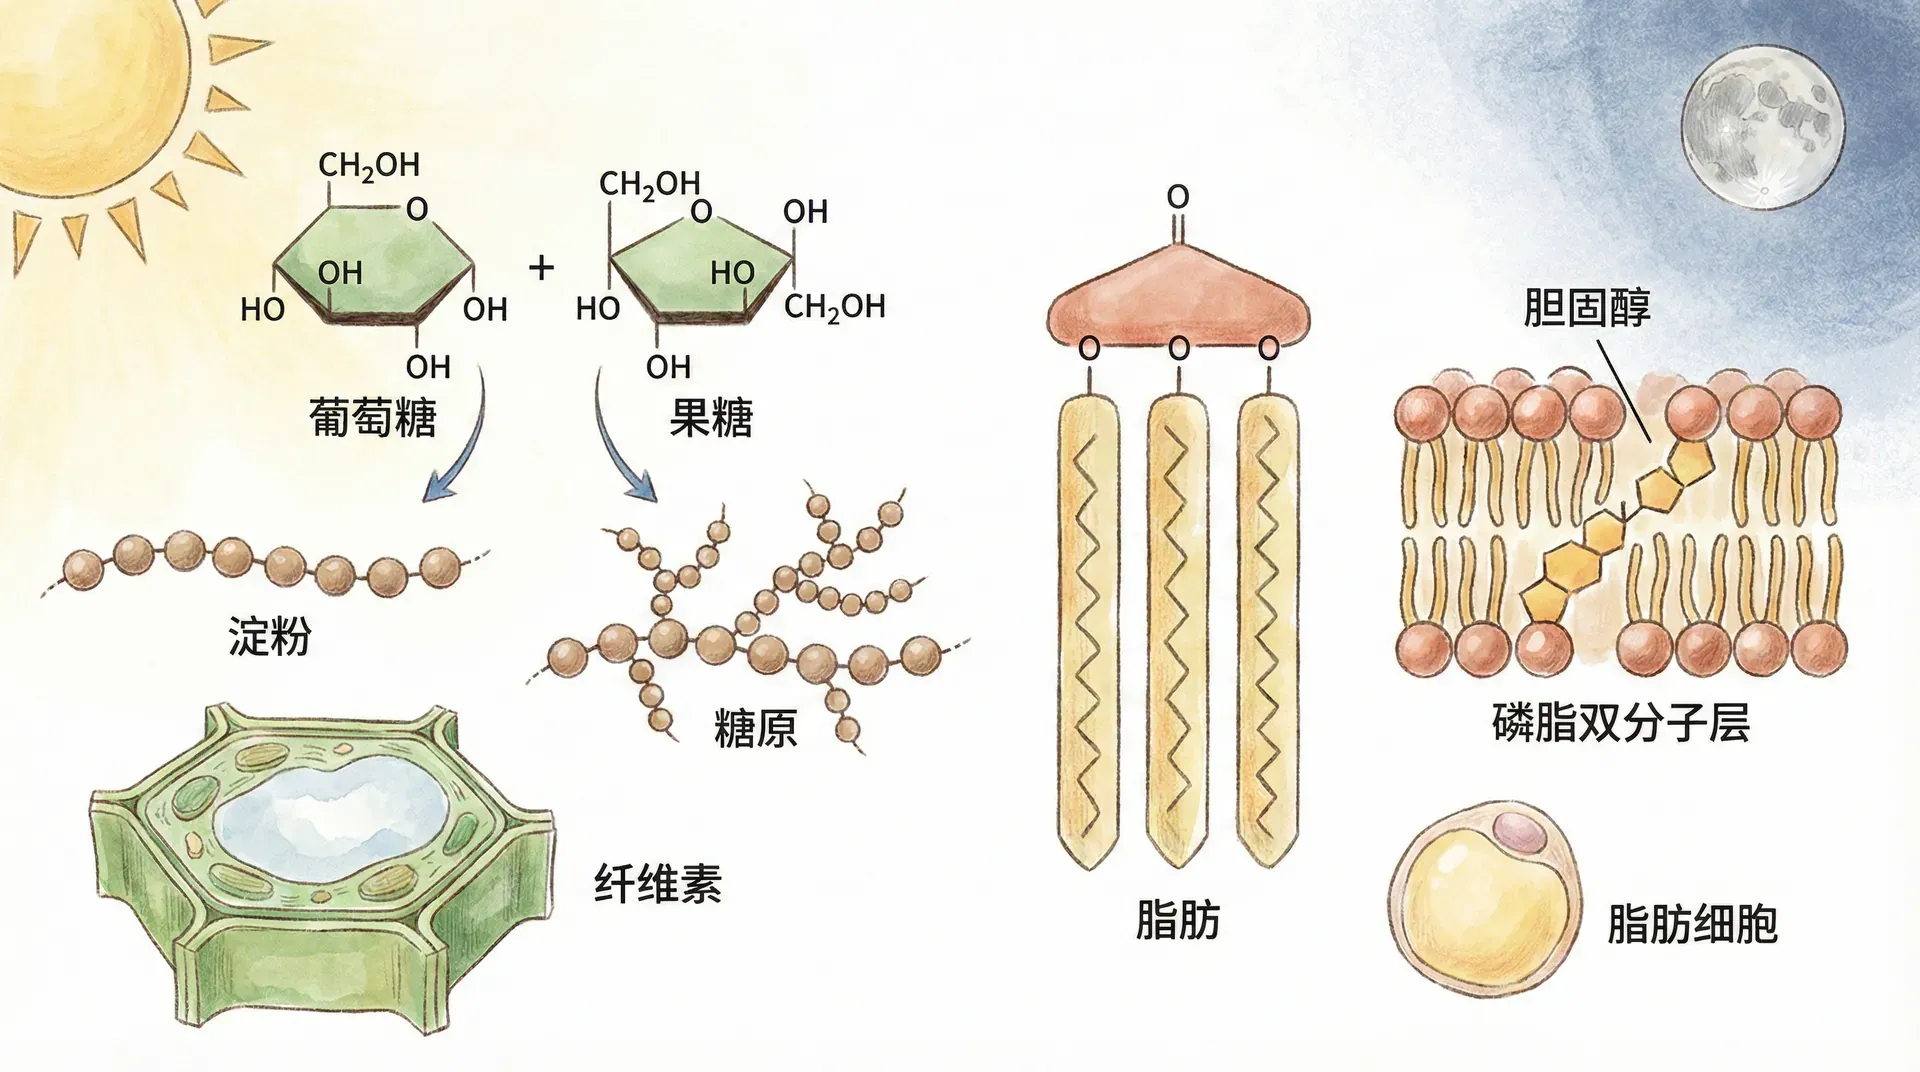
糖类和脂质既是物质与能量代谢的重要参与者,也承担结构、识别和信号功能。葡萄糖是许多细胞常用的燃料,但不同组织和生物也会利用脂肪酸、氨基酸或其他底物。糖原主要储存在动物和真菌中,淀粉是植物常见的储能多糖,它们都能在需要时被酶逐步动员。
磷脂、糖脂和胆固醇等共同组成生物膜,三酰甘油则以较高能量密度储存脂肪酸。脂质还可转化为类固醇激素、前列腺素等信号分子。把这些分子只看成“热量”会漏掉它们在细胞边界、膜蛋白环境和信号网络中的作用。
米饭中的淀粉、牛奶中的乳糖、坚果中的三酰甘油和细胞膜中的磷脂,体现的是同一套结构—功能关系:单体类型、连接方式和空间排列不同,消化、储存与识别方式就会不同。血糖和脂质稳态由摄入、合成、储存、动员和氧化共同决定,不能只用某一种食物或某一类分子解释。
单糖的分子世界
单糖是不能再水解为更小糖单元的糖类。以葡萄糖为例,它的分子式为C₆H₁₂O₆,但同一分子式可以对应不同原子连接或立体构型。酶能区分这些差异,所以看似细小的立体变化会改变糖进入哪条代谢途径、与哪种蛋白结合。
D-葡萄糖在水中主要形成六元环吡喃糖。开链醛基与分子内羟基反应生成半缩醛后,新出现的异头碳可以形成α和β两种异头体;两者经短暂开环再闭环而相互转换,这一过程称为变旋。
在常见水溶液和平衡条件下,β-D-吡喃葡萄糖通常多于α型,开链形式只占很小比例。具体比例会随温度、溶剂和取代基变化,因此36%与64%应理解为近似示例,而不是任何条件下都固定的常数。
淀粉与纤维素都由葡萄糖单元构成,但连接构型不同。淀粉主链以α(1→4)键连接并可带α(1→6)分支,人类消化酶能够水解其中许多键;纤维素由β(1→4)键形成伸展链,人类缺少相应纤维素酶。差别来自糖苷键几何与酶活性位点的匹配,而不是纸张本身不可作为化学反应底物。
异构体的奥秘
葡萄糖、果糖和半乳糖的分子式相同,却分别属于醛糖或酮糖,并在手性中心配置上存在差异。相同分子式并不等于相同形状,转运蛋白和酶会依据官能团位置与三维取向作出选择,这正是立体化学在代谢中的直接影响。
麦芽糖由两个葡萄糖残基通过α(1→4)键连接;蔗糖由葡萄糖和果糖连接;乳糖则由半乳糖和葡萄糖连接。不同糖的相对甜度会受浓度、温度和测试方法影响,所以诸如“果糖是葡萄糖1.7倍”只能作为特定条件下的近似,不能当作固定分子属性。
酶对异构体的选择性来自活性位点中多点接触的几何匹配。一个羟基方向改变,就可能失去氢键或产生空间冲突。不过,同一家族酶也可能接受多个相似底物,催化效率差异必须通过、或等实验参数比较,不能预设为固定的“数千倍”。
糖分子的构象动力学
单糖在溶液中并非只有一张静态结构图。环可以发生椅式构象变化,异头体通过开环与闭环达到平衡,羟基还不断与水形成和断开氢键。这样的动态性使糖既能保持主要构象,又能短暂暴露可参加氧化、糖基化或糖苷键形成的官能团。
D-葡萄糖的开链形式在水中比例很低,却是变旋和某些化学反应的必经中间状态。转换速率随酸碱催化、温度和溶液组成改变,不能用每秒数千次概括所有条件。平衡比例告诉我们各状态有多少,速率则告诉我们状态转换多快,两者需要分开理解。
糖链的复杂性与功能多样性
从单糖到多糖的多级构建
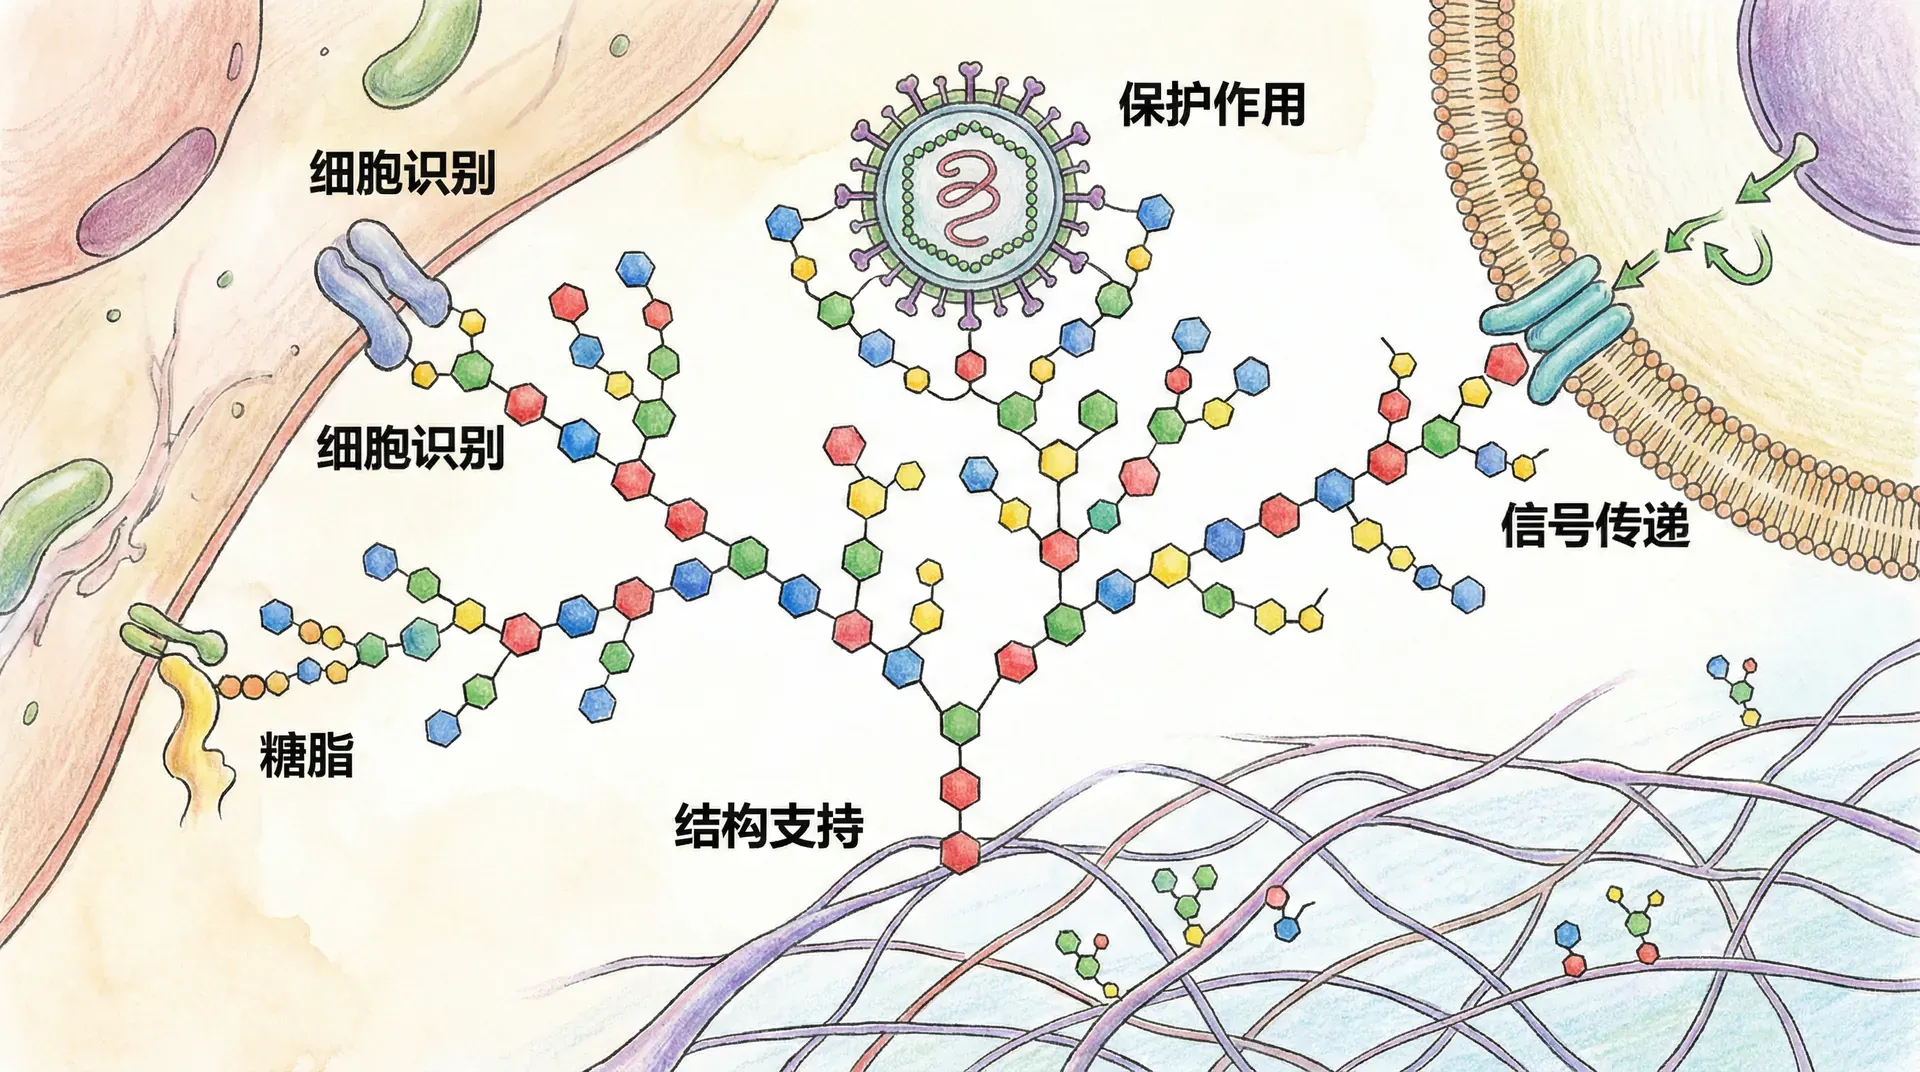
糖苷键可以连接不同单糖的不同碳位,并具有α或β构型,因此少量单体就能形成分支丰富的糖链。蔗糖、乳糖和麦芽糖的组成并不相同;多糖还会因链长、分支频率和修饰方式而呈现截然不同的溶解性、机械性质和酶敏感性。
下方展示了常见多糖的结构特征和功能差异:
米饭口感与直链淀粉和支链淀粉比例有关,也受品种、含水量、储存和烹调方式影响。籼米通常直链淀粉较多,糯米则几乎以支链淀粉为主。支链淀粉可含大量葡萄糖单元,分支间距是统计分布而非每隔固定25个残基出现一次。
多糖分支与意义
分支会增加非还原末端数量,使多个酶分子能够同时从不同末端释放或加入葡萄糖单元。糖原通常比支链淀粉分支更密,因此适合快速动员;但供能速度还受激素信号、酶活性和底物运输控制,不能仅由表面积决定。
日常饮食中的应用也受到分支结构所影响,如汤圆、年糕等黏弹性食品需用支链淀粉高的糯米粉,而米饭、炒饭等讲究粒粒分明时,就偏向于选直链淀粉含量高的稻米。面点师傅在和粉时常以感官判断糊化性能,实则背后正是多糖分支精密调控的结果。
糖蛋白与分子识别密码
糖蛋白和糖脂表面的糖链参与细胞黏附、免疫识别和蛋白质运输。糖链不是一张只对应单一身份的条形码:同一糖基可以被多种凝集素识别,识别结果还取决于糖链密度、空间展示和受体组合。病原体也可利用这些宿主糖结构完成附着或进入。
最著名的实例之一是人类ABO血型系统。其分子基础就在于红细胞表面糖蛋白上的末端糖链种类不同:
输血反应取决于受者血浆中的抗体是否识别供者红细胞抗原,ABO只是多个血型系统之一。类似的糖链差异还会影响细胞黏附、免疫细胞迁移和蛋白质清除,但每种功能都需要具体受体参与,不能把所有糖链都概括为同一种“识别密码”。
蛋白质糖基化
糖基化修饰的基本机制
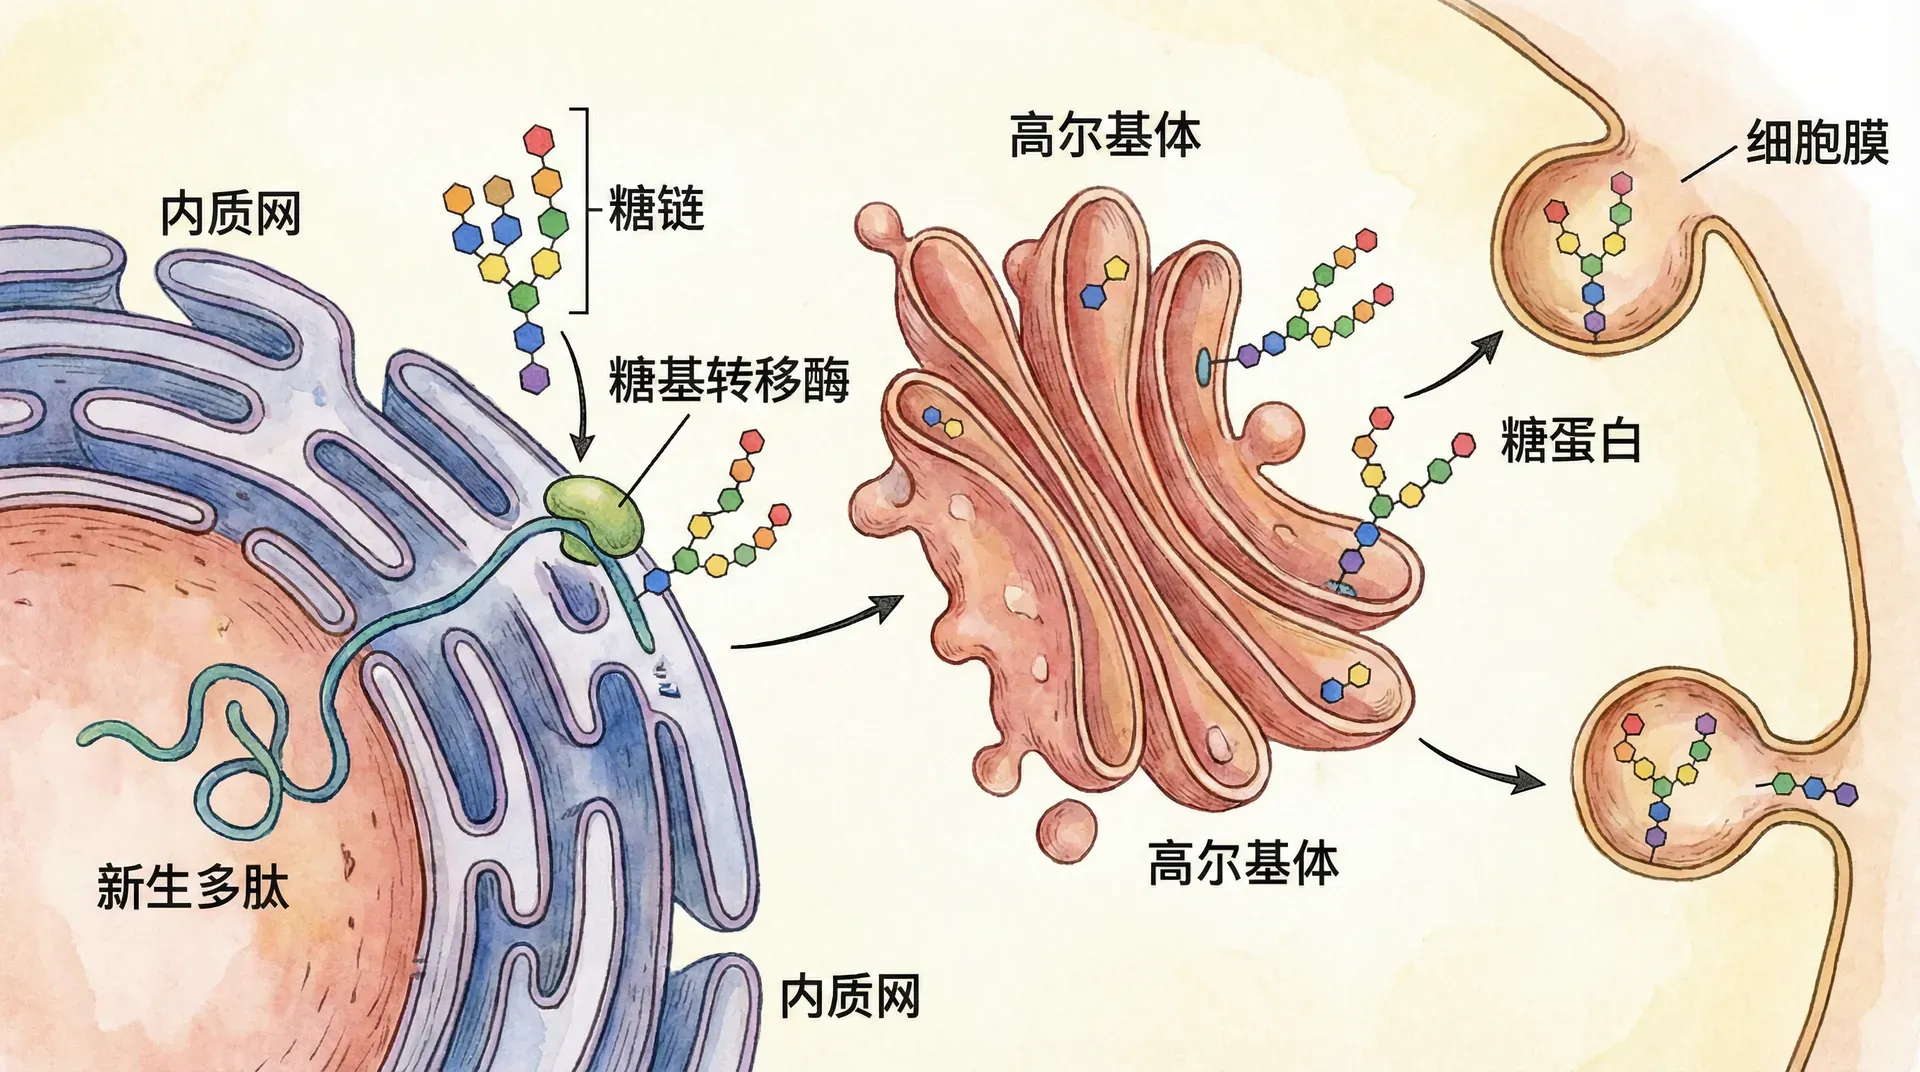
蛋白质糖基化通常由糖基转移酶和糖苷酶在内质网、高尔基体或其他区室中逐步完成。它没有像DNA那样的一一对应模板,因此同一蛋白可出现多种糖型;这种微观异质性来自酶表达、底物供给、运输时间和空间位置的差异,并非随机自助组装。
N-连接糖基化先在脂质载体上组装前体糖链,再转移到新生多肽特定天冬酰胺位点,随后经历修剪和重塑。参与因子很多,但具体数量因所讨论的物种和路径而异。O-连接糖基化等其他类型则有不同的起始位置和加工顺序。
蛋白质糖基化的非模板性意味着即便蛋白质产自同一基因,不同细胞、不同环境条件下可能呈现不同糖链修饰。正是这种“微观异质性”赋予了蛋白质更加精细和多样的功能调节能力。
糖基化对蛋白质性能的影响
糖基化对蛋白质的影响依赖位点、糖链结构和细胞环境:
- 改变溶解与表面性质: 亲水糖链可扩大水合层并影响蛋白之间的接近。
- 调节折叠与质量控制: 内质网中的糖链参与伴侣识别,某些糖基化位点能够提高稳定性,另一些则可能降低活性或改变构象。
- 影响寿命与运输: 糖链可遮挡蛋白酶位点,也可作为细胞内分选或血液清除信号。效果不能概括为所有糖基化都会保护蛋白。
糖基化异常与疾病
糖化血红蛋白HbA1c来自葡萄糖与血红蛋白的非酶促糖化,严格说不属于由糖基转移酶完成的糖基化。红细胞寿命约数月,因此HbA1c反映的是一段时间内的平均血糖暴露,同时会受到红细胞寿命、血红蛋白变体和部分疾病影响。区分糖化与糖基化,可避免把两种机制混为一谈。
肿瘤细胞常出现糖基转移酶表达和糖链加工改变,可能影响黏附、受体信号和免疫识别。一些异常糖链可作为生物标志候选或治疗靶点,但它们未必只存在于肿瘤,诊断价值要以灵敏度、特异度和临床结局验证。
脂质分子的自组装原理

许多脂质具有亲水头部和疏水尾部,因此在水中倾向于把疏水部分聚在一起、把亲水部分朝向水相。分子形状、尾链数量、温度、盐和浓度共同决定它们形成胶束、双层还是其他聚集体。这一过程由体系自由能变化驱动,并不存在预先安排好的装配图。
以磷脂酰胆碱为例,两条疏水尾链通常使其更适合形成双分子层。双层内部隔开水相,头部与两侧水接触;边缘暴露会付出自由能代价,所以足够柔软的双层常闭合为囊泡。形成过程在适宜条件下可自发进行,但制备速度和最终大小仍可能受搅拌、超声或蛋白质影响。
聚集形态不是简单由“浓度从低到高”依次变成胶束、双层和囊泡。不同脂质有不同临界聚集浓度和曲率偏好;自由能也随温度、盐、尺寸和组成变化,不能给出适用于所有体系的固定区间。
膜结构的形成机制
脂质双层为细胞划定了可调节的边界。纯脂质在合适条件下可以自发形成双层或囊泡,真实细胞膜还含有大量蛋白质、糖链和不对称脂质,并持续受到细胞骨架、膜运输和代谢更新影响,因此比平衡状态的人工膜更复杂。
疏水尾部暴露在水中会扰动水的氢键网络并增加界面自由能。尾部聚集可减少非极性表面积与水接触,同时尾链堆积也带来范德华作用和构象熵变化。膜是否形成取决于这些贡献的总和,不能只用“周围水熵减”一项解释。
多数生物膜的疏水核心厚度为数纳米,但数值会随脂肪酸链长、不饱和度、胆固醇和温度改变。跨膜蛋白的疏水区通常与局部膜厚大致匹配;若不匹配,膜和蛋白都可能变形或重新聚集,这种“疏水失配”本身也会调节功能。
脂质组成的多样性
生物膜并非单一脂质的简单聚集,而是多种脂质分子的复杂混合物。不同脂质的混合比例决定了膜的物理性质和生物功能。磷脂酰胆碱提供膜结构的主要骨架,磷脂酰丝氨酸赋予膜内侧负电荷,胆固醇调节膜的流动性,鞘脂参与信号传导。
膳食脂质可经过消化、吸收和代谢间接影响组织脂质组成,但摄入某种脂肪酸并不会原样、均匀地写入所有细胞膜。去饱和、延长、氧化与重新酯化会重塑脂肪酸,细胞还通过合成和回收维持膜稳态。评价饮食与健康的关系应看整体代谢和临床证据。
膜的流动性与相变
温度对膜性质的调节
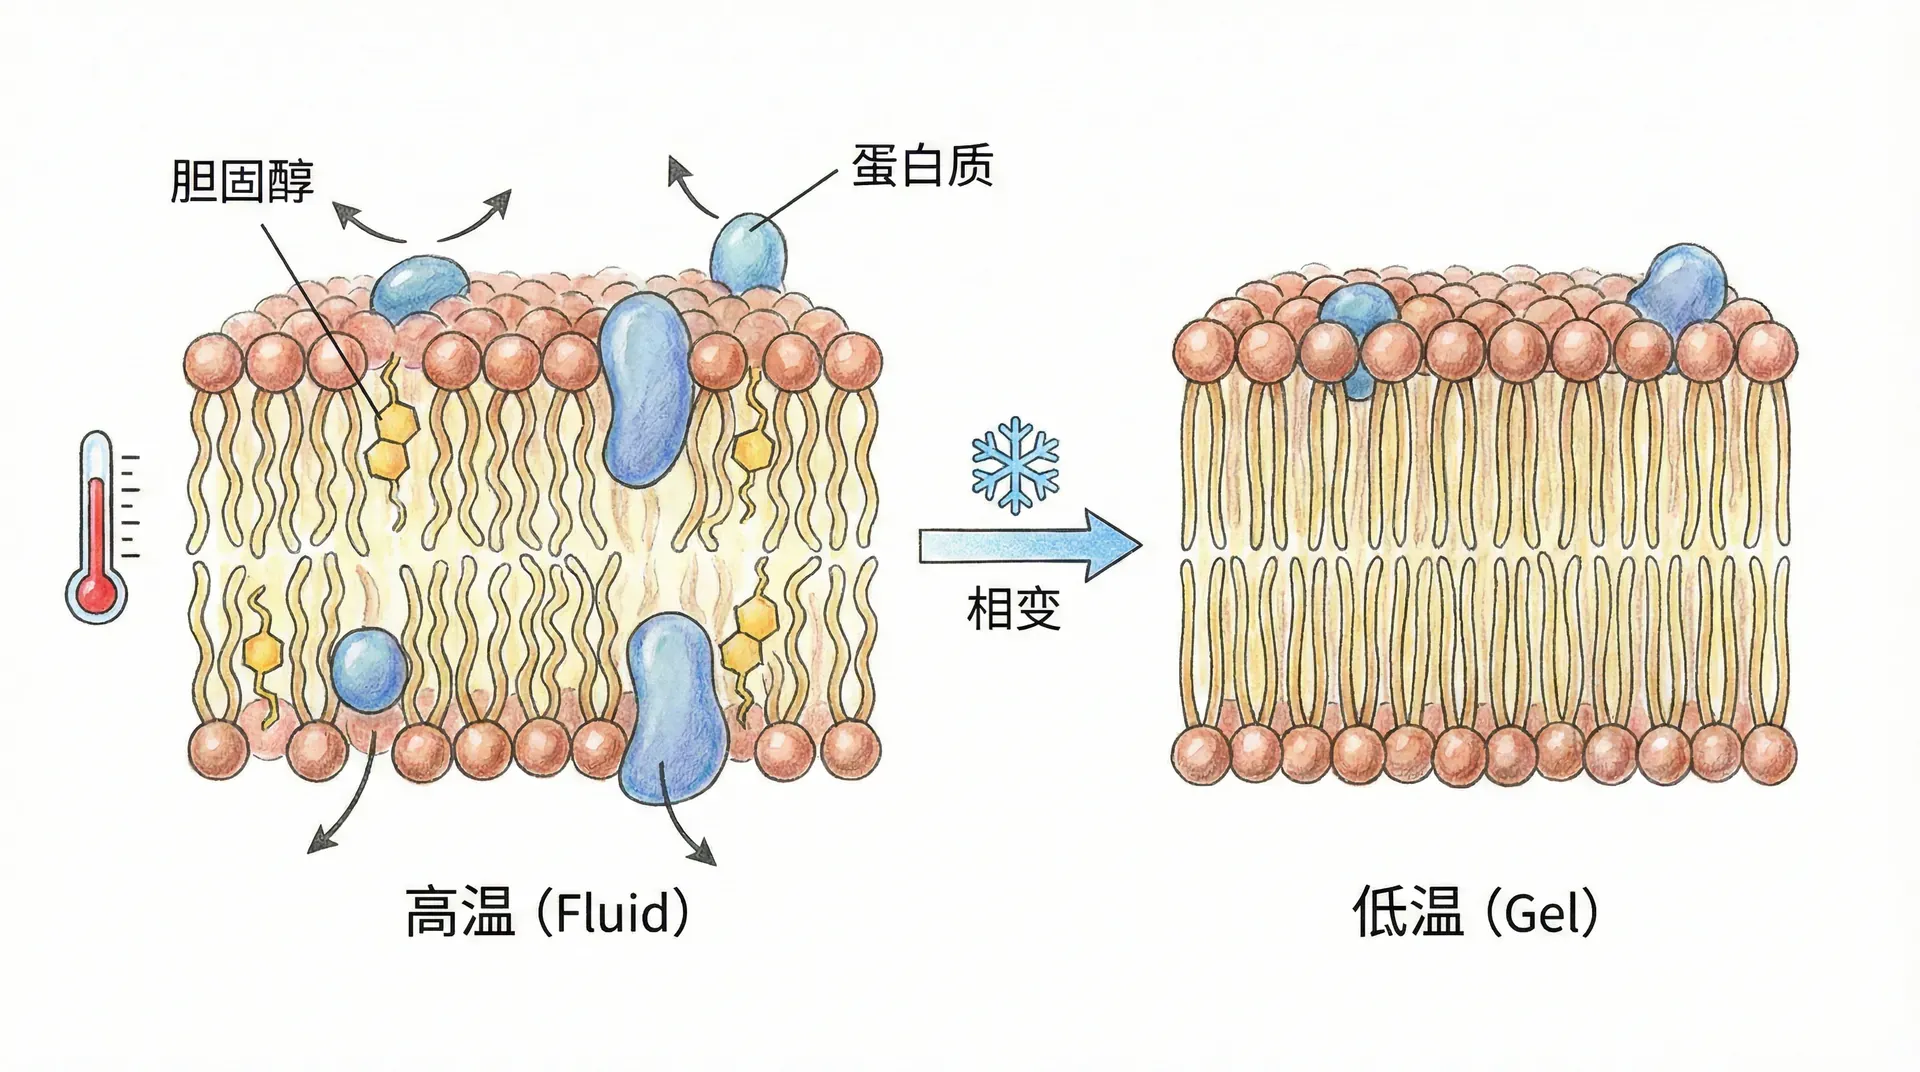
膜流动性随温度和组成改变。生理状态下,许多膜处于具有横向流动性的液态有序或液态无序状态,使脂质和膜蛋白能移动、碰撞并转换构象;若膜过度凝聚或过度流动,通透性、运输和信号功能都可能受损。
降温会减少脂肪酸链的构象运动,并可能促使膜从液态转入较有序的凝胶态。转变通常覆盖一个温区,混合脂质膜更不会像纯水那样只有单一凝固点。链长、双键位置、头基和胆固醇都会改变相行为。
许多微生物和变温动物会在温度变化后调整脂肪酸不饱和度、链长或脂质类别,以维持可用的膜流动性,这称为稳黏适应。恒温动物也调节脂质组成,但不同组织的策略并不相同,不能用“寒冷地区动物必然更多不饱和脂肪酸”概括所有物种。
胆固醇的调节作用
胆固醇在调节膜流动性方面发挥着独特作用。这种分子具有刚性的固醇环结构和柔性的烷基链,使其能够同时影响膜的有序性和流动性。其调节作用的具体表现如下:
胆固醇插入磷脂之间,可限制高温下尾链过度运动,也可妨碍低温下过度规则堆积,从而拓宽膜保持适当流动性的温区。不同细胞器和膜叶的胆固醇比例差异很大,30%—50%只适用于部分动物质膜的近似范围,不能称为普遍的最佳比例。
家族性高胆固醇血症的主要问题是低密度脂蛋白受体通路缺陷等因素导致血液LDL胆固醇长期升高,从而增加动脉粥样硬化风险。它不能简单解释为所有细胞膜因胆固醇过多而变硬;血浆脂蛋白代谢与局部膜胆固醇稳态需要分别分析。
膜微结构域的形成
细胞膜并非完全均匀。一些胆固醇、鞘脂和特定蛋白可形成短暂、纳米尺度的有序集合,常用“脂筏”描述。它们的大小、寿命和观察方法仍在研究中,因此更合适的理解是动态组织倾向,而不是膜上固定不动的小岛。
膜微区可以提高某些受体和信号分子相遇的机会,也可能参与内吞、膜弯曲和病原体进入。是否依赖脂筏必须通过成像、扰动和功能实验判断;仅凭某蛋白与胆固醇丰富的膜组分共分离,不能证明细胞内存在稳定功能区。
血液流动取决于心脏泵血、血管张力、血细胞性质和血浆黏度等因素,不能由细胞膜流动性或膜微区直接替代解释。膜流动性讨论的是纳米尺度脂质与蛋白的运动,血流则是组织与器官尺度的流体动力学问题,二者处在不同层级。
糖脂复合物与细胞识别
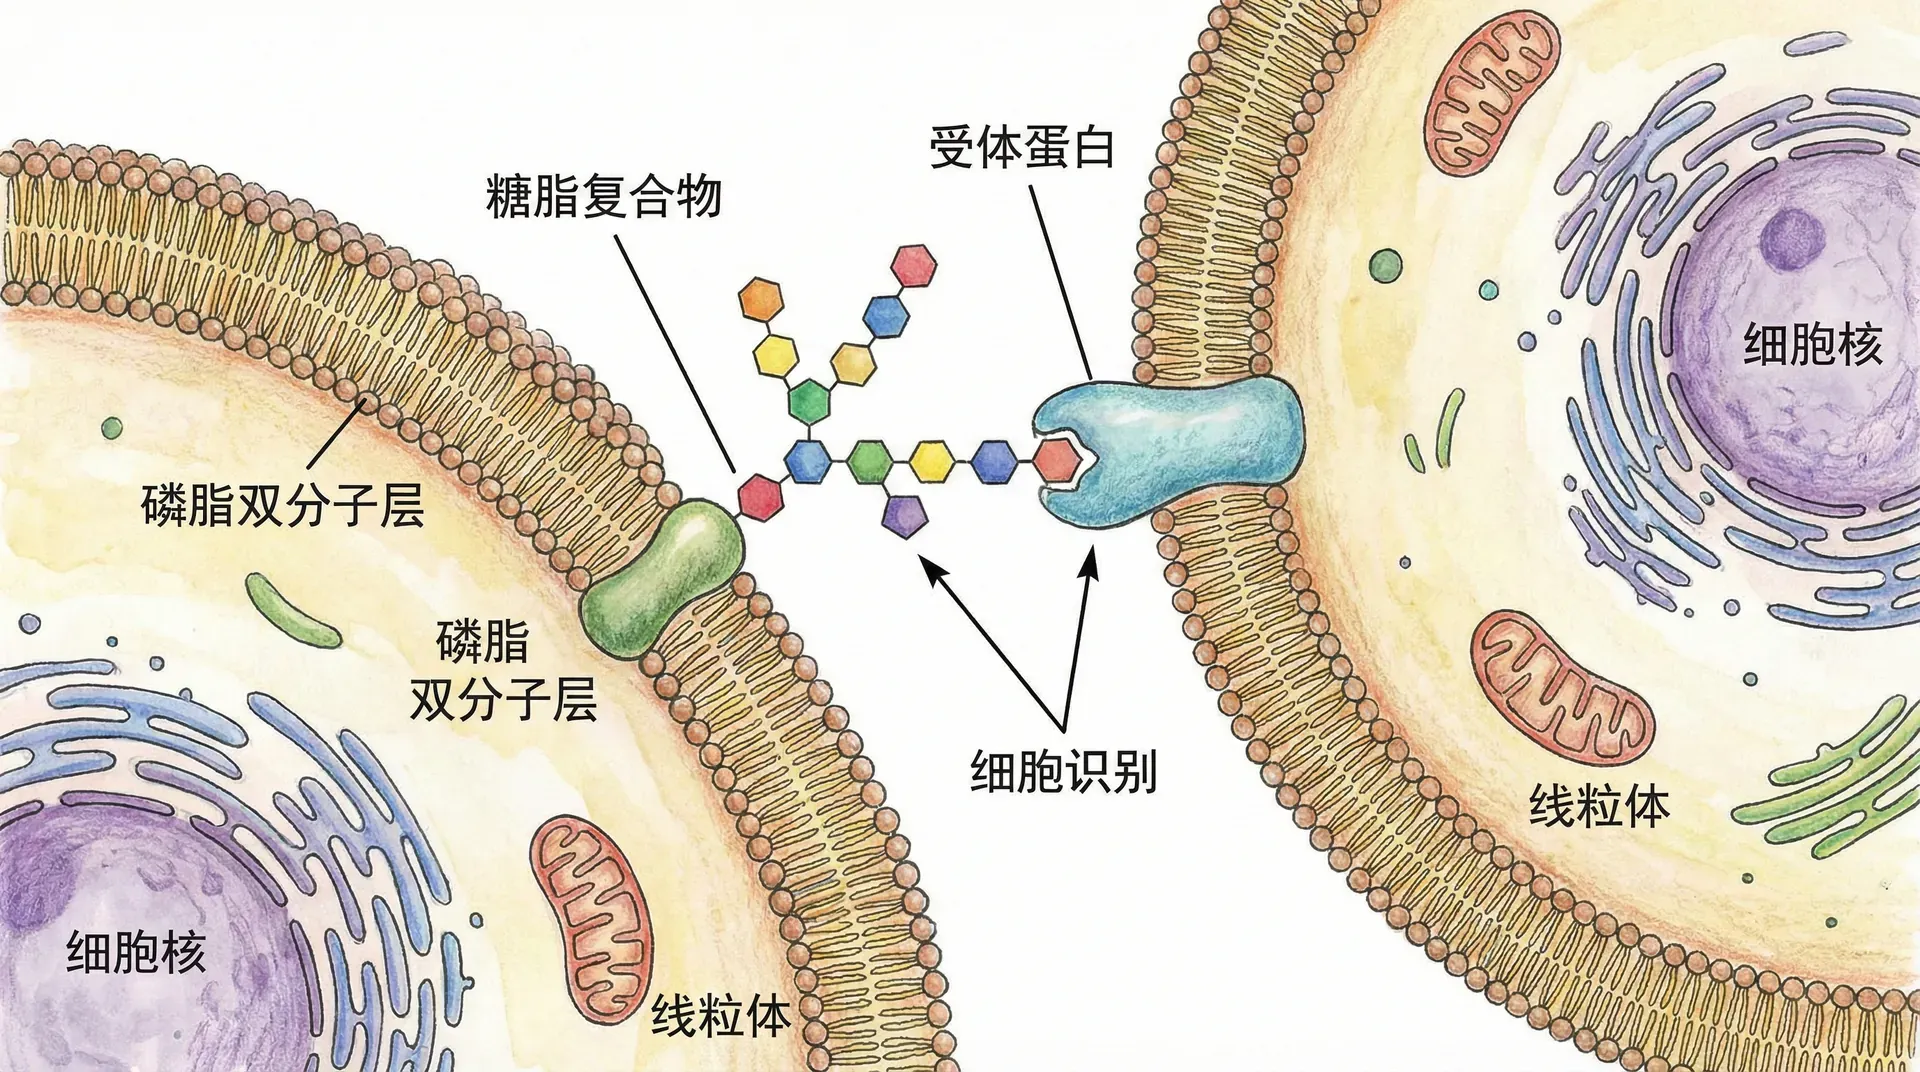
糖脂的结构特征
糖脂由脂质部分和一个或多个糖残基共价连接,许多糖鞘脂集中在动物质膜外层,在神经组织尤其丰富。糖链伸向细胞外,与糖蛋白和蛋白聚糖一起构成糖萼。糖脂种类取决于脂质骨架、糖的组成、连接顺序和修饰,因而具有很大的结构多样性。
糖萼会改变细胞表面的水合、机械和识别环境。糖脂究竟有多少种取决于分类和检测深度,不宜用固定的“超过200种”概括。ABO抗原既可出现在糖脂上,也可出现在糖蛋白上,红细胞血型由末端糖结构和相关酶决定。
不同组织表达不同的糖基转移酶,因此糖脂谱具有组织差异。神经节苷脂可影响神经元膜组织与受体活动,其他组织的糖链也参与细胞黏附和清除。糖链与水和离子形成水合层,但对膜蛋白的影响要落到具体邻近关系与受体机制,不能一概而论。
细胞识别的分子机制
凝集素是一类识别特定糖结构的蛋白,其亲和力常较弱,却能通过多价结合获得较强的总体黏附。选择性由糖残基、连接方式、空间展示和受体密度共同决定。肝细胞的去唾液酸糖蛋白受体会识别血液中暴露的半乳糖末端并促进清除,这是比笼统的“肝细胞与内皮配对归巢”更清楚的机制实例。
糖脂—凝集素分子互作不仅仅局限于细胞间通讯,在发育和免疫过程中极具调节价值。例如:
- 发育与组织形成: 糖链会调节细胞黏附、受体信号和迁移,但不同组织依赖的糖结构和识别蛋白各不相同。
- 免疫与炎症: 选择素识别特定糖基配体,帮助白细胞在血管内皮上滚动并进入组织;肿瘤相关糖链也可能改变免疫识别,但不是所有变化都意味着免疫逃逸。
病原体常利用宿主糖链作为附着因子。流感病毒血凝素识别带唾液酸的糖链,其偏好会影响宿主与组织嗜性;幽门螺杆菌的黏附素也可识别胃上皮糖结构。阻断这类结合是可能的干预策略,但糖链广泛存在于正常组织,药物需要兼顾选择性和耐药演化。
一些肿瘤会异常表达唾液酸化或截短糖抗原,这些变化可能与侵袭、转移或免疫调节相关。将其用于液体活检、成像或靶向治疗时,关键是确认正常组织表达、肿瘤异质性和临床获益;“肿瘤相关”并不自动等于肿瘤专有或理想靶点。
糖脂与凝集素之间的多价识别,使细胞表面能够把许多较弱接触整合为稳定而可逆的黏附。这样的机制连接了分子尺度与细胞行为,也说明研究糖链时必须同时考虑结构、密度和空间排列。
总结
糖类与脂质的功能来自结构差异和环境条件。单糖的立体构型决定酶识别,多糖的键型与分支影响材料性质和动员速度,脂质的几何与混合组成塑造膜相态,糖脂和糖蛋白则把结构信息展示在细胞表面。
判断糖或脂质的作用时,应先问清分子种类、所在区室和测量条件。相同名称下可能包含许多结构变体,而同一分子进入不同组织后也可能承担不同任务。
糖组学和脂质组学可以同时测量大量分子种类,但样品处理、离子化效率和结构异构体会影响结果。把组学关联转化为机制,需要用酶学、成像、遗传扰动和功能实验验证。
这些知识也用于脂质纳米颗粒、人工膜和糖基化生物药开发。材料能否稳定递送或发挥疗效,取决于组成、粒径、表面化学、体内分布和免疫反应,基础结构原理需要与严格实验评价相结合。