从基因到RNA和蛋白质
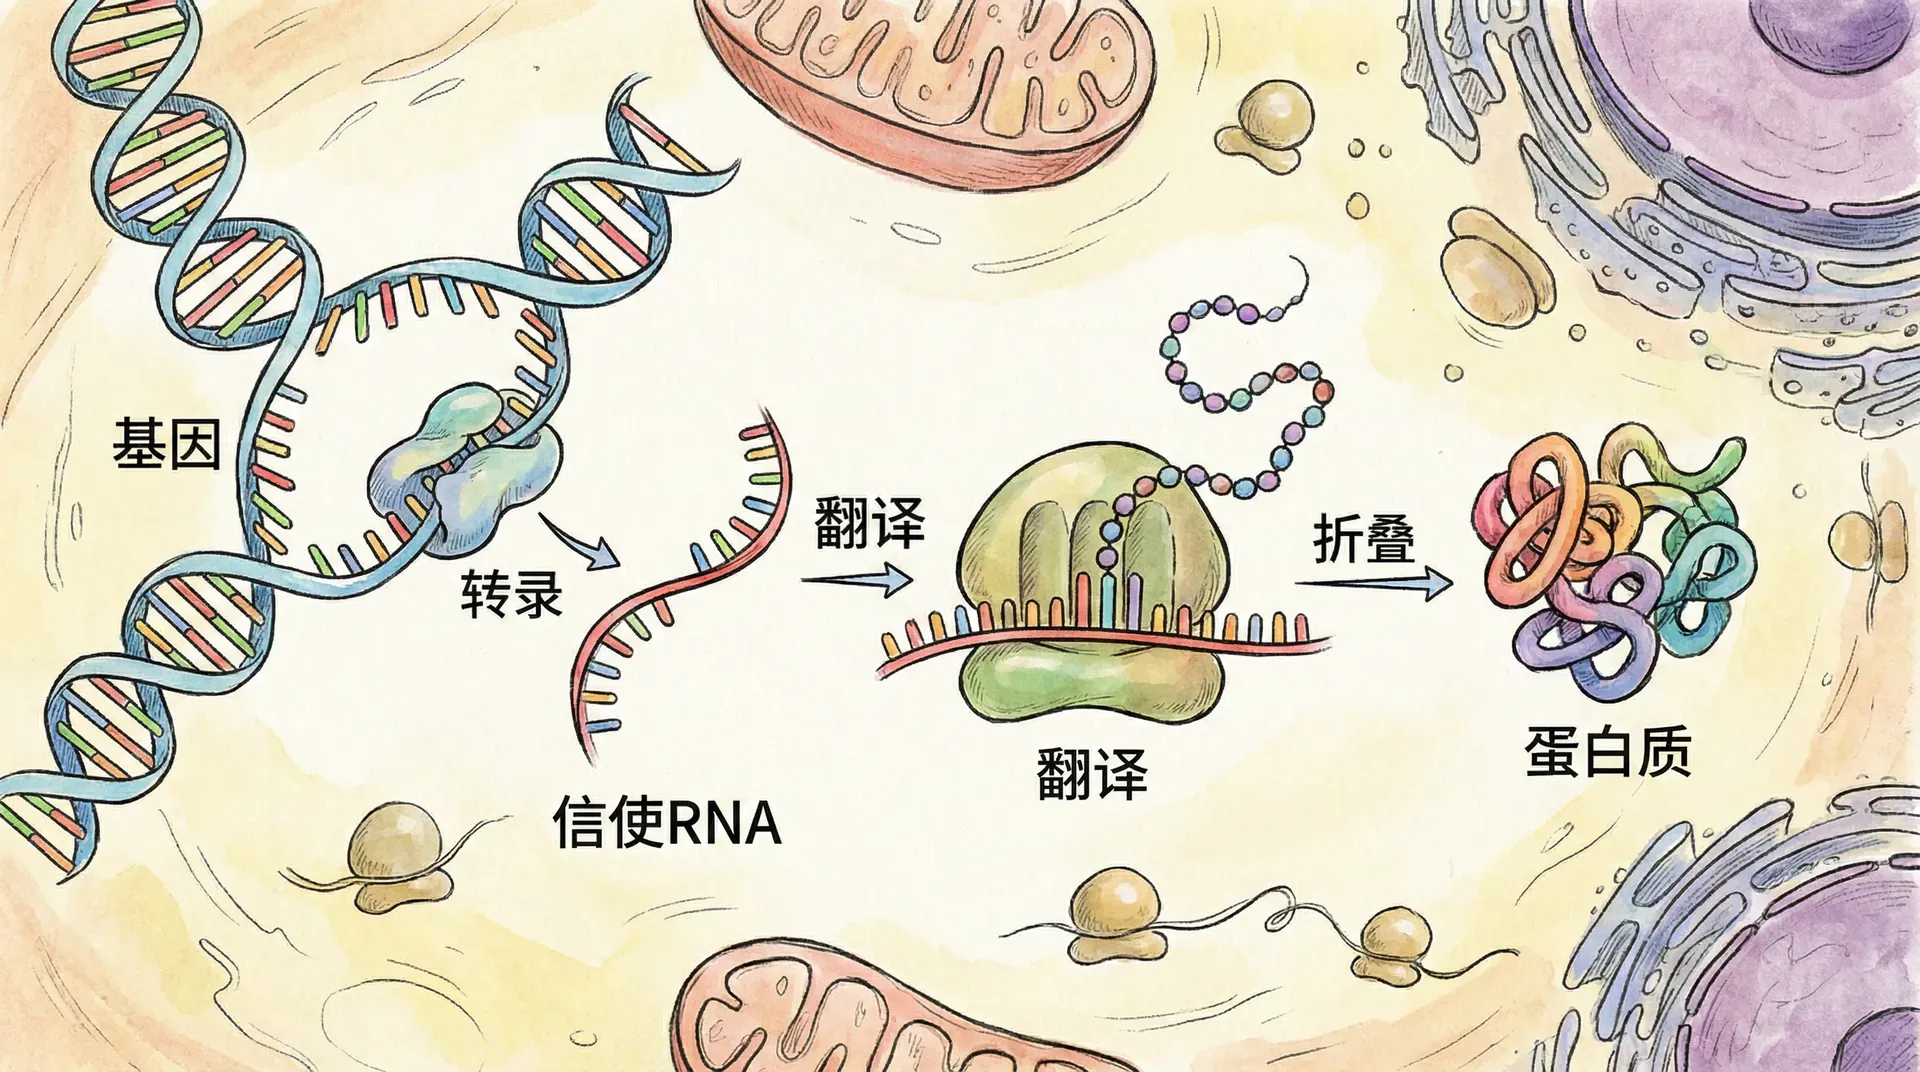
遗传信息能够被保存、复制和表达,是细胞延续与产生差异的基础。在多数细胞生物中,DNA保存较长期的信息,RNA承担信息传递、调控或催化等任务,蛋白质则完成大量结构与功能活动。DNA复制、DNA转录为RNA、RNA翻译为蛋白质构成中心法则的主体,但RNA也可以被逆转录为DNA,RNA本身也可能是最终的功能产物。
分子生物学关注的不只是信息从哪里流向哪里,还要解释每一步如何受到序列、结构、能量和细胞环境的共同限制。同一段DNA在不同细胞中可能有不同的开放程度、转录水平和RNA加工方式,由此产生不同的蛋白质组合与细胞状态。这样的层层调控,使有限的遗传信息能够支持丰富而持续变化的生命活动。
分子间相互作用的能量学基础
生物大分子的形状、稳定性和识别能力,来自共价键与多种非共价作用的共同结果。单个非共价作用通常较弱,却能在许多原子同时接触时形成可观的总效应;它们又容易随距离、方向、溶剂和温度改变,因此很适合支撑需要稳定而又能够转换状态的生命过程。
范德华力
范德华力广泛存在于原子和分子之间,包括色散作用、诱导偶极作用和永久偶极之间的取向作用。它对距离十分敏感:原子靠近到合适范围时产生吸引,过近则因电子云重叠而强烈排斥。蛋白质内部的紧密堆积、核酸碱基的叠放以及脂质尾部的排列,都能积累大量这样的微弱作用。
范德华作用可按偶极来源作三类理解:
①色散作用来自电子瞬时分布不均所产生的瞬时偶极,非极性原子之间也存在;
②诱导作用发生在永久偶极使邻近原子的电子云发生极化时;
③取向作用发生在具有永久偶极的分子之间,平均效果还会受到热运动影响。
三类作用并不总能在复杂分子中完全分开,但这一分类有助于理解它们的物理来源。
可溶性蛋白折叠后,许多疏水侧链埋入内部并紧密堆积。疏水效应促使这些基团减少与水的接触,范德华作用则帮助内部原子在合适距离上贴合。两者连同氢键、静电作用和主链构象约束,一起决定蛋白质的稳定性;不能把疏水核心简单归因于其中某一种力。
蚕丝的力学性质也说明了微弱作用累积的重要性。丝蛋白中规则排列的β片层、链间氢键和紧密堆积共同承担拉伸负荷,较无序的区域则提供一定延展性。宏观上的韧性来自多层结构协作,并非某一种分子间作用单独造成。
离子相互作用
离子相互作用属于静电作用,既包括异号电荷之间的吸引,也包括同号电荷之间的排斥。真空中的点电荷可用库仑定律描述,但细胞内的实际强度还取决于水的介电性质、盐离子的屏蔽、带电基团是否暴露以及它们所处的局部环境,因此不能笼统地说它总比范德华作用强。
水和溶液中的可移动离子会削弱带电基团之间的长程作用;在蛋白质内部或较低介电环境中,静电作用可能更显著。盐桥可以稳定某些构象,也可能在形成时付出较大的去溶剂化代价。血红素铁与组氨酸之间主要是配位键,它与普通正负电荷吸引不同,这一区分有助于准确判断活性中心的化学性质。
氢键
氢键常由与氧或氮等电负性原子相连的氢作为供体,并由另一个带孤对电子的原子作为受体。氢键具有明显的距离和方向偏好,因此能约束大分子的局部几何形状;但分子识别的专一性通常还需要形状互补、静电作用、疏水效应和溶剂变化共同参与。
判断一个可能的氢键时,可以依次检查三个条件:
-
是否存在氢键供体,例如—OH或—NH;
-
是否存在带孤对电子的受体,例如羰基氧或某些氮原子;
-
供体、氢和受体之间的距离及夹角是否处在有利范围。
液态水中的氢键网络不断断裂和重组,一个水分子在给定时刻能参与多少个氢键取决于温度、压力和判定标准。正是这种动态网络,而非一个固定的平均数,帮助解释水较高的比热、表面张力以及对极性物质的溶解能力。
DNA中A与T通常形成两个氢键,G与C通常形成三个氢键。配对几何有助于聚合酶选择正确核苷酸,但复制保真度还来自活性位点的形状筛选、校对外切酶以及复制后的修复系统。双螺旋的稳定性也同时依赖碱基堆积、离子环境和溶剂效应。
药物与靶标结合时,氢键可以帮助确定结合姿态,但形成新氢键往往还要补偿药物和蛋白质原先与水形成的相互作用。青蒿素抗疟作用的关键与其过氧桥被含铁血红素等因素活化并形成反应性物种有关,不能概括为依靠多重氢键准确识别血红素。
范德华作用、静电作用和氢键共同参与结构稳定与分子识别。它们的实际贡献依赖具体环境,而且常伴随疏水效应、构象变化和去溶剂化。比较这些作用时,最有意义的不是给它们排出固定强弱顺序,而是分析它们在特定结构和条件下如何共同改变自由能。
核苷酸的化学组成与DNA双螺旋结构
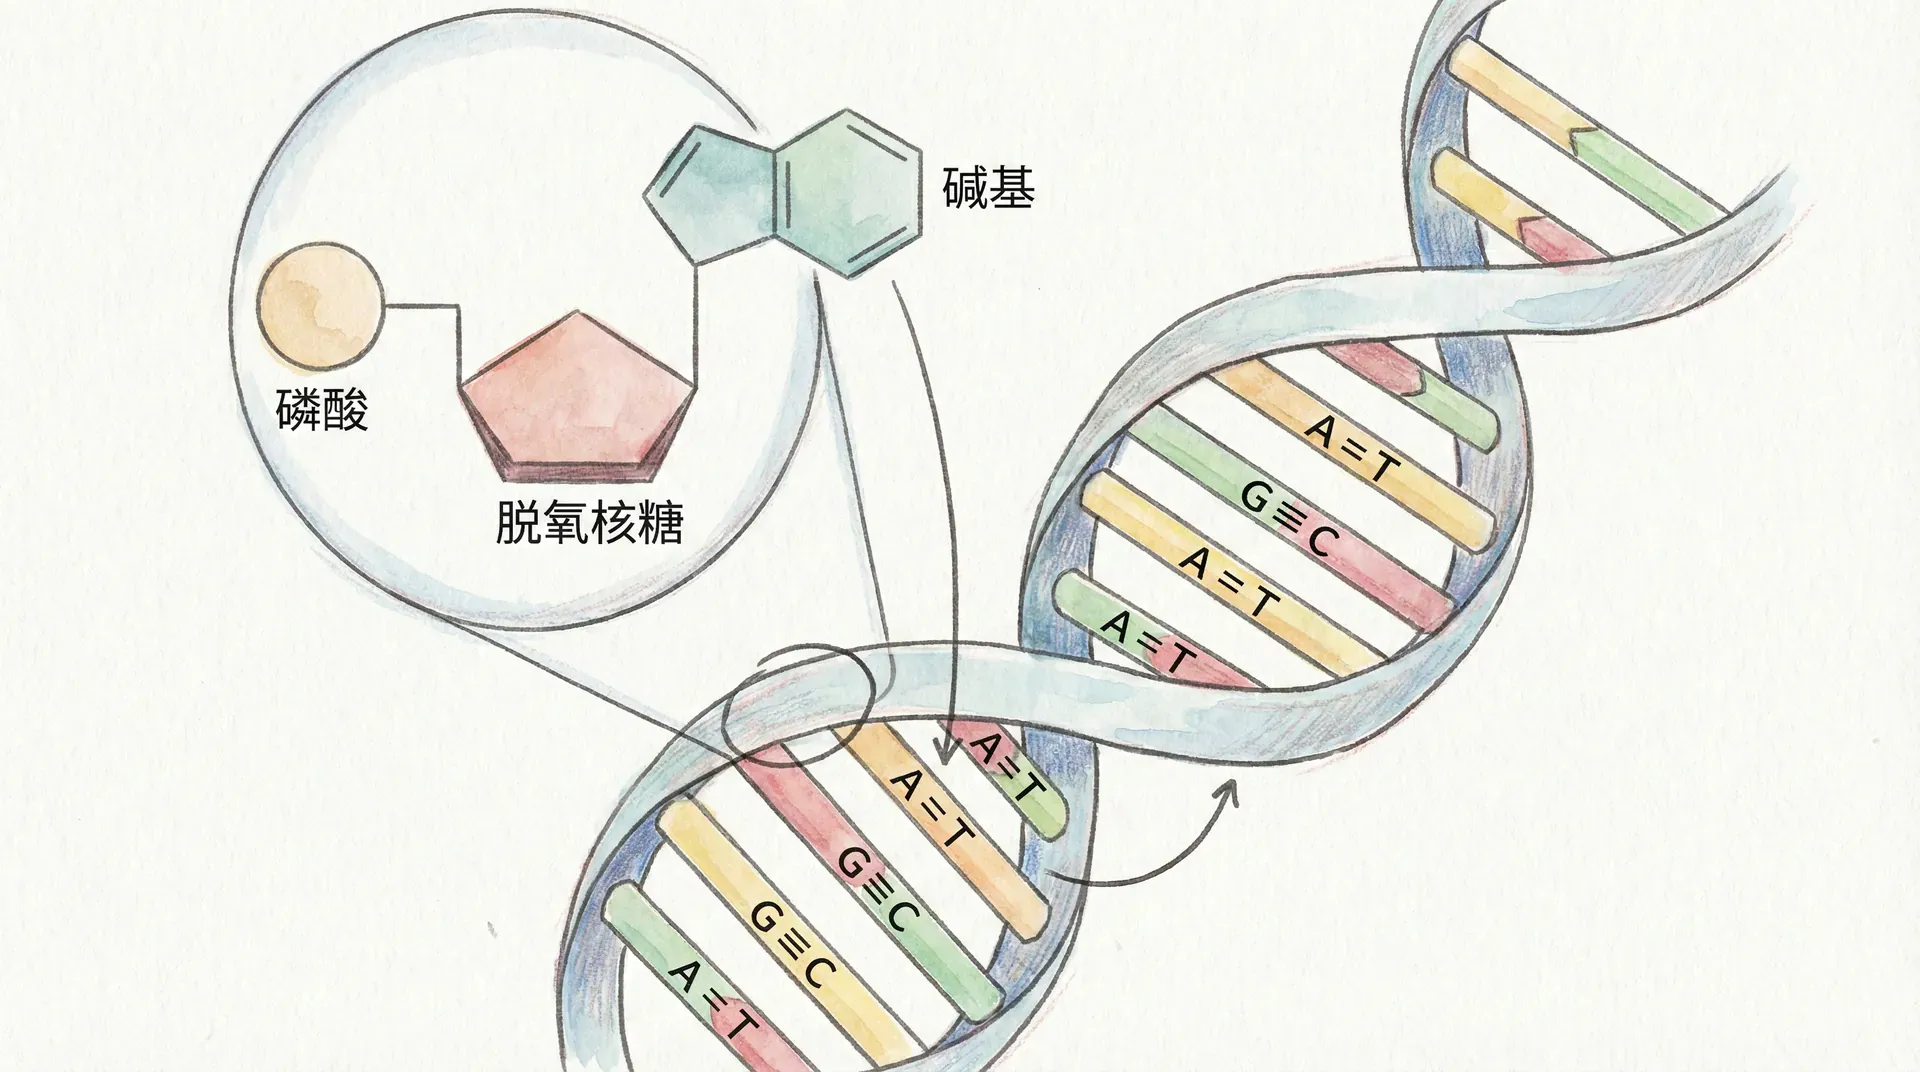
DNA需要在化学稳定性与可访问性之间取得平衡。糖—磷酸骨架适合长期保存序列,碱基位于内部并通过配对和堆积形成双螺旋;复制、转录和修复时,相关酶又能局部打开或重塑这套结构。稳定并不意味着静止,而是指在细胞条件下维持结构所需的自由能较低。
核苷酸的基本构成
DNA核苷酸由磷酸基团、2-脱氧核糖和含氮碱基组成。碱基与糖连接形成核苷,核苷再带上一个或多个磷酸基团才称为核苷酸。聚合进DNA链后,各单元通过3′—5′磷酸二酯键连接,并形成具有方向性的骨架。
碱基决定序列差异,糖—磷酸骨架使这些序列能够形成连续聚合物。有限的四种碱基经不同排列产生大量序列,而每段序列能否被读取,还会受到双螺旋构象、染色质状态和结合蛋白的影响。结构与序列要放在一起理解。
DNA聚合酶催化新核苷酸加入正在延长的3′端,形成磷酸二酯键。骨架既有一定柔性,又因持续带负电而与水、阳离子及蛋白质相互作用。这些性质使DNA能够弯曲、缠绕和被包装,也使复制和转录需要专门的酶控制局部结构。
DNA双螺旋结构的发现与特点
1953年,沃森和克里克提出DNA双螺旋模型。模型建立在查加夫的碱基比例规律以及富兰克林、威尔金斯等人的X射线衍射数据基础上。互补配对立即给出了可检验的复制机制,因此这一结构成为连接遗传学与化学的重要框架。
DNA双螺旋就像一架精美的螺旋楼梯:两条反向平行的脱氧核糖-磷酸骨架彼此缠绕,形成“扶手”;碱基通过互补配对,像台阶一样横跨于两条骨架之间。
DNA双螺旋具有几项关键特征:
-
两条链呈反向平行(即一条由5'→3',另一条由3'→5');
-
碱基在常见的Watson—Crick配对中以A—T和G—C相配,这为模板复制提供化学基础;
-
分子外部形成“大沟”和“小沟”,为蛋白质等生物分子的识别和调控提供了结构基础;
-
典型B-DNA平均约每10.5个碱基对转一圈,具体参数会随序列和环境略有变化。
DNA结构稳定性的分子基础
双螺旋的稳定来自碱基堆积、氢键、溶剂和离子条件的共同作用。相邻碱基的芳香表面彼此堆积,并减少疏水表面与水的接触,通常是重要的稳定贡献;互补碱基之间的氢键则帮助限定配对几何。GC比例会影响熔解温度,但熔解行为还取决于碱基排列、盐浓度和分子长度。
嗜热生物并不普遍依靠更高的全基因组GC含量保护DNA。它们还会使用DNA结合蛋白、拓扑调节、溶质环境和高效修复等多种策略。比较不同物种时,需要区分相关性与因果关系,也不能把DNA的GC比例直接当作耐热酶稳定性的解释。
DNA的超螺旋与染色质结构
细胞中的DNA通常处于受约束和被包装的状态。细菌染色体形成核质并具有受调控的超螺旋;真核细胞中,DNA绕组蛋白形成核小体,核小体再组成动态染色质。人二倍体细胞的DNA若完全伸展可达数米,而细胞核只有微米尺度,包装既解决空间问题,也调节不同区域被复制、转录和修复机器接近的机会。
氨基酸的分类与蛋白质折叠
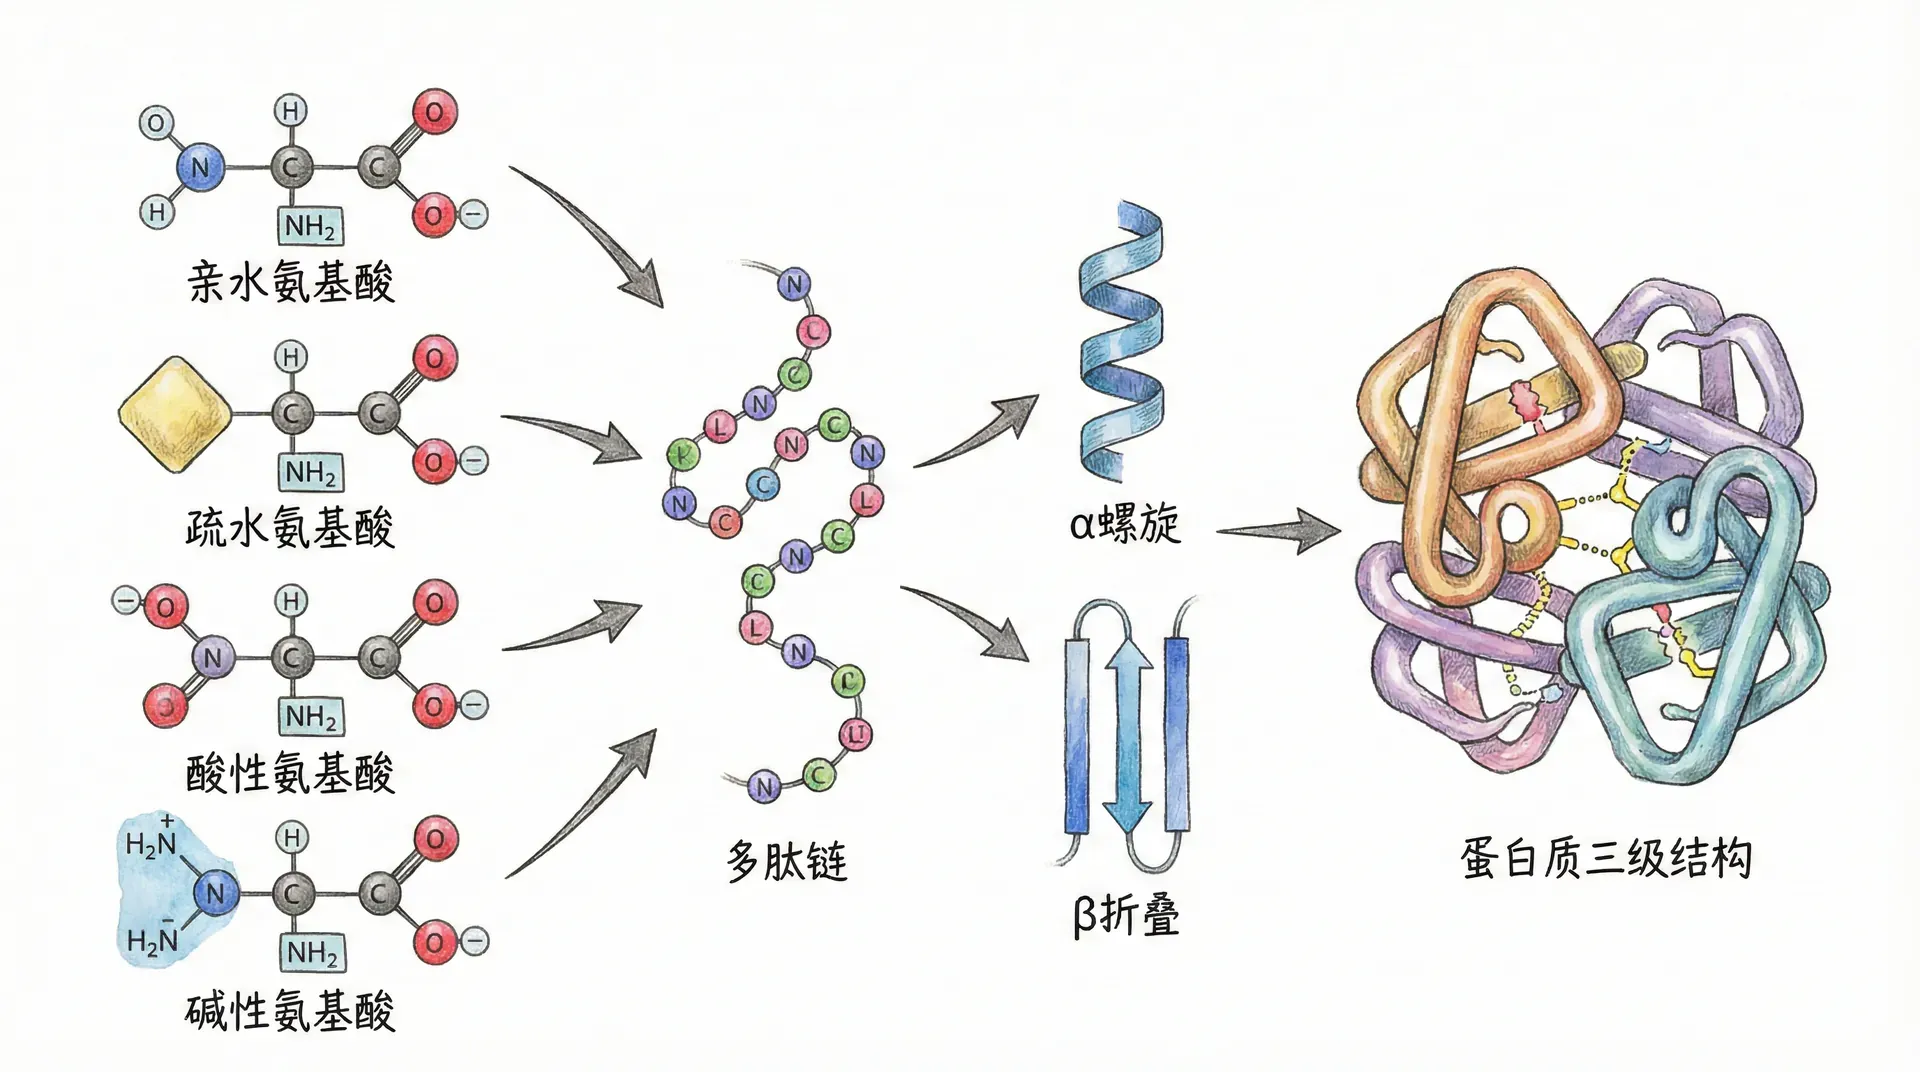
蛋白质由氨基酸序列构成,序列通过折叠形成具有不同动态范围的结构。酶、受体、抗体、细胞骨架和运输蛋白都属于这一分子家族。多数蛋白使用20种标准氨基酸作为基本单元,少数生物还会在特定条件下把硒代半胱氨酸或吡咯赖氨酸纳入翻译产物。
氨基酸的基本结构与分类
标准氨基酸共享α碳骨架,α碳连接氨基、羧基、氢和侧链。生理pH附近,游离氨基酸通常以兼具正负电荷的两性离子形式存在;进入多肽后,主链基团形成肽键,侧链的大小、极性、电荷和反应性成为影响折叠与功能的主要差异。
依据侧链的化学特性,氨基酸通常分为以下几类:
这些分类是理解趋势的起点,不是固定位置表。带电残基也可能埋在蛋白内部并构成活性位点,疏水残基也可能出现在与膜或其他蛋白接触的表面。判断一个残基的作用,需要结合其三维邻域、质子化状态和蛋白所处的溶液条件。
疏水效应与蛋白质折叠的驱动力
水溶性蛋白折叠时,许多非极性侧链倾向于减少暴露于水的面积,这就是疏水效应的重要表现。它有助于形成紧密核心,但最终结构还要满足主链氢键、侧链堆积、静电作用和构象熵之间的平衡。膜蛋白则把疏水表面朝向脂质尾部,说明所谓“内部”或“表面”取决于周围介质。
疏水效应与水和非极性表面接触时的自由能变化有关,常包含显著的溶剂熵贡献,但不能在所有温度和体系中都归结为单一的熵效应。氨基酸序列中疏水残基的分布会限制可形成的折叠方式,折叠路径和稳定性仍由多项自由能贡献共同决定。
疏水基团聚集通常能减少暴露在水中的非极性表面积,并释放部分受约束的界面水。这个过程是否有利,要看溶剂熵、链构象熵、焓变和温度等因素的合计结果。
豆腐凝固提供了更贴近日常的例子:加热会改变大豆蛋白原有构象,盐卤中的离子或石膏中的钙离子会削弱排斥并促进蛋白相互连接,随后形成保水的凝胶网络。疏水作用参与其中,但凝胶形成还包括静电屏蔽、二硫键交换和其他分子作用。
二硫键与蛋白质稳定性
半胱氨酸侧链的巯基在适当的氧化还原环境中可形成共价二硫键。分泌蛋白和细胞表面蛋白所处环境较有利于二硫键形成;细胞质通常偏还原,稳定二硫键相对少见。二硫键能够限制多肽链的构象范围,但它对稳定性的贡献取决于连接位置和蛋白整体结构。
二硫键的作用环境对比如下
药物与多肽工程有时会引入二硫键或其他环化连接,以减少柔性、提高抗蛋白酶能力或稳定活性构象。不过,连接位置不当也可能妨碍折叠或降低活性,因此需要结合结构数据和实验测量,而不能把环化视为必然改善性能的通用办法。
脯氨酸的特殊作用
脯氨酸的侧链与主链氮原子成环,显著限制主链可取的二面角,同时缺少可作为供体的主链酰胺氢。它常出现在转角或无规则区,也可能造成α螺旋弯折;但脯氨酸并非在所有位置都会终止螺旋,其影响取决于所处的结构环境。
胶原三股螺旋富含甘氨酸、脯氨酸和羟脯氨酸。维生素C是脯氨酰羟化酶等酶维持催化活性所需的辅助因子,缺乏时羟化不足,胶原结构和组织强度都会受到影响,从而出现坏血病相关症状。维生素C参与的是酶促羟化过程,而不是直接作为羟脯氨酸的组成部分。
脯氨酸、二硫键和各种非共价作用展示了序列怎样限制构象,又怎样保留必要的动态性。蛋白质并非越刚硬越好:酶催化、受体激活和运输蛋白换向都需要结构在若干状态之间转换。稳定性与可动性的平衡,往往比单纯追求最低能量更能解释功能。
中心法则
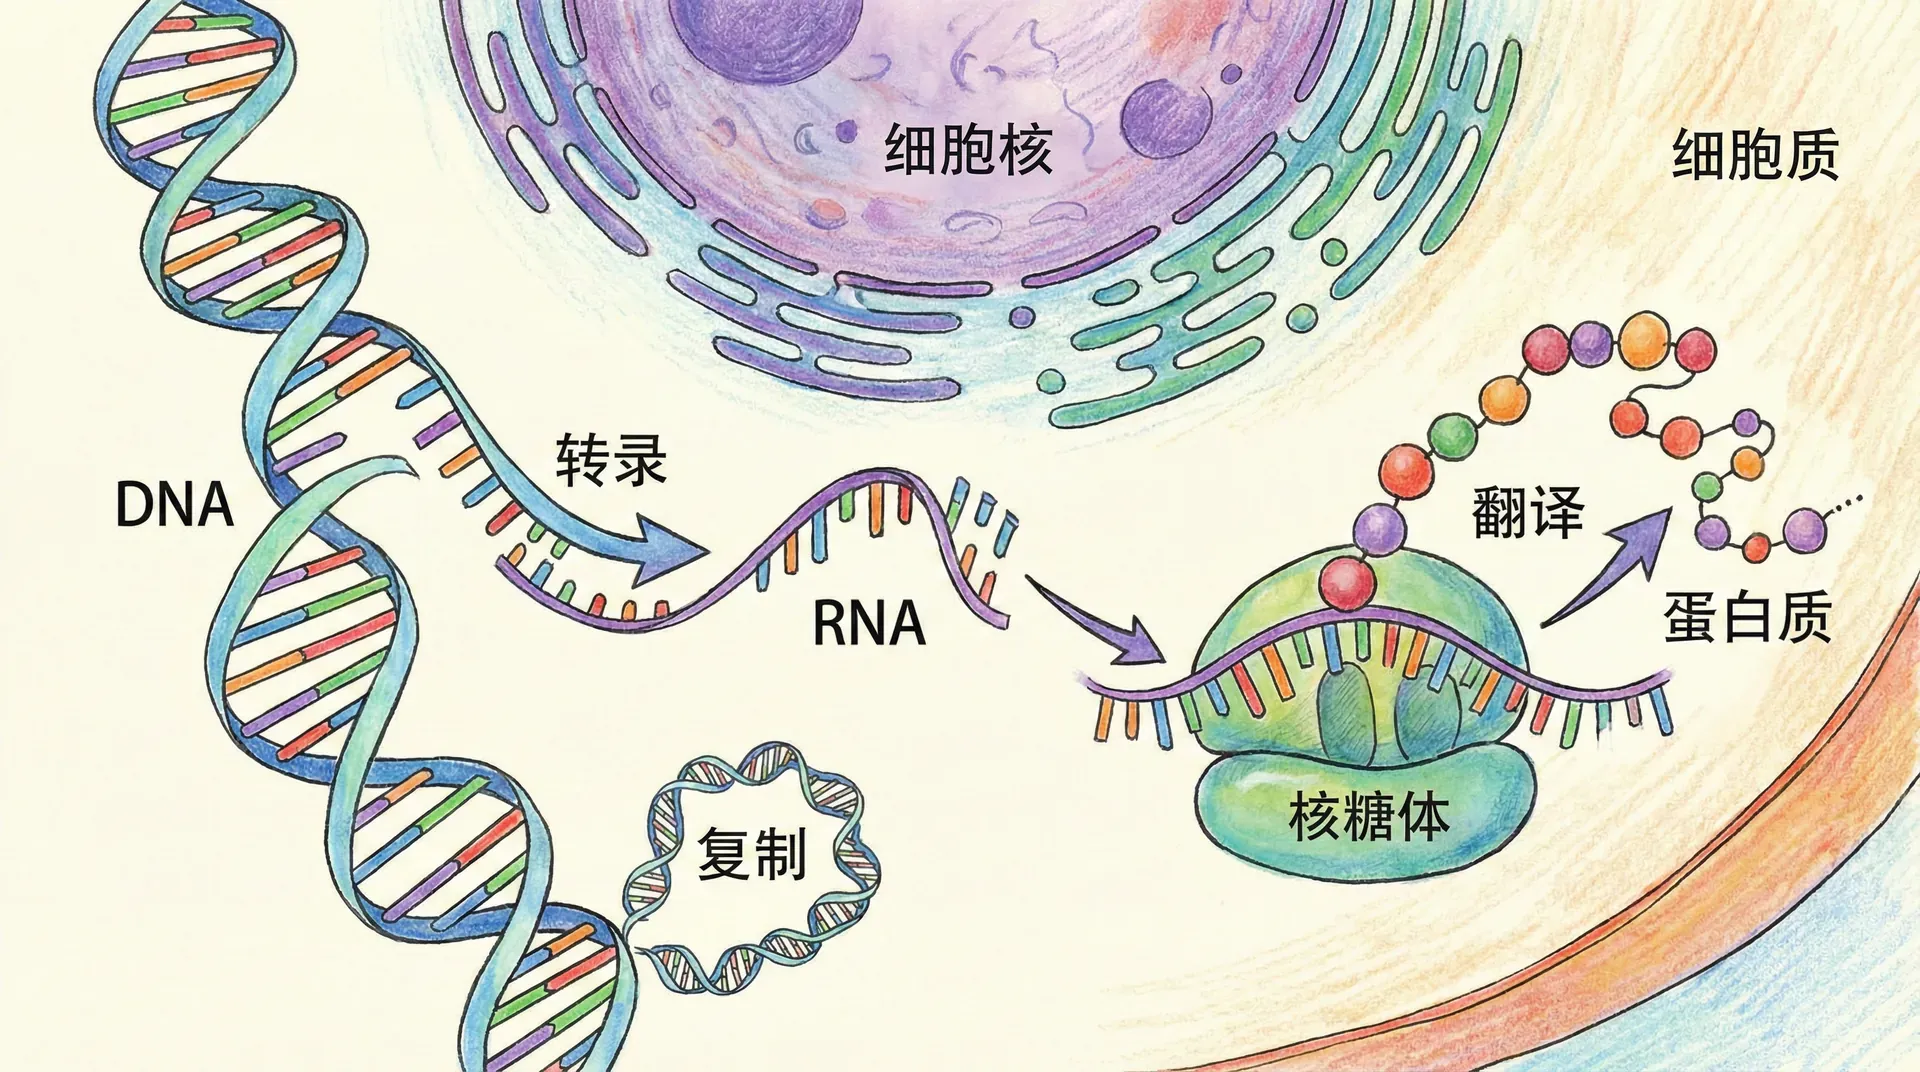
中心法则概括了遗传信息传递的主要关系:DNA可以复制,DNA序列可以转录为RNA,信使RNA可以翻译为蛋白质。逆转录病毒和逆转座元件还会把RNA信息写回DNA,某些RNA病毒能复制RNA。蛋白质不会作为模板把氨基酸序列传回核酸,这才是该框架强调的边界。
DNA复制
DNA复制在细胞周期或病毒生命周期的特定阶段发生,使遗传材料能够传给子细胞或后代。复制速度和最终错误率因生物、聚合酶及测量层级而异,不能用一个数字概括所有体系。其高保真来自核苷酸选择、聚合酶校对和复制后修复的连续把关。
复制遵循半保留原则:亲代双链分开后,每条旧链各自作为合成新互补链的模板。生成的两个双链分子各含一条旧链和一条新链,但它们并非绝对相同,因为复制错误、损伤和重组仍可能造成差异。
起始:起始蛋白识别复制起点,解旋酶打开双链,引物酶或相关酶系提供可延伸的3′端。
延伸:DNA聚合酶沿模板读取信息,并始终按5′→3′方向合成新链。细菌和真核细胞使用的聚合酶不同,因此不能把细菌DNA聚合酶III当作所有生物的共同核心酶。
校对:许多复制型聚合酶具有3′→5′外切酶活性,可移除刚加入的错误核苷酸;没有校对活性的聚合酶则依赖其他机制控制错误。
成熟与连接:滞后链上的RNA引物被移除并补成DNA,连接酶封闭相邻片段之间的缺口,使糖—磷酸骨架连续。
两条模板链方向相反,而DNA聚合酶只能按5′→3′方向延伸,因此领先链大体连续合成,滞后链以冈崎片段方式分段合成。这是链方向性带来的几何结果,并不是复制系统为了增加调控而保留的“缺陷”。
复制后的错配修复能识别一部分漏过校对的错误,其他修复通路则处理碱基损伤、断裂和交联等问题。修复系统在生物中高度保守,也具有物种和组织差异;研究它们既能解释突变如何累积,也能帮助理解遗传病、肿瘤发生和物种保护中的遗传风险。
转录
转录是RNA聚合酶以DNA的一条链为模板合成RNA的过程。哪些区域被转录、何时开始以及何时停止,都由启动子、调控序列、转录因子和染色质环境共同决定。产物可以是mRNA,也可以是rRNA、tRNA和多种调控性非编码RNA。
转录可分为三个阶段:
起始阶段:RNA聚合酶结合到特定启动子序列,解开局部DNA双链。原核生物和真核生物在此阶段的调控方式有显著不同,后者通常需要多个转录因子(TFs)协同作用,形成复杂的转录起始复合物,为精细基因表达提供可能。
延伸阶段:RNA聚合酶以模板链为蓝本,不需引物直接从头开始沿5'→3'方向合成RNA,将碱基信息一一转录。
终止阶段:聚合酶响应终止信号或相关因子而停止延伸,并释放RNA。RNA随后在哪里加工或发挥作用取决于细胞类型和RNA类别;不能把所有新生RNA都概括为直接进入细胞质。
许多真核前体mRNA会经历5′端加帽、剪接和3′端切割及多聚腺苷酸化,但也存在不采用典型加工方式的转录本。可变剪接还能让同一基因产生不同RNA和蛋白质形式,使表达调控不只取决于转录量。
细菌中转录与翻译可在同一细胞区室耦联进行,mRNA加工通常比真核mRNA少,但仍有RNA剪切、修饰和降解调控。真核细胞的转录主要发生在细胞核,翻译发生在细胞质或粗面内质网上,区室分隔为RNA质量控制和输出调节增加了环节。
翻译
翻译把mRNA密码子序列转换为多肽的氨基酸顺序。核糖体负责读取mRNA并催化肽键形成,tRNA把特定氨基酸带到相应密码子位置,氨酰-tRNA合成酶和多种翻译因子则共同保证装载、选择和移位的效率与准确性。
核糖体由大、小亚基组成,核心同时包含rRNA和蛋白质。小亚基承担解码,大亚基的rRNA构成肽酰转移酶中心,说明RNA在催化中仍保留关键角色。不同生物的核糖体组成有所差异,但基本工作逻辑相似。
翻译过程也分为起始、延伸、终止三个阶段:
起始:小亚基与mRNA、起始tRNA和起始因子组装,在适当的起始位点定位。AUG最常见,但细菌和少数特殊体系也能使用其他起始密码子。
延伸:氨酰-tRNA进入A位,正确配对后形成肽键,核糖体沿mRNA移动一个密码子。细菌的首个氨基酸通常是甲酰甲硫氨酸,真核细胞通常是甲硫氨酸。
终止:UAA、UAG或UGA进入A位时,释放因子促使肽酰-tRNA水解。新生多肽随后可能折叠、被切割或接受化学修饰。
酱油、腐乳等发酵过程中,微生物表达蛋白酶、淀粉酶和转运蛋白,把原料中的大分子转化为更小的营养物和风味前体。工业菌株改良会调节基因表达,但产量还受底物、氧、温度、pH和代谢负担影响。这个例子把信息表达与可测量的代谢结果连接起来。
遗传密码的普遍性与进化保守性
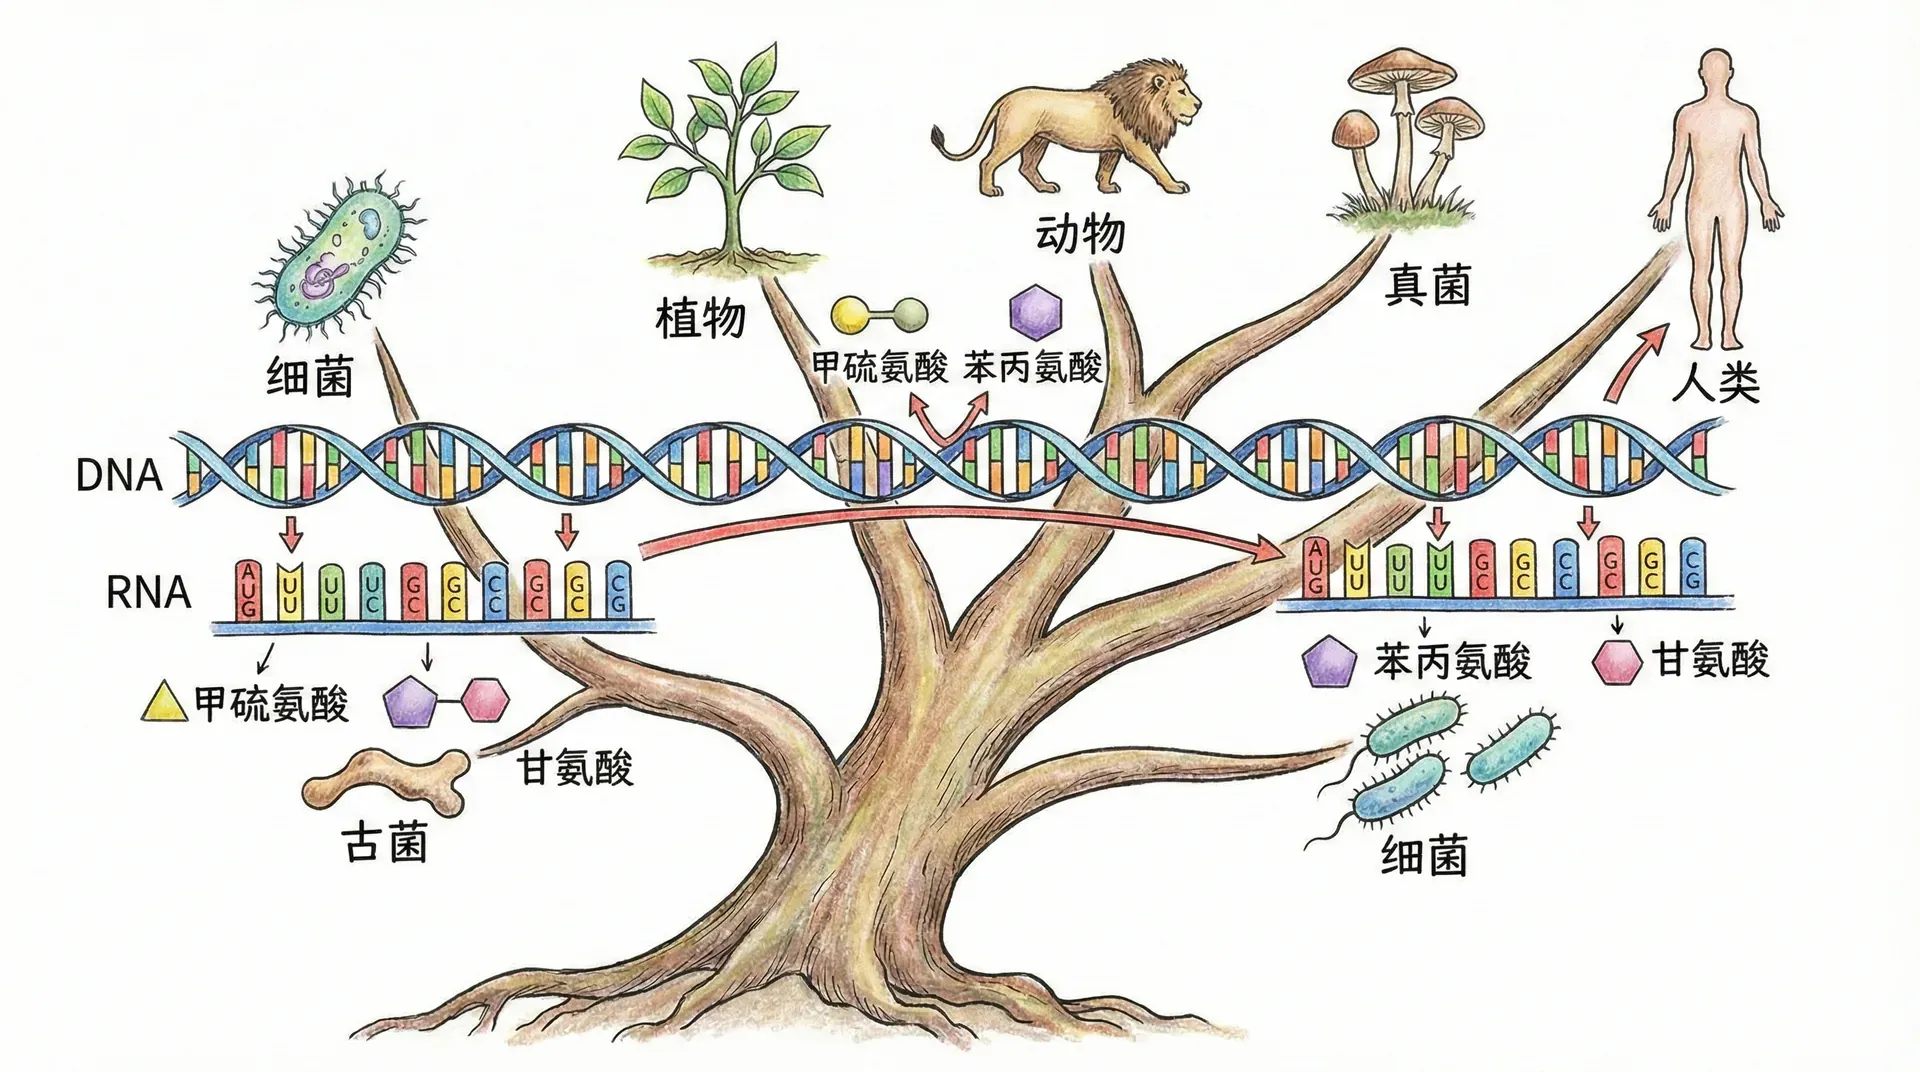
遗传密码说明mRNA上连续的三联体密码子怎样指定氨基酸或终止信号。它连接的是核苷酸序列与多肽序列,并不意味着遗传信息在任何情形下都只能从DNA单向流动。翻译的准确性由密码子—反密码子配对、tRNA正确装载和核糖体校验共同保证。
绝大多数生物使用高度相似的遗传密码,因此一个物种的基因常能在另一个物种中表达。但“几乎通用”并不等于完全相同:线粒体、某些微生物和细胞器存在密码子重新指定,表达结果还会受到启动子、RNA加工、密码子偏好和蛋白修饰等因素影响。
遗传密码的基本特征
由A、U、G、C组成的三联体共有64种,其中标准遗传密码包含61个有义密码子和3个终止密码子。多个密码子可指定同一种氨基酸,这称为简并性;一个确定的密码子在特定遗传密码体系中通常只指定一种含义。
遗传密码的广泛保守为重组蛋白表达提供基础。例如,编码绿色荧光蛋白的基因可以在细菌、植物或动物细胞中表达并产生荧光。跨物种表达能否成功,还取决于基因调控元件、RNA稳定性、翻译效率和蛋白折叠环境。
简并性常集中在密码子第三位,但并不是第三位改变都不影响氨基酸,也有简并发生在其他位置。tRNA反密码子的摆动配对使一个tRNA能够识别多个同义密码子,却仍受到修饰碱基和核糖体校验规则限制。
密码子使用偏好性
不同物种、组织乃至同一基因不同区域使用同义密码子的频率并不相同。偏好受到tRNA丰度、GC组成、突变偏向、选择压力和翻译速度等多种因素影响。高表达基因常富集能被充足tRNA识别的密码子,但这种趋势不是适用于所有基因的硬性规律。
外源基因表达时,调整密码子可能提高产量,却也可能改变mRNA结构、翻译停顿和蛋白共翻译折叠。可靠的“密码子优化”需要同时考虑宿主tRNA供给、RNA稳定性和蛋白质量,不能只把所有密码子替换为使用频率最高的版本。
病毒的密码子使用会受到自身基因组组成和宿主选择环境共同影响。有些病毒与宿主偏好相近,有些并不相近;复制速度、免疫逃逸和基因组结构都可能参与塑造这种模式,因此不能简单解释为病毒主动选择最高效的宿主密码子。
遗传密码的进化起源
遗传密码的起源尚无定论。“冻结偶然”认为早期密码一旦与大量蛋白质建立对应,全面改变会造成很高代价;其他假说强调密码子与氨基酸的化学联系、早期生物合成路径以及减少突变损害的选择。现有模式可能同时保留了偶然与选择的痕迹。
遗传密码存在少量自然变体,例如一些线粒体和微生物会把标准体系中的终止密码子重新指定为氨基酸,或反向改变某些有义密码子的含义。这些变化说明密码可以演化,但通常需要tRNA、释放因子等翻译部件协同改变。
这些例外并不等同于“原始支系”或活化石。现生生物都经历了同样长的演化时间,密码子重指定可能在不同谱系中独立发生。比较这些变体的价值,在于揭示翻译系统在保持整体兼容的同时,仍有受限的可塑性。
总结
从非共价作用到核酸和蛋白质结构,再到复制、转录与翻译,可以看到遗传信息只有进入具体的分子环境才会产生功能。序列提供约束,结构决定可访问性,酶和调控网络控制速率,细胞还通过修复与质量控制降低错误积累。
生命分子既遵守共同的物理化学规律,又保留大量例外和条件依赖。中心法则是一张信息流向图,不是把细胞描述成完全确定的流水线;遗传密码高度保守,也并非毫无变化。把规律与适用边界同时掌握,才能避免用一句口号代替机制。
基因编辑、重组蛋白生产、分子诊断和合成生物学都建立在这些机制之上。实际应用还必须考虑脱靶、表达背景、蛋白折叠和细胞稳态等问题。理解从序列到结构再到功能的连续关系,能够为后续分析突变、药物靶点和调控网络提供清晰起点。