非线性系统入门与综合建模
上一章,我们把一个平面系统看成一张“水流地图”:矩阵给每个位置配上速度箭头,特征值告诉我们原点附近是向内汇聚、向外散开,还是绕着转。这套办法很好用,但它还有一个尚未回答的问题:真实世界的箭头,为什么一定要由同一个矩阵决定?
猎物增加,会让捕食者更容易找到食物;捕食者增加,又会改变猎物的增长速度。两种数量的作用乘在一起,就出现了 xy。一根摆杆偏离竖直方向,重力产生的回复作用取决于 sinθ,也不可能在所有角度都等于 θ。这些变化没有推翻前面的知识,只是提醒我们:一个线性系统往往是一幅局部放大的图,完整地图还需要保留非线性项。
这一章我们先弄清楚这幅局部图怎么画、能相信到什么程度,再用捕食者与猎物、摆的运动把分析做完整。最后回到一个带环境容量的生态模型,从“想问什么”一直走到“计算结果究竟说明了什么”。这也是本课程最后一次把建模、解析计算、几何分析和数值方法放在同一道问题里。
先找系统可能停下来的地方
假设我们研究两个竞争同一类资源的种群。食物充足时,数量较多的种群通常也能产生更多新个体;种群过密时,自己和竞争者都会让增长变慢。为了先看清结构,把种群数量和时间按固定尺度换成无量纲变量,考虑一个教学模型:
{x′=x(2−x−y),y′=y(3−x−2y).
这里 x,y≥0。括号里的 2−x−y 是第一个种群的单位数量净增长率;3−x−2y 是第二个种群的单位数量净增长率。系数只是为了展示分析过程选定的值,并不是某个真实生态区域的测量结果。
与线性系统相比,x2、xy、y2 让箭头随位置的变化不再是线性的。不过,相平面的读法完全没变。写成一般形式就是
{x′=f(x,y),y′
右端不显含时间,称为自治系统。同一个状态 (x,y),无论几点来到这里,都得到同一个速度向量 (f(x,y),g(x,y))。这正是我们能把运动画在一张固定地图上的原因。
本章假定向量场在所研究区域内连续可微。这保证每个初值附近有唯一的局部解,不同轨线不能在普通点相交后各走各的。它不保证任意非线性方程的解都能存在到无限远;要作长期判断,还得检查解会不会逃出定义域或者在有限时间内变得无界。
零增长曲线怎样帮助我们读图
先看第一个种群什么时候暂时不变。x′=0 给出
x=0或x+y=2.
同样,y′=0 给出
y=0或x+2y=3.
这些线叫零增长曲线,也常叫零轨线。第一组上水平速度为零,第二组上竖直速度为零。只有两组同时满足,整个状态才停下来。因此把两组逐一相交,得到四个平衡点:
(0,0),(2,0),(0,23),(1,
前面三个在边界上,分别表示全部消失、只剩第一种、只剩第二种;最后一个才是共存。求解时如果上来就把两式除以 x 和 y,三个边界平衡就会全丢掉。我们在分离变量时遇到过同样的问题:除去一个因子之前,要先安顿好它等于零的情形。
接着看箭头。在正象限内,x+y<2 时 x′>0,箭头向右;x+y>2 时箭头向左。 时 ,箭头向上; 时箭头向下。例如在 ,
x′=0.8(2−0.8−0.6)=0.48,y′
此刻两种数量都增加。在 (1.2,0.8),则有 x′=0、y′=0.16,箭头竖直向上。它通常会穿过直线 ,随后水平速度改变符号。因此,;它更像地图上提示“某个速度分量在这里换号”的分界标记。坐标轴在这个模型中确实是轨线所在的不变边界,因为消失的种群不会凭空重新出现。
把平衡点挪到原点,再看最先起作用的项
现在问一个更具体的问题:如果两个种群原本都在 1 附近,稍微多一点或少一点,会不会自己恢复?我们不必先解出全部轨线,可以先只看共存点周围。
令
u=x−1,v=y−1.
u,v 是相对平衡的偏差。平衡数量不随时间变化,所以 u′=x′、v′。把 、 真正代进原方程,而不急着背矩阵公式:
u′v
当偏差都只有原尺度的百分之一时,一次项是百分之一量级,乘积项则是万分之一量级。先保留一次项,就得到
(u′v
这就是线性化的来历:我们在平衡点附近,先保留对小偏差起主要作用的线性部分。原方程仍在那里,二次项没有真的消失。
一般地,若平衡点为 (x∗,y∗),定义偏差向量
u=(x−x∗y−y∗
多元函数的一阶展开给出
u′=J∗u+R(u),
其中
J∗=J(x
J 叫 Jacobian 矩阵,中文也叫雅可比矩阵。第一列回答“只把 x 增加一点,两种变化率分别怎么动”,第二列回答同样的 y 扰动问题。偏导数因而有明确的模型含义,并不只是计算矩阵的手续。若右端有连续二阶导数,余项通常还能估成 O(∥u∥2);只有连续一阶导数时,用上面的更一般表达就够了。
对于竞争模型,
J(x,y)=(2−2x−y−y
代入 (1,1),正好得到刚才逐项展开的矩阵。它的特征方程是
λ2+3λ+1=0,λ1,2=
两根都负。稍后说明的线性化结论允许我们判断:共存平衡局部渐近稳定。这里“局部”修饰初值范围,“渐近”表示随着时间增加逐步回去,并不承诺某个有限时刻突然精确回到平衡。
另外三个点也可以一起算完,避免把模型只研究一半:
两个边界平衡都是鞍点,这在情境里有一个直观读法:只剩一种的状态沿着自身边界可以恢复,但另一种只要以很小的正数量进入,就有增长的可能。讨论实际种群时只取非负方向的扰动;这里的不稳定方向确实进入可行区域,并非来自负种群这种无意义的状态。
哪些判断能从线性系统带回来
先把两个容易混的词分开。稳定表示初值足够近,就能一直待在指定的小邻域内;渐近稳定还要求这些近处的解最终趋向平衡。绕着平衡打转而不靠近,可以稳定,却不渐近稳定。距离也不必每时每刻都减小,局部渐近稳定的轨线允许先有一段偏移再回落。
若 J∗ 的所有特征值实部都不为零,这个平衡点叫双曲平衡点。对本章假定的连续可微自治系统,线性化能给出可靠的局部稳定性结论:全部实部为负,原平衡局部渐近稳定;存在实部为正的特征值,原平衡不稳定。二维一正一负时是鞍点,附近有分别趋近和远离的方向结构。
我们沿用上一章的迹与行列式,记
T=trJ∗,D=detJ∗,Δ
由 λ2−Tλ+D=0,可把常见情形放在一起:
最后一行并不是说任何结论都没有:如果另一个根为正,仍可判断不稳定。但若根为 0 和负数,单凭这些根不能判定稳定性。也别把“迹为零”一律当成不能判断;T=0,D<0 明明还是鞍点。
为什么边界情形格外麻烦?因为线性项恰好没有提供向内或向外的主导作用,那些看似很小的非线性项就有机会在长时间里累积起来。
同一个线性中心,可以藏着三种答案
用已经按尺度化简的坐标,考虑下面一族系统,σ 可取 −1,0,1:
{x′=−y+σx(x
三种情形在原点的 Jacobian 完全相同,都是
(01−10),λ=±i.
但令 ρ=x2+y2,在 处直接求导:
ρρ′=xx′+yy′
交叉项 −xy+xy 抵消了,留下的恰恰是高阶项。若 σ=−1,分离变量得到
ρ(t)=1+2ρ02t
半径趋向零,原点渐近稳定。若 σ=0,半径恒定,得到稳定但不渐近稳定的中心。若 σ=1,则
ρ(t)=1−2ρ02t
任意小的正半径最终都会扩大,原点不稳定。这三种情况的角速度都等于 1,所以向内螺旋、原地绕圈、向外螺旋,全都能躲在同一个线性中心后面。
零根也一样。例如 x′=−x3, y′=−y 与 在原点都有特征值 ,前者的两个变量都趋向零,后者沿 轴向外离开。线性化测试失去决定性时,应该继续分析原方程,而不是把“暂时判不了”写成“稳定”。
Jacobian 可以在任何点计算,但本节的稳定性规则要求先确认该点是平衡点,再在那里计算矩阵。沿着一条轨线随手取点、检查那个点的 Jacobian 特征值,并不能替代平衡点的线性化定理,也不能独自证明整个区域的长期行为。
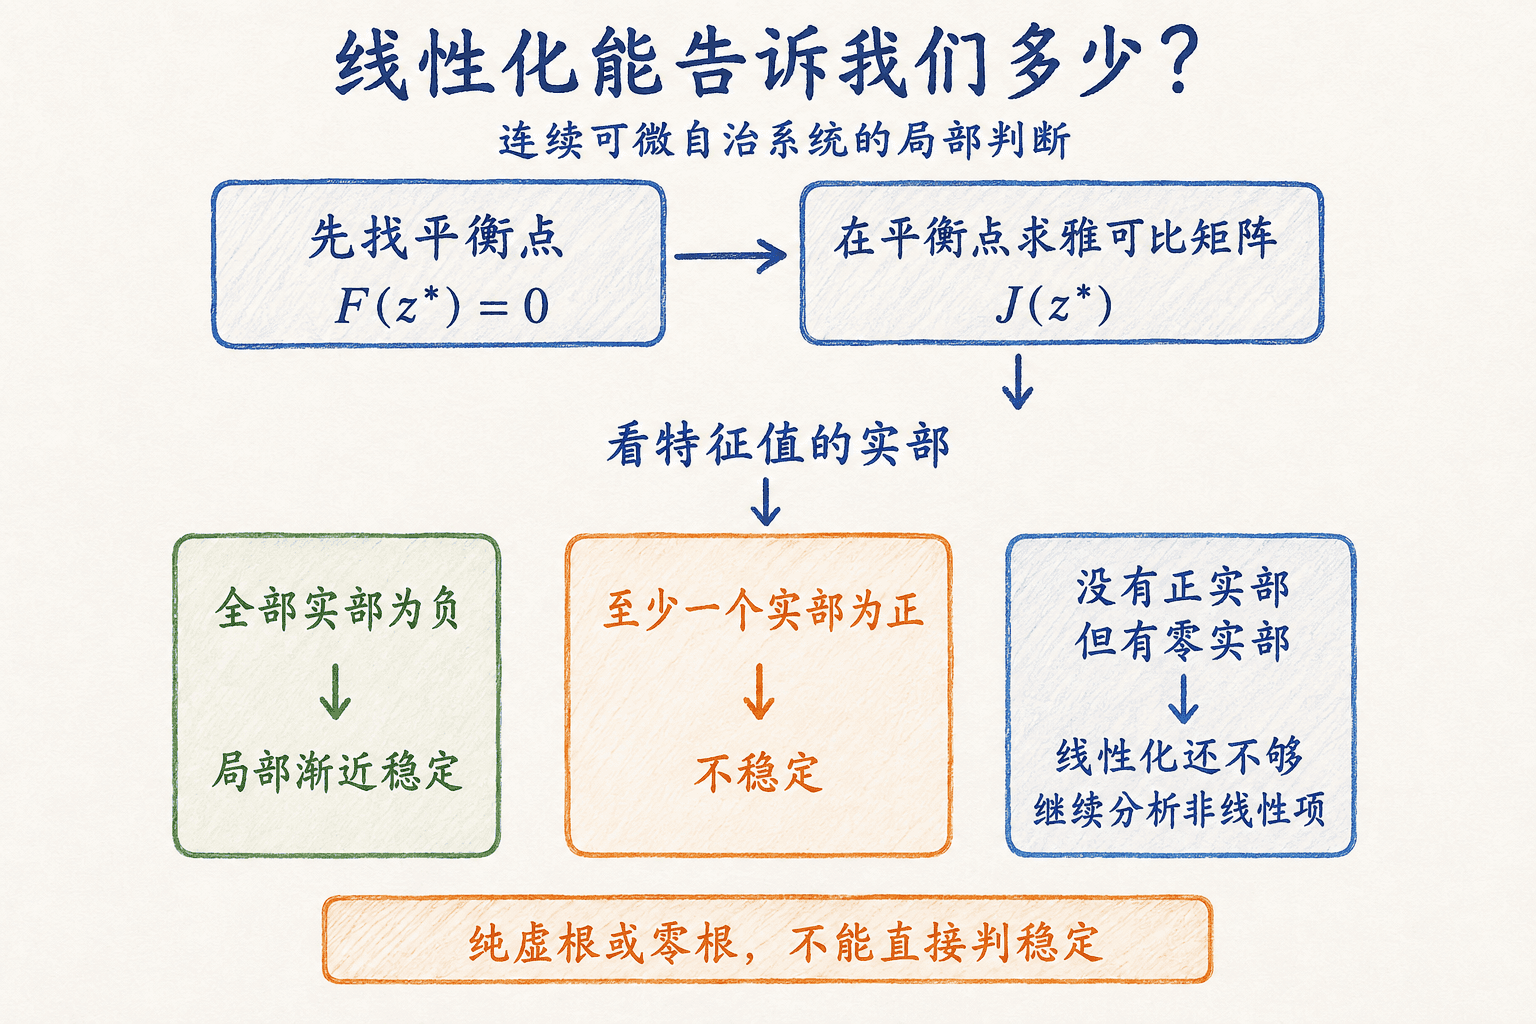 先确认平衡点,再读取特征值。全部实部为负可判局部渐近稳定,有正实部可判不稳定;无正实部但有零实部时,答案还藏在非线性项中。
猎物先变多,捕食者为什么晚一步跟上
现在让两个种群从竞争者变成捕食者与猎物。先讲清假设:没有捕食者时,猎物的食物暂且视为充足,它按比例增长;没有猎物时,捕食者按比例减少;两者混合得足够均匀,相遇频率近似与两种数量的乘积成正比。暂不加入年龄差异、迁入迁出和捕食饱和。
令 x 为猎物数量,y 为捕食者数量,就得到
{x′=αx−βxy
α,γ 的单位都是时间的倒数。若两种数量分别按“只猎物”“只捕食者”记录,那么 β 的单位是“每只捕食者每单位时间”,δ 的单位是“每只猎物每单位时间”。这样 βy、δx 才能与自然增长率、死亡率相减。
正初值不会在有限时间内穿过坐标轴。例如沿解有
x(t)=x0exp(∫0t[α
只要解存在且积分有限,右边就严格为正;y 有同样的表达。坐标轴初值则要单独保留:y=0 时 x=x0eαt, 时 。
同时令两种增长率为零,平衡为
(0,0),(x∗,y∗)=(
正象限内,横线 y=y∗ 决定猎物增减,竖线 x=x∗ 决定捕食者增减。共存点右下方,猎物多、捕食者少,两种数量都上升;进入右上方后,捕食者已经多到使猎物开始减少,但自己暂时仍在增加。轨线继续绕行,便出现了猎物先达到峰值、捕食者稍后达到峰值的循环次序。
线性化给了什么,又留下了什么
先求一般 Jacobian:
J(x,y)=(α−βyδy
原点的特征值为 α,−γ,所以是鞍点。这与坐标轴上的指数增长、衰减正好一致。共存点处则有
J∗=(0αδ/β
得到 λ=±iαγ,线性化是中心。经过刚才的反例,我们已经知道:到这里还不能宣布原模型有闭合轨线。
为了进一步分析,把数量除以共存水平:
p=x∗x,q=y
p,q 都无量纲,系统变成
p′=αp(1−q),q′=γq(p
在 p,q>0 时,暂时用 dq/dp=q′/p′ 消去时间,可以整理出
α(q1−1)dq=γ(1−
两边积分,就提示我们考察
H(p,q)=γ(p−1−lnp)+α(q−1−ln
我们把对数写在无量纲比值上,避免给“带单位的数量取对数”。刚才消去时间在 p′=0 的位置不能直接用,因此最后一定要回到时间变量核查。链式法则给出
dt
这个等式在整个正象限都成立,包括零增长线上。H 就是沿轨线不变的量。
守恒为什么真能推出闭合轨线
令 ϕ(z)=z−1−lnz。它在 z>0 上满足
ϕ′(z)=1−z1,ϕ
所以它在 z=1 处取得唯一最小值 0,并且在 z→0+ 或 z→∞ 时都趋向正无穷。于是 在 有唯一严格最小值,任意有限的等值线都会被限制在远离坐标轴、也远离无穷远的区域里。
更具体地,H 的 Hessian 是正定对角矩阵,故 H 严格凸。每条非零等值线 H=h 都是围住 (1,1) 的光滑闭曲线:它是紧凸子水平集的边界,边界上梯度不为零。系统速度沿这条曲线切向运动,而且曲线上没有平衡点。光滑紧曲线上处处非零的速度有正的下界,走完有限长度的一圈只需有限时间。这样,每个正的非平衡初值都产生周期运动,就有了方程本身的依据。
共存平衡因此稳定,但不渐近稳定。若初值的 H>0,守恒已经排除了它趋向 H=0 的平衡。这里也没有某一条特别吸引周围轨线的周期轨道:每条闭曲线旁边都有别的闭曲线,所以它们不是极限环。极限环首先要求周期轨道在邻近周期轨道中是孤立的,不能把“画成一圈”都叫极限环。
取一组教学参数:时间按月计,α=0.6、γ=0.3,β=0.02、δ=0.005,单位按前述约定。那么
x∗=60,y∗=30,λ=±i
若初值为 (90,15),则
x′(0)=90(0.6−0.02×15)=27,y
两种数量最初都增加,但猎物在捕食者达到 30 时就会停止增加。初值对应 p0=1.5,q0=0.5,守恒量为
H0=0.3(0.5−ln1.5)+0.6(−0.5−ln0.5)≈0.144249.
这条轨线会在这一个等值线上循环。线性化给出的近小振幅周期为 2π/0.18≈14.81 个月;当前初值并不特别接近平衡,不能把这个近似周期直接当成它的精确周期。
数学上正数量永不归零,不表示真实种群绝无灭绝风险。如果模型算出数量已经远小于一个个体,连续变量的近似就失去直接解释。更不用说食物有限、个体捕食能力有限,这些假设一旦修改,刚才的守恒量和周期结论都要重新核查。
摆的能量把局部图接成完整图
把一个刚性细杆的摆稍微推开,它来回摆动;用力推得足够快,它可能越过最高点连续转圈。这两个现象都应当由同一个模型解释。假定杆长 L、质量集中在端点,转轴固定,先忽略空气阻力和摩擦。角度 θ 从竖直向下量起,重力沿切线方向的分量把它拉回去,于是
θ′′+Lgsinθ=0.
这里 t 以秒计,θ 用弧度,g/L 的单位为 s−2。令 ω=θ,得到
θ′=ω,ω′=−Lg
平衡点是 (nπ,0)。在展开的相平面里它们有无穷多个;若把角度相差 2π 的位置视为相同物理位置,相空间可看成一个圆柱。在最低点 (2nπ,0) 附近,线性化特征值是 ±ig/L;在最高点 附近,特征值是 ,所以最高点是鞍点、不稳定。
最低点的纯虚根仍需进一步确认。这里最自然的量是机械能除以 mL2:
E(θ,ω)=21ω2+
第一项来自动能,第二项来自相对最低点的重力势能;这个经过缩放的 E 单位是 s−2,实际机械能为 mL2E。沿解求导,
E′=ωω′+L
最低点是能量的严格局部最小点,附近的小正能量等值线闭合,故它是稳定中心,不渐近稳定。理想摆没有任何消耗能量的项,也就没有理由越摆越小。
从最低点赋予初速度 ω0,初始能量是 E0=ω02/2;到达最高点至少需要势能 。所以临界角速度是
∣ωc∣=2Lg
当 0<∣ω0∣<∣ωc∣ 时,能量不足以越顶,摆动到 ω=0 后折返,最大偏角满足
θmax=2arcsin(2g/L
大于临界速度时,ω 永不变号,摆连续转圈。恰好等于临界速度时,轨线属于分界轨线:摆无限接近最高点,速度无限趋近零,却不会在有限时间到达平衡后再穿过去。若有限时间到达,唯一性会迫使它一直是最高点的常值解,与先前从最低点运动矛盾。
例如取 L=1.25m、g=9.8m/s2,则 ,临界角速度为 。从最低点以 推出,有 。以 推出则能越顶,经过最高点时
∣ω∣=62−4×7.84
小角度公式 T≈2πL/g≈2.244s 只适合小幅摆动。若从 静止释放,能量给出精确周期的积分表达
T=42gL
积分上端速度为零,是可积的端点奇性;当振幅趋近 π 时,周期则趋向无穷。线性近似丢掉的振幅信息,正是在这里重新出现。
加上阻尼,稳定怎样变成渐近稳定
真实转轴会损失能量。用与角速度成正比、方向相反的阻尼转矩作近似,把除以转动惯量后的阻尼系数记为 μ>0,单位为 s−1:
θ′=ω,ω′=−μω−L
平衡位置不变,Jacobian 变成
J(θ,ω)=(0−(g/L)cosθ
最低点的特征方程为 λ2+μλ+g/L=0,两根实部都负。所以无论弱阻尼的螺旋,还是强阻尼的结点,最低点都局部渐近稳定;临界重根的实部也仍为负。最高点满足 λ2+μ,两根异号,仍是鞍点。
同一个能量函数现在满足
E′=−μω2≤0.
它把“阻尼消耗能量”写成了可逐步检查的等式。但 E′≤0 本身还不足以立即断言所有状态都收敛到某个指定最低点:转折瞬间 ω=0 也有 E′=0,而且精确位于最高点的解会永远停在那里。局部收敛已经由特征值得证;若还想研究某个大范围内最终落进哪一个势阱,就要结合初始能量和边界继续分析。
能量还能排除一个常见误画。若阻尼摆有非平衡周期解,经过一个周期 T,应有 E(T)=E(0),可是
0=E(T)−E(0)=−μ∫0Tω(t)
迫使 ω 始终为零,矛盾。因此这个无外力的阻尼模型没有非平衡周期运动。若图上画出了永远等幅的闭圈,应先检查是否误用了无阻尼方程。
把一个带环境容量的模型真正做完
现在回到生态问题,但把问题说得更具体:猎物资源有限时,少量捕食者能否建立种群?若能,两种数量受到小扰动后,会持续循环还是逐渐恢复?这两个问题分别涉及边界平衡和共存平衡,比笼统地问“生态会怎样”更容易检验。
令 x(t) 为猎物数量,y(t) 为捕食者数量,时间以月计。保留均匀混合、线性捕食相遇项,加入猎物的环境容量限制:
{x′=rx(1−
r 是猎物低密度净增长率,K 是没有捕食者时的环境容量,a 是捕食相遇系数,m 是捕食者自然死亡率。b 把“损失多少猎物”换成“产生多少捕食者增长”。若两物种数量单位分别记录,b 的单位是“捕食者数量/猎物数量”;把它简单说成无量纲效率,容易忽略两种数量单位之间的转换。
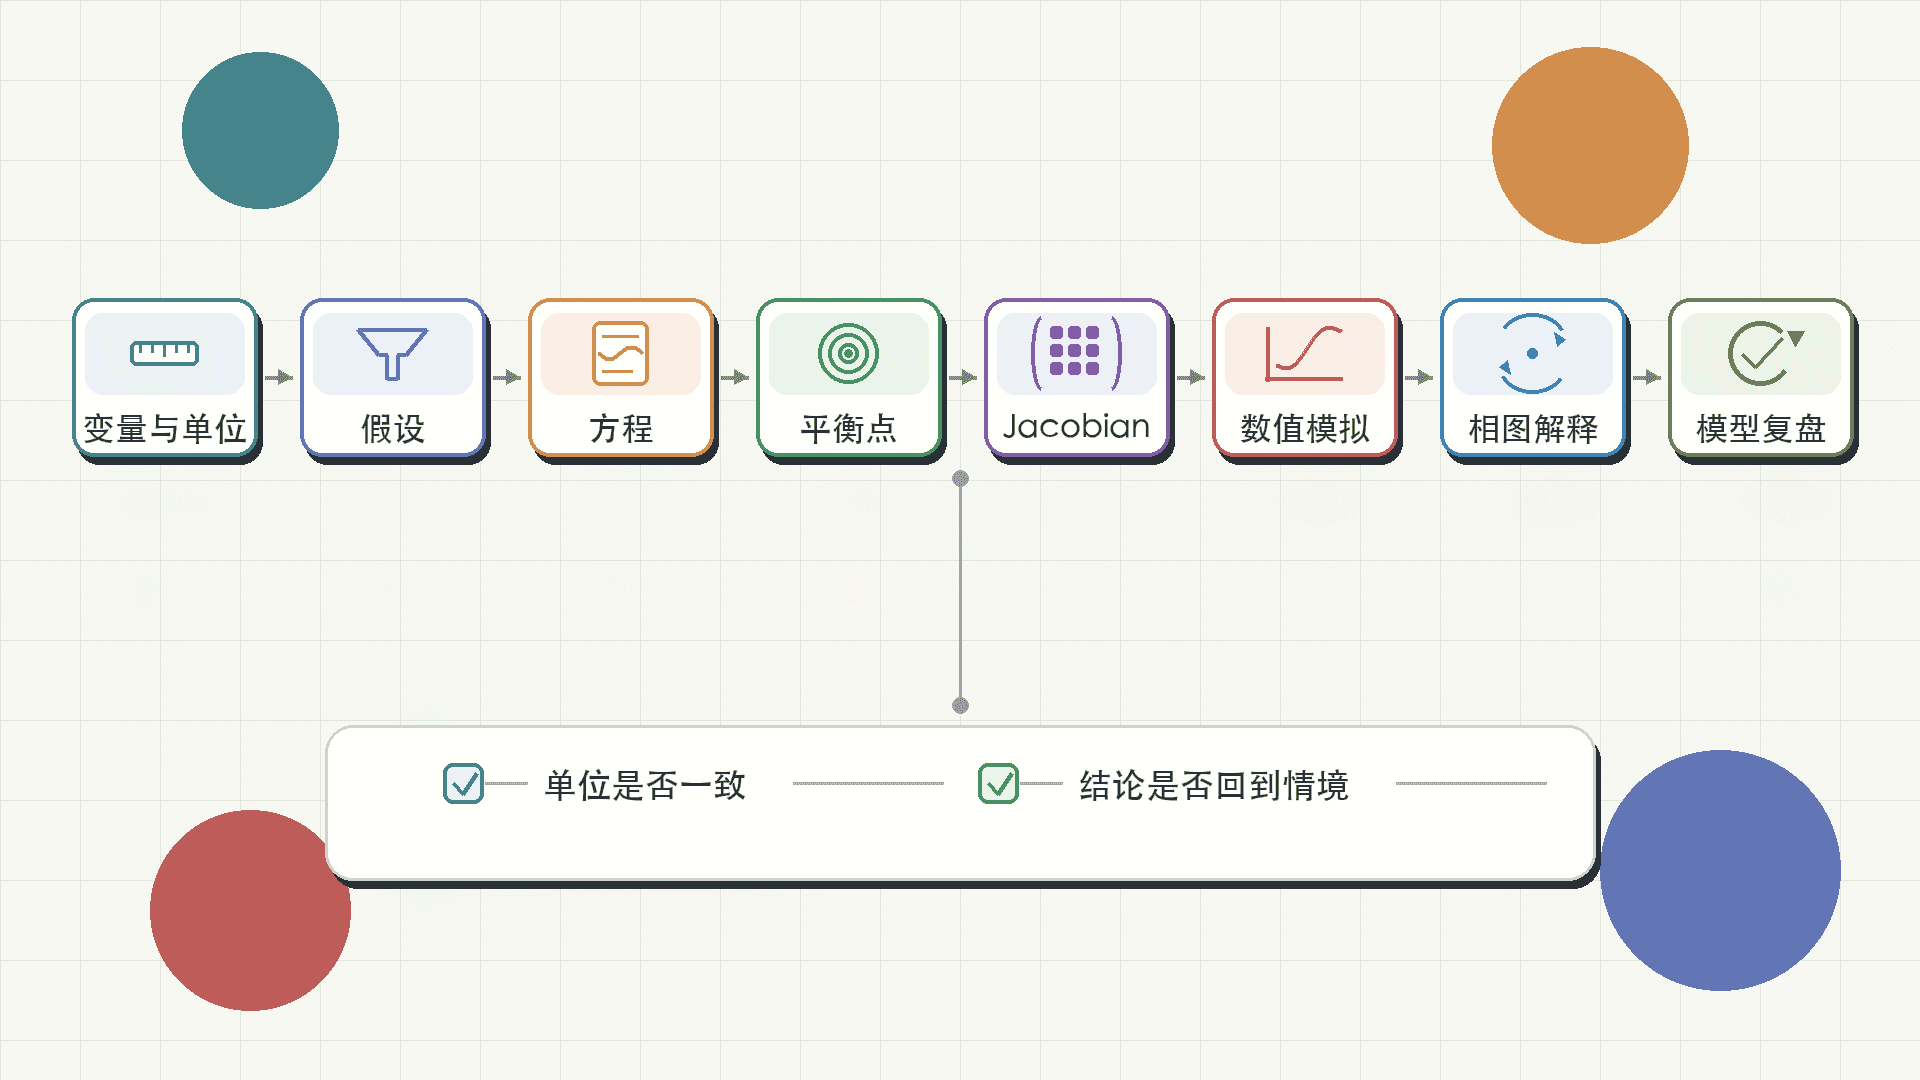
图:先明确问题和数量单位,再用方程、平衡、局部分析与数值核验逐步回答。
先让模型在现实允许的区域里站得住
r,m 的单位是 月−1,K 与 x 同单位,a 为“每只捕食者每月”。于是 与 都是猎物数量每月, 与 都是捕食者数量每月。初值应满足 ,参数取正。
两个方程都有各自数量作因子,因此非负象限不变。还有 x′≤rx(1−x/K),说明猎物不能越过 max(x0,K 向上无界增长。为了同时检查捕食者,令
Z=bx+y.
相加时捕食项正好抵消:
Z′=brx(1−x/K)−my=−mZ+
后面的二次式在 x≥0 上有最大值,故
Z′≤−mZ+4rbK(r+m)
用前面的一阶线性比较思路,可知 Z 有上界,进而 x,y 都有上界。右端是光滑多项式,解又被限制在有界非负区域,所以非负初值的解可延续到所有 t≥0。这一步不是多余的:我们现在有资格继续谈长时间行为,而不只是假设计算程序能一直往后跑。
平衡是否可行,比特征值更早一步
由 y′=y(bax−m)=0,先分开 y=0 和 。边界平衡为 、,正的共存平衡为
x∗=bam,y∗
它只有在 baK>m 时才位于正象限。若算出 y∗<0,不能把它报告成真实共存数量。baK=m 时共存表达与 重合,是需要另查的临界情形。
一般 Jacobian 是
J(x,y)=(r−2rx/K−ay
原点特征值 r,−m,是鞍点。在 (K,0),特征值为 −r,baK−m。所以 baK<m 时,只有猎物的平衡局部渐近稳定; 时它是鞍点。这个阈值也可以不用矩阵读出来:猎物已接近 时,少量捕食者的单位数量净增长率近似为 ,正好决定它能否在稀少时增加。
若正共存平衡存在,在该点用平衡关系化简得
J∗=(−rx∗
其迹 T=−rx∗/K<0,行列式 D=ba2x,故共存平衡局部渐近稳定。环境容量项让迹从经典模型中的零变为负,但闭轨线是否消失不能靠“看起来有阻尼”说明;这里的局部恢复由非零负实部给出,远处轨线则要继续研究。
一组完整的数值例子
取教学参数 r=1、K=200、a=0.02、b=0.25、m,各自单位遵循上文约定。这组值不代表实测拟合。此时 ,共存平衡为
x∗=80,y∗=30,
而
J∗=(−0.40.15
因此附近会以振荡方式恢复;线性近似的振幅包络按 e−0.2t 缩小,衰减到原来 1/e 的时间尺度约为 5 个月,小扰动振荡周期约为 2π/0.2 个月。这些时间尺度针对靠近平衡的偏差,不能要求任意大扰动都严格遵守。
从 (x0,y0)=(100,20) 出发,先做手算检查:
x′(0)=100(1−100/200)−0.02×100×20=10,
y′(0)=0.005×100×20−0.4×20=2.
程序画出的第一小段应当右上行进。若第一步就猎物下降,首先检查代码中的参数、符号和初值。
用前面学过的经典四阶 Runge–Kutta 法,从 t=0 算到 20 个月,在相同时刻比较步长 h=0.1 与 h=0.05 的结果:
六位小数相同是舍入后的结果,并非两次计算逐位完全一致。再把步长减半到 0.025,这些显示位仍一致。这支持所列时刻的数值已经较为稳定。轨线先越过共存水平,再摆回来,与局部螺旋吸引的方向一致。
核验还应包括整个采样过程的非负性、转折位置是否与零增长曲线一致,以及多组初值的表现。前面的经典捕食者模型可以检查 H 是否近似守恒;当前加入环境容量的模型已经改变了方程,不能继续要求旧的 H 不变。阻尼摆则应检查能量衰减,而不是守恒。检验量也必须跟着模型变。
这一次数值比较支持这组参数、这几个采样时刻的计算结果;它没有证明所有初值都收敛,也没有证明模型适用于真实种群。有限时间图像更不能排除极慢的漂移。我们已有的严格结论是可行域保持、有界性,以及各平衡附近的稳定性;如果要把吸引范围扩大成整个正象限,还需要额外的全局论证。
参数变化之后,原答案还剩多少
保持其余参数不变,把 m 从 0.4 提高到 1.2,则 baK=1<1.2,正共存平衡消失,(200,0) 的特征值变成 ,局部渐近稳定。模型表达的是:在仅有猎物的环境容量附近,稀少捕食者的增长不足以补偿死亡。
真实应用中,r,K 可以先从没有捕食者的猎物变化趋势估计,m 需要与捕食者缺乏食物时的减少机制相联系,a,b 则需要相互作用数据。只有一个平衡点的数量,最多给出若干参数组合的约束,通常不能把五个参数分别确定。若只记录猎物、不观察捕食者,也可能有不同参数组合产生相近曲线。此时应承认数据不足,并用参数范围研究结论会不会改变。
最终交给使用模型的人,不应只有一张漂亮相图。应当能明确说出:研究的时间范围是什么,变量怎么量,哪些机制被保留,参数如何获得,阈值是否对参数误差敏感,哪些结论已经证明,哪些只是计算支持。这样,当观察结果与模型不符时,才知道应该检查数值方法、重新估计参数,还是修改捕食饱和、季节变化等机制。
自己把局部判断和完整模型接起来
练习:不要漏掉边界平衡
对于 x′=x(1−x−y)、y′=,找出非负象限内所有平衡点并分类,说明少量第二种群进入 后会怎样。
两组零增长线分别是 x=0 或 x+y=1,y=0 或 x+y。后两条平行,故没有正共存平衡,只有 。Jacobian 为
练习:纯虚根之后再走一步
分析 x′=y、y′=−x+x3 的三个平衡点,并证明原点附近确有闭合轨线。
平衡点为 (0,0),(1,0),(−1,0),Jacobian 为 (0。在 处,特征值为 ,是鞍点;在原点为 ,尚不能直接判中心。
练习:周期运动的两个易混概念
对于经典捕食者模型,若正初值不在共存平衡,能否最后收敛到共存点?其闭轨线能否称为稳定极限环?
不能收敛。正非平衡初值的 H=h>0,沿解保持不变;若趋向共存点,连续性又要求 H→0,矛盾。共存点的稳定只保证足够小的扰动不会跑远。闭轨线也不是极限环,因为任意一条旁边都有另一能量值对应的闭轨线,缺少周期轨道的孤立性。守恒模型没有把不同能量的初值吸到同一闭轨线上的机制。
练习:阻尼会不会让倒立位置也稳定
对 θ′′+θ′+4sinθ=0,判断最低点和最高点的局部稳定性,并计算能量变化率。
令 ω=θ′。最低点的特征方程为 λ2+λ+4=0,两根 的实部均负,是局部渐近稳定的螺旋型平衡。最高点的方程为 ,两根 异号,仍是鞍点。
练习:零增长线不等于平衡点集合
在一个没有新易感者进入的简化传播模型中,S′=−βSI、I′=βSI−γI,其中 、。感染者在哪些位置停止增加?这些位置是否都是平衡点?
I′=I(βS−γ)=0 给出 I=0 或 。当 时,若 ,感染者增加;若 ,感染者减少。
练习:综合结果怎样被检查
在正文带环境容量的数值模型中,若程序从 (100,20) 出发画出第一个时刻两种数量都减少,后来还出现 y<0,你会检查什么?若改正后用两个步长算出的图像几乎重合,是否就证明了全局收敛?
手算已得 x′(0)=10,y′(0)=2,所以足够小的第一步应向右上。先核对 0.02xy、 的符号、参数对应及初值,再检查 RK4 各阶段是否使用相应中间状态。精确解保持非负,出现负数要检查步长和方法是否适合,不能直接解释成负种群,也不应只用截断到零掩盖误差。
我们最初解 y′=2y 时,第一次把“未知数”换成了整个函数。走到这里,未知的已经是一组互相牵动的函数,而我们也不再只等着一个显式公式。一个平衡位置、一条不能越过的边界、一个守恒量、一个经核验的数值轨迹,都可能回答模型里真正的问题。
下次遇到一个变化过程,可以从一张纸开始:先写清楚你在追踪什么、每单位时间为什么增加或减少,再给它初值和单位;接着寻找能算出的结构,并检查剩下的计算是否可信。最后把结论翻译回最初的现象,同时带上它成立的条件。能把这个过程独立走通,微分方程才真正从一道道习题,变成了你可以反复使用的建模方法。